Een snelle In vivo Test om te testen op neuromodulatory verbindingen met behulp van de Giant Fiber System (GFS) van Drosophila melanogaster Beschreven. Nanoinjections in de kop van het dier, samen met elektrofysiologische opnames van de SBO kan onthullen bioactiviteit van verbindingen op neuronen en spieren.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Gekoppelde Nanoinjection en Elektrofysiologie test voor het screenen op bioactiviteit van verbindingen met behulp van de Drosophila melanogaster Giant Fiber System
In dit artikel
Samenvatting
Samenvatting
Screening verbindingen in vivo activiteit kan worden gebruikt als eerste stap kandidaten die kunnen worden ontwikkeld tot farmacologische agentia 1,2 identificeren. We ontwikkelden een nieuwe nanoinjection / elektrofysiologische test die de detectie van bioactieve modulerende effecten van stoffen op de functie van een neuronale circuit dat bemiddelt de ontsnapping respons bij Drosophila melanogaster 3,4 mogelijk maakt. De in vivo assay gebruikt Drosophila Giant vezelsysteem (GFS, figuur 1) kan screening van verschillende verbindingen, zoals kleine moleculen of peptiden en vereist slechts minimale hoeveelheden te wekken effect. Daarnaast is de Drosophila GFS biedt een grote verscheidenheid van mogelijke moleculaire doelwitten op neuronen en spieren. De Giant Fibers (GFS) synaps elektrisch (gap junctions) als chemisch (cholinerge) op een Perifere Synapsing Interneuron (PSI) en de Tergo Trochanteral Muscle neuron (TTMn) 5 6. Ten slotte is de neuromusculaire knooppunten (NMJ) van de TTMn en de DLMn met de sprong (TTM) en vliegspieren (DLM) zijn glutamaat 7-12. Hier hebben we laten zien hoe je nanoliter hoeveelheden van een stof te injecteren, terwijl het verkrijgen van elektrofysiologische intracellulaire opnames van de Giant Fiber System 13 en hoe de effecten van de verbinding op de functie van dit circuit te controleren. We tonen specificiteit van de test met methyllycaconitine citraat (MLA), een nAChR antagonist, die de PSI om de verbinding DLMn maar niet de GF om verbinding of de functie van de NMJ op de sprong of vlucht spieren TTMn verstoort.
Alvorens te beginnen met deze video is het belangrijk dat je zorgvuldig in de gaten en vertrouwd raken met de Jove video met de titel "elektrofysiologische registraties van de Giant Fiber Pathway van D. Melanogaster "van Augustin et al. 7 de video hier gepresenteerde is bedoeld als een uitbreiding van deze bestaande techniek. Hier elektrofysiologische opnames methode en focus gebruiken in bijzonderheden over de toevoeging van de gepaarde nanoinjections en meettechniek.
Protocol
1. Elektrofysiologie Rig Set-up
- De benodigde apparatuur voor de elektrofysiologie rig set-up wordt in detail beschreven door Augustin et al.. In dit Journal 14. Raadpleeg dit artikel voor een uitgebreide uitleg van de benodigde elektrofysiologische apparaten.
- Wijzig de eerder beschreven elektrofysiologie rig set-up 14 door het toevoegen van een zesde micromanipulator, die de nanoinjector houdt. Voor een gemakkelijke toegang tot de kop van het dier dient te worden geplaatst tussen de twee elektrode micromanipulators zoals weergegeven in figuur 2.
- Voordat het experiment dat een comfortabel reeks alle draaiingsassen met micromanipulators, en dat alle elektroden en de injectie micropipet (stap 2) kan het dier komen.
2. Nanoinjection Set-up
- De nanoinjection set-up vereist een Nanoliter2000 (Precisi Wereldop instrumenten, Sarasota, FL, USA) of een dergelijke injector dat gecontroleerde injecties kunnen in nanoliter hoeveelheden.
- Bereid injectienaald met behulp van de glazen micropipetten die bij de injector door te trekken ze naar een weerstand van 80-100 MΩ met een elektrode trekker.
- Voor een soepele injecties het nodig te schuinen micropipetten een 11-17 micrometer opening een hoek van 45 graden (figuur 3).
- Langzaam plantgat de injectie micropipet met synthetische olie met behulp van een injectiespuit Hamilton in opdracht van de Nanoliter2000 handleiding, ervoor te zorgen dat er geen luchtbellen aanwezig zijn.
- Zorgvuldig zet de micropipet op de nanoinjector en bereid het aan de verbinding te laden door het legen van het teveel aan olie in opdracht van de Nanoliter2000 handleiding.
- Plaats de injector op de micromanipulator en laad de verbinding volgens de instructies in de Nanoliter2000 handleiding. Zorg ervoor dat het uiteinde van de micropipet niet breekt tijdens dezeprocedure.
- Stel de gewenste hoeveelheid nanoliters te injecteren in de controle van de injector box van de instructies van de Nanoliter2000 handleiding. Let op dat de totale hoeveelheid geïnjecteerde niet 100 nl overschrijden. We hebben gevonden dat grotere hoeveelheden zout besturingsoplossingen kan de functie van de SBO circuit beïnvloeden.
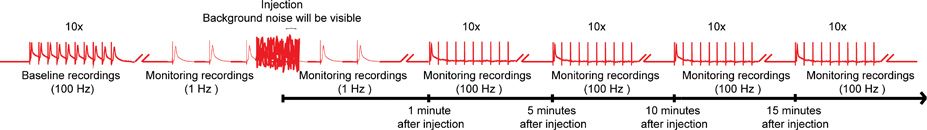
- Het is cruciaal om de injector losgekoppeld van de schakelkast tijdens opname verkrijging met uitzondering van de injectie zelf, daar de voeding van de nanoinjector interfereert met de opnamen, die zichtbaar is als ruis (figuur 4). Echter, de voeding niet los van de controle box omdat het opnieuw instellen.
3. Drosophila melanogaster Voorbereiding
- Verdoof 2 tot 6 dagen oud vliegen met CO 2 of op ijs zoals eerder beschreven 14,15.
- Na immobiel, gebruik dan een pincet om het dier over te dragen aan een plaatje wie zachte tandartsen door het ophalen in haar benen. Houd er rekening mee dat een mannelijke fruitvlieg ongeveer 1,0 mg weegt en een vrouwelijke fruitvlieg weegt ongeveer 1,2 mg, dus stof-to-body gewicht verhouding is anders dan bij mannelijke versus vrouwelijke vliegen. Daarom is het aan te raden om slechts een geslacht te gebruiken voor de experimenten.
- Zoals eerder beschreven 14,15, monteert de vlieg dorsale zijde naar boven en ervoor te zorgen dat de borstkas en het hoofd worden geïmmobiliseerd met een zachte tandartsen geplaatst rond het lichaam. Buig de vleugels uit, zodat ze loodrecht te maken op de thorax (figuur 2, C). De vlieg moeten met zo weinig mogelijk schade.
4. Gekoppelde Nanoinjection / elektrofysiologie
- Plaats de gemonteerde vlieg op de elektrofysiologie rig met zijn hoofd naar de stimulatie-elektroden.
- Doorboor het dier met de bijbehorende stimulerende, grond-en registratie-elektroden zoals eerder beschreven 14,15 (Figure 2 C). Tenzij anders gewenst is, plaatst u een registratie-elektrode in de DLM en de andere in de TTM spier. De DLM spier bevindt zich in de borstkas tussen de voorste Dorso-Centraal haren en de middellijn van de vlieg. De TTM spier is gelegen nabij de vleugel bijlagen, tussen de achterste en voorste Supra-Alar haren van de vlieg 7.
- Lijn de injectie micropipet die de verbinding met de middelste van de drie ocelli gelegen op de mediale achterste deel van de kop, maar nog niet injecteren (figuur 2 C).
- Voor samengestelde injectie het verkrijgen van een baseline-opname van de GF aan TTM en GF in de routes van de Giant Fiber System (GFS, figuur 1) via hersenstimulatie DLM. Om dit te doen, activeert u de Giant Fibers (GFS) met 10 treinen van 10 stimuli (40-50 mV) elk gegeven voor een duur van 0,03 ms bij 100 Hz met een 1 seconde tussen de treinen 14,15 (figuur 4). Wild-type vliegt shOuld in staat zijn om een-op-een te volgen in dit tempo van de stimulatie voor zowel DLM en TTM paden. Gooi de vlieg als de GF om DLM en GF om TTM paden komen de 100 Hz stimulatie niet volgen in een verhouding van 1:1.
- Naar continu stimulatie van de GF met enkele pulsen 1 Hz (figuur 4).
- Snel de stekker van de injector in de schakelkast. Ook al achtergrondgeluid zal interfereren met de 1 Hz stimulatie-opnamen, niet stop te zetten.
- Steek de injectie micropipet in de kop capsule van de vlieg net onder de cuticule, en injecteer de gewenste hoeveelheid van de verbinding in de hemolymfe van de vlieg met behoud van de 1 Hz stimulatie (figuur 4). Door de open bloedsomloop van de vlieg, wordt de gehele zenuwstelsel worden blootgesteld aan de verbinding binnen enkele seconden. Hoewel een bepaalde injectie is niet kritisch voor verbindingen leveren in de hemolymfe vinden we het gebied van de ocelli, die lokaliserend mediale op de rugzijde van het hoofd capsule, een geschikte plaats waardoor een gemakkelijke injectie die leidt tot snelle en gelijkmatige verdeling van de verbinding zijn.
- Verwijder onmiddellijk injectie micropipet van plaats van injectie en trek de injector van de bedieningskast tijdens de voortzetting van de 1 Hz GF stimulatie tot 1 min na injectie (figuur 4).
- Met het oog op meer subtiele effecten van verbindingen op de GFS onthullen, benadrukken de Giant Fibers (GFS) met 10 treinen van 10 stimuli bij 100 Hz met een 1 seconde tussen de treinen. Verdere de functie van de GF paden testen dit paradigma elke 5 minuten tot 15 minuten (figuur 4). Echter, kortere of langere tijd controle zijn ook mogelijk.
- Om te testen of de verbinding een effect op de neuromusculaire verbindingen (NMS) van de SBO heeft, en mogelijk beperken van de effecten van de verbinding, ga dan naar de motorische neuronen richting te activerentgevoerd door thoracale stimulatie. Hiervoor verwijderen stimulerende elektroden van de ogen en vervangen op de voorste zijde van de thorax om de neuronen stimuleren met 10 treinen 10 stimuli bij 100 Hz.
Opmerking: Het elektrofysiologische sporen in beeld niet overeen met de werking van zuivere kleurstof injectie.
5. Representatieve resultaten
Effect van een antagonist op de PSI naar synaps van de Giant Fiber System DLM
Methyllycaconitine citraat (MLA) is een nAChR antagonist dat specifiek is voor α7 nAChR subtypes. De PSI te synaps DLMn in de GF-DLM route is afhankelijk van de Dα7 nAChR subtype voor een goede functie, terwijl genetische verwijdering van Dα7 nAChR subtype heeft geen effect op de GF-TTM weg 5,6. Om de specificiteit en gevoeligheid van assay tonen we geïnjecteerd MLA verschillende concentraties (0, 0,02, 0,04, 0.08 0,12 ng / mg, 46 nl geïnjecteerd) in de kop van het dier (n = 10 verbinding behandeling n = 15 voor zout behandeling). Alleen mannelijke vliegen (van het wild type genotype wild 10E) gebruikt, en het effect van de verbinding werd gedurende in totaal 15 minuten na injectie.
Figuur 5 is het verschil tussen basislijnregistratie verkregen vóór de injectie en die verkregen na injectie in reactie op de MLA en zout controle oplossing. We hebben gevonden dat injectie van MLA resulteerde in het onvermogen van de GF-DLM weg naar een op een volgen 100 Hz bij stimulatie van de SBO in de hersenen tijdens de GF-TTM route onaangetast. (Figuur 5, Top en middelste spoor, t-test uitgevoerd tussen zout controles [0 ng / mg] en de verschillende concentraties van MLA op elk tijdstip, tenzij de gegevens zijn niet-parametrische [normaliteit en gelijke varianties getest], anders maken we gebruik een Mann-Whitney Rank Sum Test. * p <0,001). Echter een een-op-een response van het DLM werd waargenomen wanneer de motorische neuronen werden direct gestimuleerd (Figuur 5, onder spoor), waaruit blijkt dat de NMJ functie van de DLM en TTM niet wordt beïnvloed door MLA. MLA leek het maximale effect te bereiken 1 minuut na de injectie voor 0,04, 0,08 en 0,12 ng / mg van de MLA geïnjecteerd, omdat er geen verdere significante veranderingen werden waargenomen tijdens de volgende 15 minuten testperiode. Bovendien de verbinding bereikte effect op 0,08 ng / mg aangezien sterker reacties werden niet waargenomen met de hogere dosering van 0,12 ng / mg.

Figuur 1. De Giant Fiber System Schema van de Giant Fiber System (GFS). De Giant Vezels (GFS, aangegeven in rood) synaps elektrisch (gap junctions) als chemisch (cholinerge) op een Perifere Synapsing Interneuron (PSI, weergegeven in groen) en de Tergo Trochanteral Muscle neuron (TTMn, weergegeven in geel) 5. De PSI tot en met DLMn (Dorsale Longitudinale Muscle neuron, weergegeven in blauw) aansluiting is afhankelijk van Dα7 nAChR subtype 6. Tot slot de neuromusculaire synaps (NMS) van de TTMn en de DLMn op de sprong (TTM, te zien in paars) en de vlucht spieren (DLM, weergegeven in het paars) is glutamaat.
Opmerking: De GF aan PSI-verbinding is zowel elektrische en chemische. In shakB mutanten (welke spleet kruispunten missen) geen reactie worden opgenomen van de DLM bij stimulatie van de SBO in de hersenen, waaruit blijkt dat de chemische component in afwezigheid van elektrische aansluitingen niet voldoende is om een actiepotentiaal van de oproepen PSI 5,16-18. Omdat de GF om PSI-verbinding is gap junction afhankelijk is, dit figuur toont alleen de GAP-kruising bij de synaps voor de eenvoudigheid.

Figuur 2.
Micromanipulators set-up.
- Een gewijzigde opstelling van eerder gepubliceerd protocol 14 wordt de injectie micromanipulator geschikt voor gekoppeld GFS opnamen met gelijktijdige nanoinjections. De gemonteerde vlieg voorbereiding is georiënteerd met het hoofd van de vlieg naar de experimentator. De injectie micromanipulator (# 1) is geplaatst voor de experimentator tussen de twee voor het hanteren van het wolfraam stimulerende elektroden (2 # # en 3). De twee micromanipulators de glazen opname elektroden (# 4 en # 5) op de links en rechts respectievelijk. De micromanipulator van de wolfraam aardelektrode (# 6) wordt geplaatst verst in de rug of links (hier) of aan de rechterzijde.
- Een close-up van de top van de regeling van de verschillende elektroden en injectie micropipet.
- Een goed gemonteerde D. melanogaster gespietst met elektroden en injectie micropipet klaar voor injectie. Merk op dat het dier het lichaamwordt gemonteerd met zijn thorax horizontaal en zijn vleugels uitgespreid. De was wordt ingepakt in het lichaam te voorkomen dat het dier bewegen. Bovendien is de aardelektrode (# 6 in de buik) het glas opname elektroden (# 4 en # 5 in de thorax gemarkeerd door donkere lijnen) en stimulerende elektroden (# 2 # 3, een in elk oog ) worden doorboord in plaats zoals eerder beschreven 14. De injectie micropipet (# 1) is uitgelijnd met de middelste van de drie ocelli (omcirkeld). Het inbrengen van de injectie micropipet moeten worden geplaatst op dit gebied.

Figuur 3. Schuine injectie micropipet. Een schematische voorstelling van een goed afgeschuind micropipet wordt hier getoond. De elektrode opening moet worden afgeschuind in een hoek van 45 graden en hebben een opening tussen 11 en 17 urn. Een goede schuine injectie micropipet is cruciaal voor een soepele injectie met een minimum aan dSchade aan de vlieg.

Figuur 4. Algemeen schema van de nanoinjection / elektrofysiologie-protocol. Een vertegenwoordiger diagram van de algemene regeling voor de nanoinjection / elektrofysiologie protocol. Begin met het verkrijgen van een baseline-opname door het stimuleren van de Giant Fibers (GFS) bij 100 Hz met 10 treinen van 10 stimuli per stuk (maar een trein hier afgebeeld). Vóór injectie moet beginnen met de 1 Hz stimulaties een seconde uit elkaar. Tijdens de injectie (terwijl injector is aangesloten op de schakelkast), zult u in acht belangrijke achtergrond geluid, maar niet stoppen met de opnames. Na de injectie (en injector niet is aangesloten op schakelkast), voortzetting van de 1 Hz stimulatie voor ongeveer 1 minuut. Tenslotte gaat de SBO wijzen met 10 treinen 10 stimuli 100 Hz en de functie van de GF paden testen dit paradigma elke 5 minuten tot 15 minuten voortgezet. Opmerking: opnames wvoordat gemanipuleerd om de algemene regeling te maken en niet slechts een specifiek resultaat verkregen. Niet op schaal, zijn niet alle sporen weergegeven. Klik hier voor een grotere afbeelding .

Figuur 5. De effecten van MLA in het SBO.
- Een grafische voorstelling van de effecten van de α7 nAChR antagonist Methyllycaconitine citraat (MLA) van de GF-DLM route van de fruitvlieg in verschillende concentraties (0, 0,02, 0,04, 0,08, 0,12 ng / mg n = 10 per verbinding behandeling.; n = 15 voor zout behandeling). Slechts een minuut na injectie werd een significante en onmiddellijke effect te zien met 0,04 ng / mg van de MLA. Een significant effect werd ook gezien met 0.8ng/mg en 0.12ng/mg van de MLA bij 100 Hz stimulatie van de SBO. Werd geen significant verschil geconstateerd tussen de zoutoplossing controles en 0,02 ng / mg van de MLA. Bovendien, geen verandering in effect werd waargenomen na 1 minuut na injectie in de tijd onderzocht (15 minuten). A t-test werd uitgevoerd tussen zoutoplossing controle (0 ng / mg) en verschillende concentraties MLA op elk tijdstip. Levels worden gerapporteerd als gemiddelde + / - SEM, * p <0,001.
- Voorbeeld sporen van de DLM reacties op 100 Hz stimulatie. Top spoor toont de reacties van de spier voor MLA injectie bij GF stimulatie in de hersenen. Merk op dat de spier kan reageren elke stimulus een op een 100 Hz. Midden-trace toont de reacties van de DLM na MLA injectie (0,12 ng / mg). Merk op dat de spier niet kan reageren elke stimulus een op een 100 Hz. (Sterretjes). Bodemspoor toont de reacties van de DLM van hetzelfde preparaat (0,12 ng / mg) bij directe stimulatie van de motorische neuronen in de thorax. Omdat DLM reageert een op een 100 Hz met thoracale stimulatie kan het falen van de reacties met hersenen stimulatie worden toegeschreven aan de cholinerge PSI-DLMn verbinding.
- Een grafische voorstelling van de effecten met verschillende MLA concentraties (0, 0,02, 0,04, 0,08, 0,12 ng / mg) op de GF-TTM route. Er werden geen significante effecten waargenomen tussen zout (0 ng / mg) en samengestelde injecties op elk gewenst tijdstip. A t-test werd uitgevoerd tussen zoutoplossing controle (0 ng / mg) en verschillende concentraties MLA op elk tijdstip, * p <0,001.
- Voorbeeld sporen van de TTM reacties op 100 Hz stimulatie. Top spoor toont de reacties van de spier voor MLA injectie bij GF activering met stimulatie in de hersenen. Merk op dat de spier kan alle meer reageren bij 100 Hz. Midden-trace toont de reacties van de DLM na MLA injectie (0,12 ng / mg). Reacties van het TTM spier stimulatie van de GF in de hersenen blijven een op een. Bodemspoor toont de reacties van de TTM van dezelfde voorbereiding tot 100 Hz stimulatie van de motorische neuronen in de thorax (0,12 ng / mg).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De nanoinjection / elektrofysiologie bioassay hier gepresenteerde zorgt voor een snelle screening van verbindingen in het zenuwstelsel van de fruitvlieg. Dit is een nieuwe in vivo techniek dat kleine hoeveelheden van een verbinding vereist invloed op een verscheidenheid van eiwitten wekken in een goed gekarakteriseerd neuronale circuit. Deze methode kan worden gebruikt om de biologische activiteit van verschillende verbindingen testen van onbekende toxinen in de handel verkrijgbare farmacologische agentia.
...Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Geen belangenconflicten verklaard.
Dankbetuigingen
Wij willen de leden van de Mari-lab en de Godenschwege lab, te erkennen in het bijzonder Aline Yonezawa, voor commentaar en hulp bij dit protocol. Dit werk werd gefinancierd door het Nationaal Instituut voor Neurologische Aandoeningen en Stroke subsidie R21NS06637 naar FM-en TAG; AB werd gefinancierd door de National Science Foundation Award nummer 082925, URM: Integratieve Biologie voor toekomstige onderzoekers.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Naam van het serum | Vennootschap | Catalogusnummer | Reacties |
| Opname glaselektroden: borosilicaatglas haarvaten | Wereld Precision Instruments | 1B100F-4 | 1,0 mm OD, 0.58mm ID |
| Stimulator | Grass Instrumenten | Model S48 | |
| Versterker | Getting Instruments Inc | Model 5A | |
| Data acquisitie Software: Digidata | Molecular Devices | Model 1440A | |
| Het verzamelen van gegevens software: pCLAMP | Molecular Devices | Versie 10 | |
| Stereomicroscoop wet glasvezel microscoop ringlicht | AmScope | SM-4T Model HL250-AR | |
| Het ontleden van ruimte voor de montage | AmScope | SM-2TZ | |
| Kite Manual micromanipulator & kantelen Base | Wereld Precision Instruments | Model # M3301 Kite: Model # KITE-M3-L | |
| Drosophila melanogaster Wild 10E genotype (wild-type stam) | Bloomington Stock centrum | Stock # 3892 | |
| Verticale pipet trekker | David Kopf Instrumenten | Model 700C | |
| Injectie glas micropipetten: borosilicaatglas haarvaten | Wereld Precision Instruments | Catalogus # 4878 | 1.14mm OD, 0,5 mm ID |
| Silicon olie | Visser | Catalogus # S159-500 | |
| Beveler | Sutter Instrument Co | KT Brown Type Model # BV-10 | |
| Nanoliter2000 | Wereld Precision Instruments | Catalogus # B203XVY | |
| Blauwe kleurstof | McCormick | N / A | Ingrediënten: Water, Propylene Glycol, FD & C Blue 1, en 0,1% Propylparaben (conserveermiddel). |
| Methyllycaconitine citraat (MLA) | Tocris bio- | Catalogus # 1029 | |
| Plastic wax sticks | Hygiënisch Corporation (Akron Ohio USA) |
Referenties
- Koehn, F. E., Carter, G. T. The evolving role of natural products in drug discovery. Nat. Rev. Drug Discov. 4, 206-220 (2005).
- Miljanich, G. P. Ziconotide: neuronal calcium channel blocker for treating severe chronic pain. Curr. Med. Chem. 11, 3029-3040 (2004).
- Layer, R. T., Wagstaff, J. D., White, H. S. Conantokins: peptide antagonists of NMDA receptors. Curr. Med. Chem. 11, 3073-3084 (2004).
- Lewis, R. J. Conotoxins as selective inhibitors of neuronal ion channels, receptors and transporters. IUBMB Life. 56, 89-93 (2004).
- Allen, M. J., Godenschwege, T. A., Tanouye, M. A., Phelan, P. Making an escape: development and function of the Drosophila giant fibre system. Semin. Cell Dev. Biol. 17, 31-41 (2006).
- Fayyazuddin, A., Zaheer, M. A., Hiesinger, P. R., Bellen, H. J. The nicotinic acetylcholine receptor Dalpha7 is required for an escape behavior in Drosophila. PLoS biology. 4, e63(2006).
- Jan, L. Y., Jan, Y. N. L-glutamate as an excitatory transmitter at the Drosophila larval neuromuscular junction. The Journal of physiology. 262, 215-236 (1976).
- Usherwood, P. N., Machili, P., Leaf, G. L-Glutamate at insect excitatory nerve-muscle synapses. Nature. 219, 1169-1172 (1968).
- Marrus, S. B., Portman, S. L., Allen, M. J., Moffat, K. G., DiAntonio, A. Differential localization of glutamate receptor subunits at the Drosophila neuromuscular junction. The Journal of neuroscience : the official journal of the Society for Neuroscience. 24, 1406-1415 (2004).
- Petersen, S. A., Fetter, R. D., Noordermeer, J. N., Goodman, C. S., DiAntonio, A. Genetic analysis of glutamate receptors in Drosophila reveals a retrograde signal regulating presynaptic transmitter release. Neuron. 19, 1237-1248 (1997).
- Qin, G. Four different subunits are essential for expressing the synaptic glutamate receptor at neuromuscular junctions of Drosophila. The Journal of neuroscience : the official journal of the Society for Neuroscience. 25, 3209-3218 (2005).
- Schuster, C. M. Molecular cloning of an invertebrate glutamate receptor subunit expressed in Drosophila muscle. Science. 254, 112-114 (1991).
- Tanouye, M. A., Wyman, R. J. Motor outputs of giant nerve fiber in Drosophila. Journal of. 44, 405-421 (1980).
- Augustin, H., Allen, M. J., Partridge, L. Electrophysiological Recordings from the Giant Fiber Pathway of D. melanogaster. J. Vis. Exp. (47), e2412(2011).
- Allen, M. J., Godenschwege, T. Drosophila Neurobiology. Zhang, B., Freeman, M. R., Waddell, S. , Cold Spring Harbor Laboratory Press. 215-224 (2010).
- Blagburn, J. M., Alexopoulos, H., Davies, J. A., Bacon, J. P. Null mutation in shaking-B eliminates electrical, but not chemical, synapses in the Drosophila giant fiber system: a structural study. J. Comp. Neurol. 404, 449-458 (1999).
- Thomas, J. B., Wyman, R. J. Mutations altering synaptic connectivity between identified neurons in Drosophila. J. Neurosci. 4, 530-538 (1984).
- Baird, D. H., Schalet, A. P., Wyman, R. J. The Passover locus in Drosophila melanogaster: complex complementation and different effects on the giant fiber neural pathway. Genetics. 126, 1045-1059 (1990).
- Gorczyca, M., Hall, J. C. Identification of a cholinergic synapse in the giant fiber pathway of Drosophila using conditional mutations of acetylcholine synthesis. J. Neurogenet. 1, 289-313 (1984).
- Allen, M. J., Murphey, R. K. The chemical component of the mixed GF-TTMn synapse in Drosophila melanogaster uses acetylcholine as its neurotransmitter. The European journal of neuroscience. 26, 439-445 (2007).
- Mejia, M. A novel approach for in vivo screening of toxins using the Drosophila Giant Fiber circuit. Toxicon. 56, 1398-1407 (2010).
- Stork, T. Organization and function of the blood-brain barrier in Drosophila. J. Neurosci. 28, 587-597 (2008).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Tags
Drosophila-reuzenvezelsysteemnanoinjectie-elektrofysiologische assayscreening van verbindingen op bioactiviteitelektrofysiologische registratiesNanoliter 2000-injectorreuzenvezelpadanalyse van de neuromusculaire junctienicotinische acetylcholinereceptorenstimulatie van motorneuronencircuit voor de ontsnappingsrespons
