Het glycosyleringspatroon van een antilichaam bepaalt de klinische prestaties, dus industriële en academische inspanningen om glycosylatie te beheersen blijven bestaan. Omdat typische glyco-engineeringcampagnes tijd- en arbeidsintensief zijn, zou het genereren van een snel protocol om de impact van glycosyleringsgenen te karakteriseren met behulp van transiënte uitschakeling nuttig zijn.
Methodenartikel
Snelle antilichaamglycosengineering in ovariumcellen van Chinese hamsters
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Recombinante monoklonale antilichamen binden specifieke moleculaire doelen en induceren vervolgens een immuunrespons of remmen de binding van andere liganden. Monoklonale antilichaamfunctionaliteit en halfwaardetijd kunnen echter worden verminderd door het type en de verdeling van gastheerspecifieke glycosylering. Pogingen om superieure antilichamen te produceren hebben de ontwikkeling van genetisch gemodificeerde productiecellen geïnspireerd die glyco-geoptimaliseerde antilichamen synthetiseren. Glycoengineering vereist meestal het genereren van een stabiele knock-out- of knock-incellijn met behulp van methoden zoals geclusterd regelmatig interspaced short palindromic repeats (CRISPR) -geassocieerd eiwit 9. Monoklonale antilichamen geproduceerd door gemanipuleerde cellen worden vervolgens gekarakteriseerd met behulp van massaspectrometrische methoden om te bepalen of het gewenste glycoprofiel is verkregen. Deze strategie is tijdrovend, technisch uitdagend en vereist specialisten. Daarom kan een alternatieve strategie die gebruik maakt van gestroomlijnde protocollen voor genetische glyco-engineering en glycaandetectie helpen bij het streven naar optimale antilichamen. In deze proof-of-concept studie diende een IgG-producerende ovariumcel van een Chinese hamster als een ideale gastheer om glyco-engineering te optimaliseren. Kort interfererend RNA gericht op het Fut8-gen werd afgeleverd aan ovariumcellen van Chinese hamsters en de resulterende veranderingen in FUT8-eiwitexpressie werden gekwantificeerd. De resultaten geven aan dat knockdown door deze methode efficiënt was, wat leidde tot een vermindering van ~ 60% in FUT8. Aanvullende analyse van het antilichaamglycoprofile werd uitgevoerd met behulp van een snelle maar zeer gevoelige techniek: capillaire gel-elektroforese en lasergeïnduceerde fluorescentiedetectie. Alle knockdown-experimenten toonden een toename van geafucosyleerde glycanen; de grootste verschuiving die in deze studie werd bereikt, was echter ~ 20%. Dit protocol vereenvoudigt glyco-engineeringinspanningen door gebruik te maken van silico-ontwerptools , commercieel gesynthetiseerde gen-targetingreagentia en snelle kwantificeringstests die geen uitgebreide eerdere ervaring vereisen. Als zodanig kan de tijdsefficiëntie die dit protocol biedt, helpen bij het onderzoeken naar nieuwe gendoelen.
Inleiding
N-gebonden glycosylering is een enzymatisch proces waarbij oligosaccharide moieties covalent worden gekoppeld aan Asn-residuen. In tegenstelling tot de novo eiwitsynthese is glycaansynthese een niet-templated reactie die resulteert in heterogene glycosylering van eiwitten. De structuur, samenstelling en distributie van glycanen kunnen de eiwitconformatie en -functie beïnvloeden. Inderdaad, N-glycosylatie in het kristalliseerbare fragment (Fc) gebied van immunoglobuline G (IgG) reguleert de therapeutische werkzaamheid, immunogeniciteit en halfwaardetijd van het antilichaam1. Als zodanig identificeert het quality by design (QbD) paradigma voor de ontwikkeling van recombinante biotherapeutische eiwitproducten glycosylatie op natuurlijke wijze als een kritisch kwaliteitsattribuut (CQA)2,3. Zoogdiercellen zijn vaak de voorkeurssystemen omdat ze inherent mensachtige glycosylatiepatronen produceren die nauwer liggen dan bacteriën, gisten, insecten of plantencellen. Bovendien worden ovariumcellen van Chinese hamsters (CHO) geselecteerd boven andere cellijnen van zoogdieren omdat ze resistent zijn tegen menselijke virusinfectie, producten afscheiden bij hoge titers en in suspensiecultuur kunnen worden gekweekt tot hoge levensvatbare celdichtheden4. Met betrekking tot de vorming van glycanen genereren niet-CHO-muizenproductiecellen immunogene glycanen (α(1-3)-gebonden galactose [α(1-3)-Gal] en N-glycolylneuraminezuur [NeuGc]) die het veilige gebruik van monoklonale antilichamen (mAbs)beïnvloeden 5. Deze voordelen maken CHO-cellen het belangrijkste expressiesysteem, verantwoordelijk voor de productie van meer dan 80% van de nieuwe biotherapeutica tussen 2014 en 20186. Sjabloononafhankelijke glycosylatie is echter een geconserveerd mechanisme dat leidt tot CHO-afgeleide biotherapeutica met een reeks glycoformen.
Biotherapeutische ontwikkelingsstrategieën zijn gericht op het beheersen van heterogeniteit in CHO-cellen door genetische manipulatie. Enkele literaire voorbeelden zijn de knockdown van sialidases (Neu1, Neu3)7, GDP-mannose 4,6-dehydratase (GMD) knock-out8 en overexpressie van glycosyltransferasen (GnTIII)9. Vooruitgang in glyco-engineering is mogelijk dankzij een combinatie van openbaar beschikbare middelen, zoals het CHO-genoom10, en de voortdurende ontwikkeling van genetische manipulatietools, zoals transcriptieactivator-achtige effectornucleasen (TALENs), zinkvingernucleasen (ZFN's) en geclusterde regelmatig interspaced korte palindromische herhalingen (CRISPR)-geassocieerd eiwit 9 (CRISPR-Cas9)11,12,13,14 . Deze hulpmiddelen worden meestal geleverd aan CHO-cellen als plasmide-DNA of als gezuiverde ribonucleoproteïne (RNP) -complexen. Omgekeerd is RNA-interferentie (RNAi) een genetische manipulatietechnologie die, in zijn eenvoudigste vorm, alleen de levering van gezuiverde kortinterferentie RNA (siRNA) oligonucleotiden vereist. Endogene eiwitten verwerken dubbelstrengs siRNA tot enkele strengen, en het nuclease, RNA-geïnduceerd uitschakelingscomplex (RISC), vormt een complex met siRNA om doel-mRNA-sequenties te splitsen 15,16,17. Gen-uitschakeling via deze methode is van voorbijgaande aard vanwege RNA-instabiliteit, maar het onderzoek hierin maakt gebruik van deze functie om snelle screening te ondersteunen.
Het modelenzym dat voor de huidige studie is geselecteerd, α1,6-fucosyltransferase (FUT8), produceert N-glycanen met α-1,6 core-linked L-fucose (Fuc). Deze modificatie is een primaire determinant van antilichaamafhankelijke celcytotoxiciteit (ADCC) activiteit, zoals blijkt uit studies van commerciële antilichamen. Bij afwezigheid van kernfucosylatie verhoogt Rituximab (anti-CD20 IgG1) ADCC 50-voudig en verhoogt ADCC in Trastuzumab (anti-Her2 IgG1) door fcgRIIIa-binding18,19 te verbeteren. Kernfucosylatie wordt daarom beschouwd als een ongewenst kenmerk van mAbs dat inspanningen rechtvaardigt om dit fenotype om te keren. Er zijn voorbeelden van succesvolle Fut8-gentargeting met behulp van siRNA met gelijktijdige toename van ADCC 20,21,22, hoewel deze voorbeelden Fut8-siRNA leveren dat is gecodeerd op plasmide-DNA. Dergelijke experimenten genereren stabiele gen-uitschakeling omdat plasmide-DNA dient als een sjabloon voor siRNA-synthese. Hierdoor kunnen cellen siRNA-moleculen aanvullen die worden afgebroken door intracellulaire RNases en fosfatasen. Omgekeerd maakt de levering van exogene synthetische siRNA alleen voorbijgaande gen-uitschakeling mogelijk, omdat siRNA niet kan worden aangevuld vanwege het ontbreken van een intracellulaire sjabloon. Gebruikers moeten dus overwegen of experimentele ontwerpen compatibel zijn met van plasmide afgeleid of synthetisch siRNA. Studies gericht op piek mAb-productie, meestal dag zes van de cultuur23,24, kunnen bijvoorbeeld kiezen voor synthetisch siRNA dat een paar dagen voor de piekexpressie aan cellen kan worden geleverd. De voordelen van een voorbijgaande benadering met behulp van synthetisch siRNA omvatten de mogelijkheid om de productie uit te besteden en het feit dat meerdere siRNA-constructen kunnen worden gegenereerd in een fractie van de tijd die nodig is om constructen in plasmiden te genereren. Bovendien is synthetisch siRNA effectief, zoals blijkt uit literatuurvoorbeelden van Fut8-genuitschakeling die voldoende zijn om FUT8-eiwitexpressie25 te verminderen en afucosylated IgGs met verhoogde FCgRIIIa-binding en ADCC26 te produceren.
Het succes van dit glycoengineeringsprotocol werd bepaald door de mate van Fc-glycosylering. Massaspectrometrie is normaal gesproken de voorkeursmethode voor glycomische analyses; capillaire gel-elektroforese en lasergeïnduceerde fluorescentiedetectie (CGE-LIF) is echter perfect vatbaar voor het oplossen van het glycoprofiel van gezuiverde IgG's en heeft het voordeel van grotere snelheid en eenvoud. Massaspectrometrieprotocollen moeten de juiste chromatografische en derivatisatiemethoden, ionisatiebronnen en massaanalysatorencombineren 27,28,29. Naast het vereisen van een getrainde specialist, zijn massaspectrometrieprotocollen lang en de diversiteit aan methoden maakt gegevens moeilijk te vergelijken tussen laboratoria met verschillende opstellingen. In de context van biofarmaceutica is CGE-LIF een gevoelige methode die voldoende details van een antilichaamglycoprofile kan geven en gemakkelijk schaalbaar is voor high-throughput methoden. Voor lage abundantie, zeer complexe mengsels met slecht gekarakteriseerde glycoproteïnen, kunnen de voordelen van massaspectrometrie blijven bestaan. De hoge resolutie en zeer gevoelige mAb-analyses die worden geboden door CGE-LIF-gebaseerde N-glycan-analyse dienen echter als een reden om deze methode te testen. Bovendien zijn de monstervoorbereiding en -analyse in slechts enkele urenvoltooid 30. Recente studies hebben aangetoond dat CGE-LIF kan worden gebruikt om glycanen afgeleid van menselijk plasma31, muis32 en CHO IgGs33 te monitoren. Deze studies benadrukken het gebruik van CGE-LIF voor monsteranalyse met hoge doorvoer en kleine monstervolumes.
De CGE-LIF-methode heeft beperkingen waarmee rekening moet worden gehouden. Kosten zijn een belangrijke barrière voor het gebruik van deze en andere apparaten voor glycaananalyse. Deze kosten zijn echter typisch binnen het veld en CGE-LIF wordt beschouwd als een kosteneffectieve optie34. Laboratoria met kleinere budgetten kunnen het praktischer vinden om machines te leasen of monstersanalyse uit te besteden. Een andere overweging van elke analysemethode is herhaalbaarheid. Evaluatie van CGE-LIF werd uitgevoerd met behulp van 48 replica's van hetzelfde monster die op verschillende dagen werden getest. De relatieve standaarddeviatie per capillair werd bepaald voor intrabatch en interbatch herhaalbaarheid. De intrabatch-vergelijking van replicaties bleek een relatieve standaarddeviatie van 6,2% te hebben, wat aangeeft dat de capillaire prestaties niet uniform zijn. Verder toonde een vergelijking van interbatch-gegevens een relatieve standaarddeviatie van 15,8% 31, wat aangeeft dat de capillaire prestaties in de loop van de tijd veranderen. De geconstateerde operationele tekortkomingen zijn mogelijk niet van toepassing in de huidige studie, waarin verschillende machines en eigen reagentia worden gebruikt. Als gebruikers van plan zijn om een intern protocol te ontwikkelen, is het de moeite waard om de studie van Ruhaak et al. te overwegen. 31, die de reagentia voor CGE-LIF zorgvuldig heeft geëvalueerd. Als zodanig zijn de reagentia voor monsterinjectie (Hi-Di Formamide en DMSO), glycaanetikettering (NaBH3CN of 2-picoline boraan)31 en andere geoptimaliseerd.
Deze studie presenteert een tijdsefficiënt glyco-engineeringprotocol dat de snelheid van directe RNAi combineert met downstream glycomische analyse. De methodologie wordt geïllustreerd met behulp van het Fut8-gen als doelwit om de hierboven beschreven redenen.
Protocol
1. DsiRNA-ontwerp en reconstitutie
- Gebruik Safari, Firefox of Microsoft Edge om toegang te krijgen tot de IDT-website (https://eu.idtdna.com). Selecteer op de startpagina het tabblad Producten en services , gevolgd door RNA-interferentie. Als u aangepaste dsiRNA-constructies (dicer-substrates) wilt genereren die gericht zijn op het Fut8-gen , selecteert u Ontwerpgereedschap gevolgd door het tabblad Aangepast dsiRNA genereren .
- Voer het Fut8-toetredingsnummer in of voer handmatig de gensequentie in om te beginnen. In deze studie werden de voorgestelde Fut8-sequenties van zowel "CHO-K1" als "Chinese Hamster" -vermeldingen verkregen uit https://chogenome.org en gebruikt om DsiRNA te genereren. De meeste genen hebben verschillende transcriptvarianten en het is belangrijk om te verifiëren dat DsiRNA actief zou zijn op alle gerapporteerde varianten in de huidige assemblage.
- Selecteer de optie om een "Manual BLAST" -zoekopdracht uit te voeren, omdat het CHO-celgenoom momenteel niet beschikbaar is als een "referentiegenoom" op de IDT-website. Deze stap zoekt naar overeenkomsten tussen aangepaste DsiRNA-sequenties en het genoom van belang.
- Klik op Zoeken om DsiRNA-sequenties te genereren.
- Beoordeel op zijn beurt de specificiteit van elk DsiRNA met behulp van de functie "Manual BLAST" met het belastingnummer: 10029 (CHO-cellijnen en Chinese hamster). Querydekkingsresultaten geven aan dat DsiRNA-constructies overeenkomen met Fut8 (inclusief Fut8-transcriptvarianten ) op 100%, terwijl de complementariteit ten opzichte van onbedoelde doelen ≤76% 35 is.
- Controleer of het DsiRNA zich specifiek richt op Fut8 om ervoor te zorgen dat het GC-gehalte tussen 30% en 50% ligt. Een laag GC-gehalte wordt geassocieerd met zwakke en niet-specifieke binding, terwijl een hoog GC-gehalte het afwikkelen en laden van siRNA in het RISC-complexremt 36.
- Selecteer drie DsiRNA voor gebruik in transfectiestudies (tabel 1), elk gericht op een andere locatie van het Fut8-gen . Koop een vooraf ontworpen niet-targeting of gecodeerd dsiRNA van IDT voor controle-experimenten.
- Bij aankomst centrifugeer je het DsiRNA bij 13.300 x g gedurende 1 minuut tot pellet voordat je de buis opent. Reconstitueer elk gelyofiliseerd DsiRNA in nucleasevrije duplexbuffer (geleverd door IDT) tot een 100 μM stockoplossing. Voeg bijvoorbeeld 20 μL buffer toe aan 2 nmol DsiRNA om een voorraad van 100 μM te verkrijgen.
- Om voldoende menging te garanderen, incubeert u de stamoplossingen gedurende 30 minuten bij kamertemperatuur terwijl u zachtjes schudt op een orbitale schudder (50 tpm, 16 mm baan).
- Maak een mastermix door 20 μL van elk DsiRNA-construct te combineren dat zich richt op Fut8 (100 μM van elk DsiRNA). Bereid aliquots en bewaar bij −20 °C.
| DsiRNA-doelwit | Volgorde | GC (%) | ||
| Structuur A | 5' GAGAAGAUAGAAACAGUCAAAUACC 3' | 36% | ||
| 5' GGUAUUUGACUGUUUCUAUCUUCUCUCUC 3' | ||||
| Structuur B | 5' AGAAUGAGAAUGGAUGUUUUUCCTT 3' | 32% | ||
| 5' AAGGAAAAACAUCCAUUCUCAUUCUGA 3' | ||||
| Structuur C | 5' AGAGAAGAUAGAAACAGUCAAAUAC 3' | 32% | ||
| 5' GUAUUUGACUGUUUCUAUCUUCUCUCG 3' | ||||
Tabel 1. DsiRNA-sequenties die worden gebruikt voor Fut8-knockdown. Sequenties gegenereerd door IDT die zich richten op Fut8 in het genoom van Chinese hamsters en CHO K1-cellen. De zintuig- en antisense-sequenties voor elke constructie worden (respectievelijk) weergegeven en de GC-inhoud van elke structuur wordt weergegeven. Herdrukt van Kotidis et al. 52.
2. DsiRNA-transfectie
- Revive CHO-cellen die een IgG monoklonaal antilichaam37 tot expressie brengen met behulp van kweekomstandigheden die geschikt zijn voor de cellijn van belang.
OPMERKING: De cellen die in deze studie werden gebruikt, werden gegenereerd met behulp van het glutaminesynthetase (GS) -systeem, waarbij endogene GS wordt geremd door L-methioninesulfoximine (MSX) om de selectie van zeldzame hoogproducerende klonen te verbeteren. Gebruik daarom alleen MSX als dit nodig is voor de cellijn van keuze.- Ontdooi een injectieflacon met cellen gedurende 2-3 minuten in een waterbad ingesteld op 37 °C. Reinig de buitenkant van de injectieflacon met 70% (v/v) ethanol en ga verder met al het werk in een bioveiligheidskast van klasse II.
- Breng de celsuspensie over in een centrifugebuis van 15 ml met 9 ml voorbewarmd medium dat geschikt is voor de cellijn van keuze. Pelleteer de cellen door centrifugeren bij 100 x g gedurende 5 min.
- Verwijder het medium voorzichtig en gooi het weg zonder de celpellet te verstoren. Resuspendeer vervolgens de celpellet in 10 ml voorgewarmd medium en neem een aliquot voor het tellen.
- Kleur de cellen met Trypan blauw als je telt met een hemocytometer, of een geschikte kleuring om levende / dode cellen te onderscheiden bij gebruik van een geautomatiseerde celteller.
- Breng volgens een van beide methoden van inventarisatie een geschikt volume celsuspensie over naar een Erlenmeyer-schudfles van 125 ml bij een levensvatbare celdichtheid van 3 x 10⁵ cellen·ml-1 in 30 ml medium (met optionele suppletie van 50 μM MSX).
- Breng cellen over naar een incubator ingesteld op 36,5 °C, 5% CO2 en plaats op een schuddend platform bij 150 rpm (16 mm baan).
- Passagecellen om de 3-4 dagen bij een zaaidichtheid van 2 x 10⁵ cellen·ml-1 en een werkvolume van 50 ml in een Erlenmeyer van 250 ml. Als u MSX gebruikt, stop dan met suppletie na de eerste passage.
- Passagecellen 2x naast het ontdooien.
- Transfectie
- Beoordeel de celdichtheid en zorg ervoor dat de levensvatbaarheid van de cel groter is dan 90%.
- Reinig de bioveiligheidskast en alle apparatuur zorgvuldig met 70% (v/v) ethanol en een RNase-remmeroplossing om besmetting te voorkomen.
- Pelletcellen bij 100 x g gedurende 5 minuten en resuspenseren in voorbewarmd medium tot een levensvatbare celdichtheid van 5 x 10⁶ cellen·ml-1.
- Breng 8 μL (overeenkomend met 1 μM) van het DsiRNA-mastermengsel of -controle over naar een steriel (0,4 cm) elektroporatiecuvet. Breng vervolgens 800 μL van de celsuspensie (overeenkomend met 4 x 10⁶ cellen) over naar hetzelfde cuvet en zorg ervoor dat beide componenten worden gemengd.
- Lever de volgende pulsomstandigheden: 1200 V, 0,1 ms, blokgolfvorm.
- Breng de celsuspensie over van de cuvette naar een put van een 6-well plaat en zorg ervoor dat schuimachtig materiaal wordt vermeden. Herstel de cellen in de incubator (36,5 °C, 5% CO2) zonder gedurende 10 minuten te schudden.
- Voeg 800 μL voorgewarmde media toe om een eindvolume van 1,6 ml per put te maken en breng de getransfecteerde cellen terug naar de incubator voor groei (36,5 ° C, 5% CO2) terwijl u schudt bij 150 tpm (16 mm baan).
- Oogst de supernatanten en cellen op 48 uur na de transfectie.
Stoppunt: Het celkweeksupernatant kan bij -20 °C worden gehouden; het is echter raadzaam dat cellyse onmiddellijk na het verzamelen van celpellets wordt uitgevoerd om eiwitafbraak te voorkomen. Supernatanten worden gebruikt in stap 3, stap 4 en stap 5, terwijl celpellets worden gebruikt in stap 6.
3. IgG-kwantificering en -zuivering
- Meet de IgG-concentratie met behulp van biolaaginterferometrie of een andere methode naar keuze.
- Hydrateer eiwit Een biosensor tips in monster verdunningsmiddel gedurende 10-30 min. Breng in de tussentijd celsuspensies over in 15 ml centrifugebuizen en pelletcellen bij 100 x g gedurende 5 minuten of verwijder cellen door filtratie door een nitrocellulosefilter van 0,45 μm.
- Breng zonder de pellet te verstoren het geïsoleerde supernatant dat IgG bevat voorzichtig over in een schone centrifugebuis.
- Gebruik de volgende instellingen voor biolaaginterferometrie: schuddersnelheid, 2200 tpm; looptijd, 60 s. Deze parameters zullen worden gebruikt om alle monsters en controles te meten.
- Zodra de tips van de biosensor zijn gehydrateerd, maakt u een standaardcurve met behulp van een IgG-standaard (4 μL van elke concentratie).
- Kwantificeer monsterconcentraties door 4 μL van het celsupernatant te laden. Reinig het apparaat met pluisvrije doekjes tussen elk monster.
- Koppel de standaardcurve aan de onbekende monsters om de bindingssnelheid van de onbekende monsters te interpoleren. Sla de gegevens op en exporteer ze als csv- of PDF-bestand.
- IgG zuivering
- Bereid de elutiebuffer met 0,2 M glycine (pH 2,5) en steriliseer door een filter van 0,22 μm.
- Filtreer 1 ml van het geïsoleerde supernatant bij kamertemperatuur met behulp van 0,22 μm microcentrifugefilterbuizen totdat het hele supernatant er doorheen stroomt.
- Pellet 150-200 μL eiwit A agarose kralen in 1,5 ml centrifugebuizen bij 100 x g gedurende 3 minuten en gooi het supernatant weg. Was vervolgens de eiwit A-kralen met 150-200 μL celkweekmedium en herhaal centrifugatie. Gooi het supernatant weg.
- Resuspensie van het in evenwicht gebrachte eiwit A-kralen met 1 ml van de bereide supernatanten uit stap 3.2.3. en laad in een polypropyleenbuis van 1 ml. Bevestig de polypropyleen buis aan een roterende mixer (15 mm baan) en draai bij 30 rpm gedurende 60-90 minuten bij kamertemperatuur of 's nachts bij 4 °C.
- Nadat de incubatie is voltooid, verzamelt u de doorstroom en wast u de kralen met 1 ml 1x PBS om eventuele ongebonden eiwitten te verwijderen. Verzamel ook de wasfractie.
- Elute IgG uit het eiwit A parelt door 3 ml elutiebuffer toe te voegen aan de polypropyleenkolom. Verzamel opeenvolgende fracties die uit de kolom (elk 500 μL) in gelabelde buizen worden afgevoerd.
- Optioneel: Als het gezuiverde antilichaam moet worden opgeslagen, neutraliseer dan de elutiebuffer door 25 μL 1 M Tris pH 9,5 toe te voegen. Sla deze stap over als het antilichaam onmiddellijk wordt verwerkt via bufferuitwisseling, enz.
OPMERKING: Alle delen van de zuivering (doorstroom, wasbeurten en alle elutiefracties) moeten worden bewaard om ervoor te zorgen dat het doeleiwit niet verloren gaat. Deze monsters kunnen ook helpen bij het oplossen van problemen als de zuivering niet succesvol is. - Gebruik de eerste elutie (elutie A) voor downstreamverwerking, maar bewaar alle andere fracties als ze in de toekomst nodig zijn.
4. Bufferuitwisseling en monsterconcentratie
- Wissel IgG-elutiebuffer uit met 1x PBS.
- Belastingselution A op een 3 kDa moleculaire gewichtsafsnijding centrifugaalconcentrator. Raadpleeg de handleiding van de fabrikant bij het selecteren van een geschikte MWCO-kolom. In dit experiment zorgt een kleinere poriegrootte voor maximale retentie van uitgescheiden eiwit, maar verhoogt ook de centrifugatietijd.
- Centrifugeer bij 13.300 x g gedurende 40-50 minuten bij 4 °C. De centrifugatie is voltooid zodra het restvolume gelijk is aan of kleiner is dan 50 μL.
- Gooi de doorstroom weg en voeg 500 μL vooraf gegraveerde (4 °C) 1x PBS toe om het resterende supernatant te verdunnen. Centrifugeer het monster opnieuw onder dezelfde omstandigheden (13.300 x g gedurende 40-50 minuten bij 4 °C) totdat er 50 μL resterend supernatant overblijft.
- Voeg 500 μL voorgekookte (4 °C) 1x PBS toe om het resterende supernatant te verdunnen en herhaal het centrifugatieproces opnieuw om een verdunning van 100x van het supernatant te verkrijgen.
- Concentreer het supernatant tot een eindconcentratie van ~2,5 g· L-1 in 40 μL of minder om compatibiliteit met de glycaananalysemethode te garanderen.
OPMERKING: 100 μg moet worden geladen voor glycaananalyse.
Stoppunt: Het geconcentreerde IgG (in 1x PBS) kan worden bewaard bij −20 °C en ontdooid voorafgaand aan glycaananalyse.
5. Glycaan analyse
- Voer glycaananalyse uit met behulp van capillaire gel-elektroforese volgens de instructies van de fabrikant.
- Breng 200 μL van de magnetische kraaloplossing over naar een PCR-buis van 0,2 ml en plaats deze op de magnetische standaard om de kralen van het supernatant te scheiden.
- Verwijder voorzichtig het supernatant en verwijder de buizen van de magnetische standaard. Voeg het gezuiverde eiwitmonster en de vortex toe om volledige menging te garanderen.
- Voeg de denaturatiebuffer (meegeleverd) toe aan de monsterbuis en incubeer gedurende 8 minuten bij 60 °C. Houd de monsterbuizen open voor optimale reactieprestaties.
- Voeg PNGase F (500 eenheden per monster) toe en incubeer gedurende 20 minuten bij 60 °C om glycanen uit de gezuiverde antilichamen te splitsen.
- Sluit na het vrijkomen van N-glycanen de monsterbuis en vortex. Voeg acetonitril, vortex en incubeer gedurende 1 min bij kamertemperatuur.
- Plaats de monsterbuizen in de magnetische standaard om de kralen van de oplossing te scheiden. Gebruik een pipet om het supernatant voorzichtig te verwijderen zonder de kralen aan te raken.
- Voeg in een zuurkast de glycaan-etiketteringsoplossing met een fluorofoor toe aan het monster. Vortex om voldoende menging te garanderen en incubeer bij 60 °C gedurende 20 minuten (open deksels).
- Was het monster 3x in acetonitril om overtollige kleurstof te verwijderen. Eluuteer vervolgens de gelabelde glycanen in DDI-water (meegeleverd).
- Plaats de monsterbuis in de magnetische standaard om de kralen te scheiden van het supernatant dat gezuiverde en gelabelde glycanen bevat.
- Bereid de glucoseladderstandaard, bracketing-normen en monsters voor en laad deze in de aangewezen trayposities. Voer het glycaananalyseprotocol uit.
- Gebruik geschikte software om de glycanen in het monster te analyseren en te identificeren.
OPMERKING: Zorg ervoor dat de temperatuur in het warmteblok nauwkeurig is voor efficiënte incubatie.
6. Westerse vlek
- Kwantificeer knockdown-efficiëntie met behulp van western blot-analyse met een anti-α-1,6-fucosyltransferase-antilichaam. Polyacrylamide gels en bufferrecepten zijn verkrijgbaar bij commerciële leveranciers38,39.
- Tel 48 uur na de transfectie de cellen met behulp van een hemocytometer of een geautomatiseerde celteller en bepaal het volume van de celsuspensie gelijk aan 5 x 10⁶ cellen.
- Breng het juiste volume celsuspensie van elke experimentele toestand over naar een steriele centrifugebuis en pellet van 1,5 ml bij 13.200 x g gedurende 10 minuten bij 4 °C. Gooi het supernatant weg.
- Lyse de cellen met 200 μL lysisbuffer (geschikt voor de extractie van eiwitten uit zoogdiercellen) met 1% v/v proteaseremmercocktail bij kamertemperatuur gedurende 10 min. Schud het mengsel voorzichtig tijdens de incubatie (50 rpm, 16 mm baan).
- Om het cellulaire vuil te verwijderen, centrifugeert u het lysaat op 13.200 x g gedurende 10 minuten en brengt u het geklaarde lysaat vervolgens over in een steriele buis van 1,5 ml.
- Meet de eiwitconcentratie van elk lysaat met behulp van een spectrofotometer bij 280 nm. Bereid vervolgens aliquots van elk monster aangepast om dezelfde eiwitconcentratie te hebben.
- Denatureer de eiwitmonsters door incubatie bij 100 °C gedurende 10-15 minuten in DTT-SDS-monster ladende kleurstof; de uiteindelijke kleurstofconcentratie is 1x.
- Laad 15 μL van de gedenatureerde monsters en 5 μL voorgekleurde eiwitladder in een SDS-PAGE-gel met 12,5% oplossende gel voor een efficiënte scheiding. Voer de monsters uit op 25 mA per gel gedurende 90 minuten of totdat de kleurstof voorkant het einde van de gel bereikt.
- Verwijder de gel voorzichtig van de cassette en incubeer in 1x transferbuffer met methanol.
- Bereid het natte transfersysteem voor en activeer een PVDF-membraan met methanol. Monteer de gel en het PVDF-membraan voor natte overdracht, plaats een ijsblok in de overdrachtstank en dompel de hele tank onder in ijs om ervoor te zorgen dat de overdrachtsomstandigheden koud blijven. Draai op 350 mA/100 V gedurende 60 min.
- Blokkeer het membraan door gedurende 30 minuten bij kamertemperatuur in een blokkerende oplossing te broeden terwijl u zachtjes schudt op een orbitale shaker bij 50 rpm (16 mm baan).
- Spoel het membraan af met steriel water gedurende 5 minuten en herhaal. Gebruik vervolgens een schoon scalpel om het membraan voorzichtig horizontaal te snijden bij ~ 50 kDa, met behulp van de zichtbare eiwitladder als leidraad.
- Incubeer het membraan met eiwitten groter dan 50 kDa met anti-α-1,6-fucosyltransferase-antilichaam op 1:1000 in een antilichaamverdunningsbuffer. Incubeer het membraan met geïmmobiliseerde eiwitten van minder dan 50 kDa met anti-GAPDH op 1:10.000 in verdunningsbuffer. Membranen kunnen gedurende 1 uur bij kamertemperatuur of 's nachts bij 4 °C worden geïncubeerd.
- Was de membranen gedurende 5 minuten (x3) en incubeer vervolgens met een geschikt secundair antilichaam gedurende ten minste 30 minuten bij kamertemperatuur.
- Voer 3x wasbeurten uit met een wasbuffer gedurende 5 minuten, gevolgd door 3x wasbeurten met water. Ontwikkel vervolgens het membraan met een chromogeen substraat (of een geschikt detectiereagens) totdat er banden verschijnen (1-60 min).
- Spoel het membraan 2x af met water en laat het vervolgens drogen. Maak een beeld van het membraan en voer densitometrische analyse uit40.
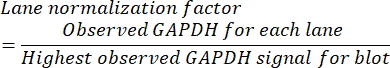
- Om de relatieve eiwitexpressie in elk monster te berekenen, berekent u eerst de verhouding van het GAPDH-signaal in monsters. Dit is de normalisatiefactor voor elk monster dat corrigeert voor discrepanties in het laden van het monster.
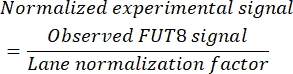
- Deel de FUT8-signaalintensiteit (voor elke rijstrook) door de normalisatiefactor van de overeenkomstige baan om de relatieve FUT8-eiwitexpressie te verkrijgen.
Resultaten
Western blot-analyse toonde verminderde FUT8-eiwitexpressie in cellen getransfecteerd met een mengsel van drie Fut8 DsiRNA-constructen. In controlemonsters getransfecteerd met niet-gericht DsiRNA verscheen FUT8 als een dubbele band bij ~ 65 en 70 kDa. Aangezien het voorspelde molecuulgewicht van FUT8 66 kDa is, is een vermindering van de signaalintensiteit van de lagere molecuulgewichtsband indicatief voor gen-uitschakeling. Om gen-uitschakeling te bevestigen en te kwantificeren, werd het niveau van FUT8-eiwit genormaliseerd naar het relatieve GAPDH-eiwitniveau. Western blot analyse detecteerde twee banden voor GAPDH bij ~37 en 35 kDa. De hogere molecuulgewichtsband komt overeen met de voorspelde eiwitgrootte en wordt daarom gebruikt in normalisatieberekeningen. Wanneer genormaliseerd tegen GAPDH-eiwitniveaus, was de FUT8-eiwitexpressie met maximaal 60% verminderd (figuur 1).
In overeenstemming met de observatie van gen knockdown op 48 h na transfectie, werden overeenkomstige mAb-monsters verwerkt voor analyse door CGE- LIF. Glycanstructuren van knockdowncellen vertoonden een afname van fucosylatie. Deze trend was het meest uitgesproken in geagalactosyleerde structuren (G0F) en in mindere mate waargenomen in galactosylated structuren (G1F, G1F' en G2F). Uit deze dataset daalde de totale IgG-kernfucosylatie tot ~ 75%, een daling ten opzichte van ~ 95% kernfucosylatie waargenomen voor de negatieve controleconditie (figuur 2). Een grotere vermindering van kernfucosylatie werd verwacht gezien de ~ 60% afname van FUT8-eiwitniveaus. Bij nader inzien is het opmerkelijk dat het glycoprofiel geglycosyleerde mAbs vertegenwoordigt die zich gedurende een periode van 48 uur sinds transfectie hebben opgehoopt, terwijl gen-uitschakeling alleen eiwitniveaus vertegenwoordigt die aanwezig zijn op het moment van oogsten.
Verder onderzoek van deze knockdown-methode omvatte het variëren van de DsiRNA-concentratie, oogsttijd en elektroporatieomstandigheden. Elke factor werd individueel onderzocht om de relevantie ervan te bepalen. De impact van elektroporatiepulscondities op kernfucosylatie en levensvatbaarheid van cellen wordt vastgelegd in experimenten B, C, D en E. Deze resultaten tonen een tweevoudige vermindering van kernfucosylatie door elektroporatie met behulp van twee blokgolfpulsen (Experiment C) in vergelijking met een enkele blokgolfpuls (Experiment B), zonder significante verschillen in levensvatbaarheid van cellen (Tabel 2). Elektroporatieconditie e3 (experiment D) leidde tot de laagste levensvatbaarheid van cellen (~ 90%) en IgG-opbrengst op dit tijdstip. Cellen die de elektroporatie-gebeurtenis overleefden, werden echter matig getransfecteerd, zoals blijkt uit de ~ 10% afname van kernfucosylatie (tabel 2). Interessant is dat experiment D elektroporatiecondities gebruikte die de grootste vermindering van kernfourylatie opleverden (14,7%), maar duidelijk schadelijk waren voor de levensvatbaarheid van cellen (91% -93% levensvatbaarheid). Deze beperkte reeks experimenten illustreert de noodzaak om elektroporatie-instellingen te bepalen die voldoende permeabilisatie van het celmembraan mogelijk maken zonder onherroepelijke schade te veroorzaken. Het is ook interessant om de rol van siRNA-concentratie en oogsttijd op kernfucosylatie op te merken. Over het algemeen heeft het verhogen van de siRNA-concentratie een grotere invloed op de kernfucosylatie dan het verhogen van de oogsttijd (experimenten B, F, G versus experimenten A, B, H). In toekomstige experimenten zou het interessant zijn om de siRNA-concentraties te titreren die worden geleverd door de elektroporatiemethode e2.
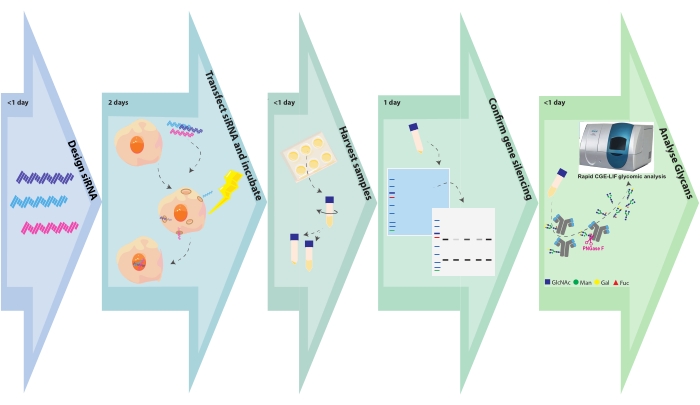
Figuur 1. Experimenteel stroomschema. Glycoengineering en monsteranalysestappen worden weergegeven met de bijbehorende tijd die nodig is voor elke stap. SiRNA-ontwerp duurt enkele uren, afhankelijk van het aantal gendoelen of constructen per gendoelwit. CHO-celtransfectie met siRNA is binnen een paar uur voltooid en getransformeerde cellen worden 48 uur lang laten groeien. Celpellets en supernatanten worden binnen enkele uren geoogst. Celpellets worden gelyseerd en de intracellulaire eiwitten worden gescheiden op een SDS-PAGINA en vervolgens uitgewist en gesondeerd met antilichamen tegen het doelgen. Glycanen worden gesplitst uit gezuiverde antilichamen en geanalyseerd door CGE-LIF. Deze testen kunnen elk 1 dag duren. Klik hier om een grotere versie van deze figuur te bekijken.
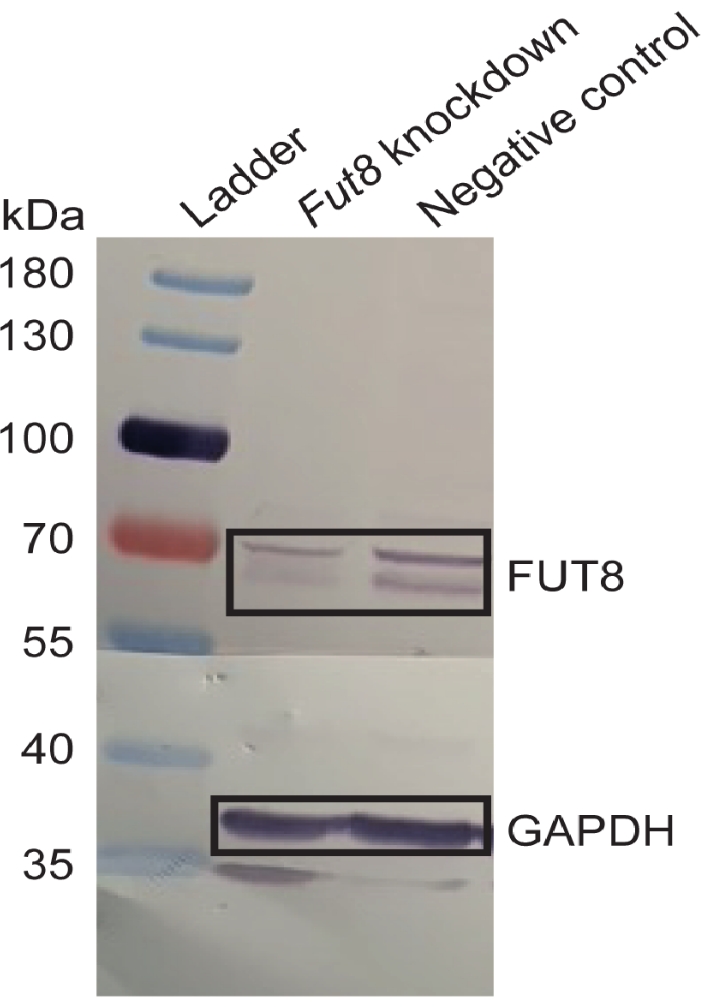
Figuur 2. Bevestiging van RNA-interferentie. Western blot detectie van α-1,6-fucosyltransferase (FUT8) eiwitniveaus in monsters behandeld met Fut8 of niet-targeting controle DsiRNA. Bands die overeenkomen met FUT8 zijn intenser in controle dan Fut8 knockdown samples. Het GAPDH-eiwitniveau werd ook beoordeeld om de expressie van het doelgen te normaliseren. Alle monsters zijn genomen uit experiment G (zie tabel 2). Herdrukt van Kotidis et al. 52. Klik hier om een grotere versie van deze figuur te bekijken.
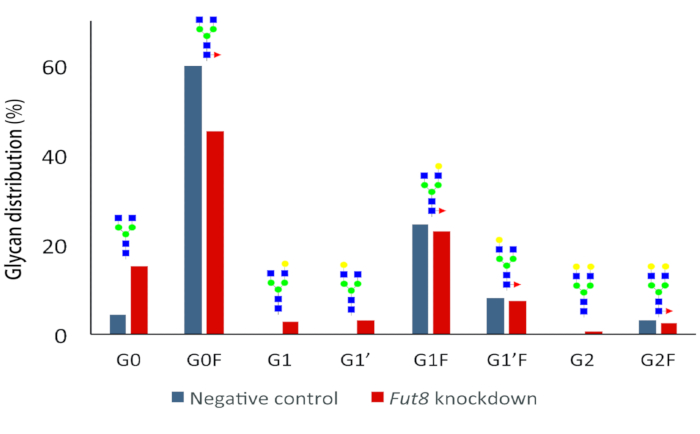
Figuur 3. Effect van Fut8 knockdown op cumulatieve IgG-glycosylatie na 48 h. Een verschuiving in de glycaanverdeling wordt gedetecteerd in knockdown-monsters. In het bijzonder wordt de relatieve abundantie van de belangrijkste kern-fucosylated structuren (G0F) verminderd, terwijl de afucosylated soorten worden verhoogd in het knockdown-experiment. Metingen werden uitgevoerd op basis van monsters van experiment G (zie tabel 2). Biologische drielicaten die voor elk experiment werden uitgevoerd, werden na het oogsten gemengd om de last van downstream-analyse te verminderen. Herdrukt van Kotidis et al. 52. Klik hier om een grotere versie van deze figuur te bekijken.
| Naam van het experiment | Elektroporatie methode | DsiRNA-concentratie (nΜ) | Oogsttijd (h) | Levensvatbaarheid (%) | Xv (106 cellen·ml-1) | IgG-titer (mg· L-1) | Verschil in kernfucosylatie (%) | ||||||
| ExpA_Negative | E1 | 500 | 24 | 98.3 | 4.71 | 122.5 | - | ||||||
| ExpA_Knockdown | E1 | 500 | 24 | 98.3 | 4.9 | 110.3 | 4.08 | ||||||
| ExpB_Negative | E1 | 500 | 48 | 95.6 | 9.55 | 453.3 | - | ||||||
| ExpB_Knockdown | E1 | 500 | 48 | 96.7 | 9.61 | 469 | 5.38 | ||||||
| ExpC_Negative | E2 | 500 | 48 | 96.3 | 9.91 | 449.3 | - | ||||||
| ExpC_Knockdown | E2 | 500 | 48 | 96.7 | 11 | 454.6 | 11.42 | ||||||
| ExpD_Negative | E3 | 500 | 48 | 90.6 | 6.25 | 318.5 | - | ||||||
| ExpD_Knockdown | E3 | 500 | 48 | 89.1 | 6.09 | 311.85 | 9.71 | ||||||
| ExpE_Negative | E4 | 500 | 48 | 91.1 | 7.2 | 380.3 | - | ||||||
| ExpE_Knockdown | E4 | 500 | 48 | 93.3 | 7.79 | 422.8 | 14.7 | ||||||
| ExpF_Negative | E1 | 750 | 48 | 96.2 | 9.7 | 501 | - | ||||||
| ExpF_Knockdown | E1 | 750 | 48 | 95.7 | 9.76 | 504.6 | 9.9 | ||||||
| ExpG_Negative | E1 | 1000 | 48 | 96.1 | 11.1 | 422.6 | - | ||||||
| ExpG_Knockdown | E1 | 1000 | 48 | 95.9 | 9.73 | 499.3 | 17.26 | ||||||
| ExpH_Negative | E1 | 500 | 72 | 94.4 | 14.3 | 925.8 | - | ||||||
| ExpH_Knockdown | E1 | 500 | 72 | 95 | 13.5 | 1018.4 | 7.37 | ||||||
Tabel 2. Transfectie optimalisatie. Iteratieve modificaties van de elektroporatiemethode, DsiRNA-concentratie en oogsttijd leidden tot veranderingen in de levensvatbaarheid van cellen, levensvatbare celdichtheid, IgG-titer op het oogsttijdstip en verschillen in kernfucosylatie. Elk experiment vergeleek de knockdown en de respectieve negatieve controle om te bepalen of de wijziging het gewenste effect produceert (d.w.z. een afname van fucosylatie). De elektroporatie-instellingen waren als volgt: e1: 1200 V, 0,1 ms, blokgolfvorm; e2: 1200 V, 2x 0,1 ms, 5 s tussen pulsen, blokgolfvorm; e3: 150 V, 20 ms, blokgolfvorm; e4: 250 V, 500 μF, exponentieel verval. Herdrukt van Kotidis et al. 52.
Discussie
Glycosylatieroutes omvatten een complex metabolisch netwerk van enzymen en accessoire eiwitten. Het ontleden van de functie van pathway-bestanddelen is ontmoedigend als het alleen afhankelijk is van conventionele knock-out- of knock-in genetische manipulatiestrategieën. Een alternatieve benadering is om leden van een pathway voorlopig te screenen met behulp van een tijdelijke functieverliestest. Hiertoe werden twee snelle protocollen gecombineerd, RNAi en CGE-LIF-detectie, om een efficiëntere manier te creëren om glycosylatiegenen te karakteriseren. De beschreven methode vereist 5-7 dagen voor voltooiing in vergelijking met conventionele methoden die mogelijk enkele weken duren voor voltooiing. Verder zouden onderzoeksomgevingen met automatiseringsmogelijkheden deze methode kunnen gebruiken om meer genkandidaten te screenen dan haalbaar is met handmatige hantering.
Het succes van een transiënte glyco-engineeringcampagne is grotendeels afhankelijk van het siRNA-ontwerp. Aangepaste DsiRNA-ontwerpen moeten de eerder geschetste regels volgen, of voor het gemak kunnen gebruikers kiezen voor commercieel beschikbare vooraf ontworpen sequenties. Net als andere genmodificatiestrategieën heeft RNAi het potentieel voor off-target effecten. Daarom worden gebruikers aangemoedigd om onbedoelde gentargeting te beoordelen met behulp van computationele methoden41. Experimentele ontwerpkeuzes kunnen ook helpen om off-target effecten te beperken. Kittler et al. toonden aan dat de gemultiplexte afgifte van siRNA leidde tot een vermindering van off-target effecten42. Hoewel dit contra-intuïtief lijkt, wordt gesuggereerd dat een mastermix de concentratie van elk siRNA-construct vermindert, waardoor de kans op off-target gen-uitschakeling wordt beperkt. Een ander voordeel is dat de gelijktijdige transfectie van siRNA-structuren die zich op hetzelfde gen richten, de kans op succesvolle RNAi verhoogt. Het gebruik van een mastermix zorgt ook voor consistentie tussen monsters en replicaties en versnelt het transfectieproces. Na een eerste screening van gemengde siRNA-constructen kan een ander experiment worden uitgevoerd met behulp van individuele constructen om de RNAi-efficiëntie van elke sequentie vast te stellen. In deze en andere knockdown-studies zijn maximaal drie siRNA samengevoegd en afgeleverd aan cellen 43,44,45. Het kan echter wenselijk zijn om meer dan drie siRNA tegelijk te screenen om zich efficiënt op één gen te richten of om meerdere genen te targeten. Inderdaad, één studie toonde multiplexed siRNA-gemedieerde uitschakeling van maximaal zes genen op niveaus die vergelijkbaar zijn met het uitschakelen van individuele genen46. Er zijn echter verdere studies nodig om het maximale aantal siRNA-constructies te bepalen dat in een pool kan worden gebruikt zonder afbreuk te doen aan de geluidsefficiëntie. De multiplexstrategie werd voorgesteld door Martin et al. om het tempo van RNAi-bibliotheekscreeningsexperimentente verbeteren 46, en een soortgelijk concept kan nuttig zijn om glycosylatiegenen te screenen.
Het hierin beschreven protocol dient als een proof-of-concept met de verwachting dat volgende experimenten zullen worden uitgevoerd om andere glycosylatiegenen te valideren. Nieuwe genen van belang kunnen niet gekarakteriseerd of minder populair zijn dan Fut8, en primaire antilichamen om gen-uitschakeling te detecteren kunnen slecht of niet beschikbaar zijn. In dit scenario kunnen alternatieve methoden zoals RT-PCR worden gebruikt om gen-uitschakeling47 te kwantificeren, maar opgemerkt moet worden dat RT-PCR mRNA detecteert in plaats van eiwit. Wanneer antilichamen voor western blotting beschikbaar zijn, is een veel voorkomend probleem slechte detectie of de aanwezigheid van niet-specifieke banden. Handleidingen voor probleemoplossing om gebruikers te helpen veelvoorkomende problemen op te lossen zijn beschikbaar, en deze omvatten meestal een reeks oplossingen, zoals primaire antilichaamtitratie, alternatieve blokkering en detectievoorwaarden48,49. In deze studie verscheen FUT8 onverwacht als een dubbele band bij ~ 65 en ~ 70 kDa. Het is mogelijk dat de ~70 kDa-band geglycosyleerd FUT8 vertegenwoordigt. Literatuurbewijs van menselijke cellijnen beschrijft O-gebonden glycosylatie bij Thr 56450,51, een site die wordt bewaard in Chinese hamsters, en CHO K1 FUT8-sequenties.
Zoals eerder vermeld, omvatten glycosylatieroutes vaak een complexe reeks enzymen. Het huidige protocol is ontwikkeld, geoptimaliseerd en gedemonstreerd met behulp van een monogene glycosylatiereactie gecontroleerd door Fut8. Daarom zijn verdere studies nodig om de robuustheid van deze methode te bevestigen wanneer het doelgen codeert voor een enzym met alternatieve kinetiek- en expressieniveaus of een route gereguleerd door iso-enzymen met redundante functies.
Alles bij elkaar genomen is het vermogen om genen snel het zwijgen op te leggen en gemodificeerde IgG-glycoprofielen te detecteren een nuttig hulpmiddel bij de inspanning om aangepaste glyco-technische antilichamen te bereiken. Inzichten uit vergelijkbare kortetermijnstudies kunnen worden toegepast om stabiele glycoengineered cellen te genereren voor gebruik in langetermijntests zoals fed-batchcultuur. Buiten de farmaceutische context draagt deze methode bij aan de studie van glycaanbiologie en benadrukt de belangrijke functie van glycanen in ontwikkeling, gezondheid en ziekte.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
PK bedankt het Department of Chemical Engineering, Imperial College London, voor zijn beurs. RD bedankt de U.K. Biotechnology and Biological Sciences Research Council voor zijn studententijd. MM wordt gefinancierd door de Britse Biotechnology and Biological Sciences Research Council (Subsidiereferentie: BB/S006206/1). IAG bedankt de Irish Research Council (Scholarship No. GOIPG/2017/1049) en CONACyT (beurs nr. 438330).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 32 Karat software | SCIEX | contact manufacturer | Software voor glycan-gegevensverwerving en -analyse met behulp van het Fast Glycan-analyseprotocol en -scheidingsmethode. |
| Acetonitrile, HPLC-kwaliteit | Sigma Aldrich | 34851 | Oplosmiddel. |
| Anti-FUT8-antilichaam | AbCam | ab198741 | Konijnenpolycloncal voor Fut8. Gebruik dit antilichaam om de expressie van Fut8-eiwitten te kwantificeren; vervang dit antilichaam als u siRNA gebruikt dat zich richt op een ander gen. |
| Anti-GAPDH-antilichaam | AbCam | ab181602 | Konijnenmonoclonaal voor GAPDH. Er bestaan alternatieve housekeeping-genen en deze kunnen door de gebruiker worden verkozen. |
| BioDrop Spectrofotometer | Biochrom | 80 3006 55 | Instrument gebruikt om de eiwitconcentratie te kwantificeren. |
| BLItz | ForteBio | 45 5000 | Instrument. Label-free Protein Analysis System. |
| BRAND Haemocytometer | Sigma Alrich | BR717810 | Tellkamerapparaat |
| Capillary cartridge | SCIEX | A55625 | Voorassemblage capillaire cartridge met venster (30 cm totale lengte, 375 µm buitendiameter (o.d), x 50 µm binnendiameter (i.d). |
| C100HT Glycan-analyse—capillaire elektroforese | SCIEX | contact manufacturer | Capillaire gelelektroforese-instrument, het CESI 8000 Plus-instrument wordt nu gebruikt. |
| CD CHO-medium | Thermo Fisher Scientific | 10743029 | Vervang dit met een kweekmedium dat geschikt is voor de cellijn van uw keuze. |
| Centrifugebuizen, 15 mL | Greiner Bio | 188261 | Steriele polypropyleenbuis. |
| Centrifugebuizen, 50 mL | Greiner Bio | 227270 | Steriele polypropyleenbuis. |
| CHO IgG | MedImmune | Gift | Chinese hamsterovariumcellen die een IgG-monoklonaal antilichaam (CHO T127) tot expressie brengen. Gemaakt met behulp van het GS-systeem. |
| Dulbecco's fosfaatgebufferde zoutoplossing (DPBS) | Gibco | 14190144 | 1x PBS, zonder calcium of magnesium. |
| Erlenmeyerkolven met ventieldop, 125 mL | Corning | 431143 | Vervang dit met een kweekvat dat geschikt is voor het kweken van de cellijn van uw keuze. |
| Erlenmeyerkolven met ventieldop, 250 mL | Corning | 431144 | Vervang dit met een kweekvat dat geschikt is voor het kweken van de cellijn van uw keuze. |
| Fast Glycan-labeling- en analysekit | SCIEX | B94499PTO | Labelt N-glycanen met APTS en gebruikt vervolgens een op magnetische kralen gebaseerd opruimingssysteem om overtollig APTS te verwijderen. |
| Fut8 DsiRNA | IDT | Custom | Op maat ontworpen DsiRNA gericht op Fut8. |
| Gene Pulser-cuvettes, 0,4 cm | Bio-Rad | 1652088 | Electroporatiegel. |
| Gene Pulser Xcell Eukaryotisch Systeem | Bio-Rad | 165 2661 | Instrument. Xcell-hoofdunit met Capacitance Extender (CE) Mocdule en ShockPod. |
| Immobilon-FL PVDF membraan | Merck-Millipore | IPFL00010 | Immunoblot-overdrachtsmembraan, lage achtergrond. |
| L-Methioninesulfoximine (MSX) | Sigma Aldrich | M5379 | Alleen noodzakelijk voor CHO-cellijnen die het glutaminesynthetase (GS) selectiesysteem gebruiken. |
| Kimwipes | Thermo Fisher Scientific | 10623111 | Veelomvattend, hoog absorptievermogen en chemisch inerte doekjes. |
| M-PER Mammalian Protein Extraction Reagent | Thermo Fisher Scientific | 78505 | Alternatieve lysisbuffers zoals RIPA zijn ook geschikt. |
| Methanol, HPLC-kwaliteit | Fisher Scientific | 10365710 | Oplosmiddel. |
| Microcentrifugebuizen, 1,5 mL | Eppendorf | 616201 | Autoclaveerbare buizen. |
| Mini-PROTEAN Tetra Vertical Electrophoresis Cell systeem | Bio-Rad | 1658035FC | Instrument. 4-gelcapaciteit, voor handgemaakte gels van 1,0 mm dik, met Mini Trans-Blot Module en PowerPac HC-voeding. |
| NC-Slide A8 | ChemoMetec | 942 0003 | 8-kamerslide voor gebruik met NucleoCounter NC 250. |
| Negatieve controle DsiRNA, 5 nmol | IDT | 51 01 14 04 | Niet-targeterend DsiRNA. |
| Nuclease-vrij duplex-buffer | IDT | 11-01-03-01 | Reconstitutiebuffer voor DsiRNA. |
| NucleoCounter NC-250 | Chemometec | contact manufacturer | Instrument. Geautomatiseerde celanalysator |
| Page-Ruler ladder, 10 tot 180 kDa | Thermo Fisher Scientific | 26616 | Gemengde blauwe, oranje en groene eiwitstandaarden voor SDS PAGE en western blotting. |
| PCR-buizen | Greiner Bio | 608281 | Autoclaveerbare buizen voor DsiRNA-aliqouts en glycaanbereiding. |
| Pipetfiltertips gesteriliseerd (10, 200, 1000 µL) | Gibson | F171203, F171503, F171703 | Steriele filtertips om RNA-besmetting te voorkomen. |
| PNGase F-enzym | New England Biolabs | P0704S | Enzymatische splitsing van glycanen uit glycoproteïnen. |
| Polypropyleenkolommen, 1 mL | Qiagen | 34924 | Kolommen voor zwaartekrachtchromatografie. |
| Protease-remmercocktail | Sigma Aldrich | P8340 | Remming van serine-, cysteïne-, aspartaatproteasen en aminopeptidasen |
| Protein-A-agarosekralen | Merck-Millipore | 16 125 | Voor zuivering van humane, muis- en konijnimmunoglobulinen. |
| Protein-A-biosensor | ForteBio | 18 5010 | Tips gefunctionaliseerd met Protein A voor snelle antilichaamkwantificering. |
| RNaseZap | Invitrogen |
Referenties
- Jefferis, R. Glycosylation as a strategy to improve antibody-based therapeutics. Nature Reviews Drug Discovery. 8 (3), 226-234 (2009).
- Rathore, A. S., Winkle, H. Quality by design for biopharmaceuticals. Nature Biotechnology. 27 (1), 26-34 (2009).
- Eon-Duval, A., Broly, H., Gleixner, R. Quality attributes of recombinant therapeutic proteins: An assessment of impact on safety and efficacy as part of a quality by design development approach. Biotechnology Progress. 28 (3), 608-622 (2012).
- Lalonde, M. -E., Durocher, Y. Therapeutic glycoprotein production in mammalian cells. Journal of Biotechnology. 251, 128-140 (2017).
- Mimura, Y., et al. Glycosylation engineering of therapeutic IgG antibodies: challenges for the safety, functionality and efficacy. Protein & Cell. 9 (1), 47-62 (2018).
- Walsh, G. Biopharmaceutical benchmarks 2018. Nature Biotechnology. 36 (12), 1136-1145 (2018).
- Zhang, M., Koskie, K., Ross, J. S., Kayser, K. J., Caple, M. V. Enhancing glycoprotein sialylation by targeted gene silencing in mammalian cells. Biotechnology and Bioengineering. , (2010).
- Kanda, Y., et al. et al. of a GDP-mannose 4,6-dehydratase (GMD) knockout host cell line: a new strategy for generating completely non-fucosylated recombinant therapeutics. Journal of Biotechnology. 130 (3), 300-310 (2007).
- Umaña, P., Jean-Mairet, J., Moudry, R., Amstutz, H., Bailey, J. E. Engineered glycoforms of an antineuroblastoma IgG1 with optimized antibody-dependent cellular cytotoxic activity. Nature Biotechnology. 17 (2), 176-180 (1999).
- Xu, X., et al. et al. genomic sequence of the Chinese hamster ovary (CHO)-K1 cell line. Nature Biotechnology. 29 (8), 735-741 (2011).
- Chan, K. F., et al. et al. of GDP-fucose transporter gene (Slc35c1) in CHO cells by ZFNs, TALENs and CRISPR-Cas9 for production of fucose-free antibodies. Biotechnology Journal. 11 (3), 399-414 (2016).
- Zhang, P., et al. Identification of functional elements of the GDP-fucose transporter SLC35C1 using a novel Chinese hamster ovary mutant. Glycobiology. 22 (7), 897-911 (2012).
- Amann, T., et al. Genetic engineering approaches to improve posttranslational modification of biopharmaceuticals in different production platforms. Biotechnology and Bioengineering. 116 (10), 2778-2796 (2019).
- Karottki, K. J., et al. Awakening dormant glycosyltransferases in CHO cells with CRISPRa. Biotechnology and Bioengineering. 117 (2), 593-598 (2020).
- Fire, A., et al. Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans. Nature. 391 (6669), 806-811 (1998).
- Hammond, S. M., Bernstein, E., Beach, D., Hannon, G. J. An RNA-directed nuclease mediates post-transcriptional gene silencing in Drosophila cells. Nature. 404 (6775), 293-296 (2000).
- Bernstein, E., Caudy, A. A., Hammond, S. M., Hannon, G. J. Role for a bidentate ribonuclease in the initiation step of RNA interference. Nature. 409 (6818), 363-366 (2001).
- Shields, R. L., et al. et al. of fucose on human IgG1 N-linked oligosaccharide improves binding to human FcγRIII and antibody-dependent cellular toxicity. Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. et al. Absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Mori, K., et al. Engineering Chinese hamster ovary cells to maximize effector function of produced antibodies using FUT8 siRNA. Biotechnology and Bioengineering. 88 (7), 901-908 (2004).
- Imai-Nishiya, H., et al. Double knockdown of alpha1,6-fucosyltransferase (FUT8) and GDP-mannose 4,6-dehydratase (GMD) in antibody-producing cells: a new strategy for generating fully non-fucosylated therapeutic antibodies with enhanced ADCC. BMC Biotechnology. 7, 84(2007).
- Beuger, V., et al. et al. silencing of fucosyltransferase 8 in Chinese-hamster ovary cells for the production of antibodies with enhanced antibody immune effector function. Biotechnology and Applied Biochemistry. 53 (1), 31(2009).
- Templeton, N., Dean, J., Reddy, P., Young, J. D. Peak antibody production is associated with increased oxidative metabolism in an industrially relevant fed-batch CHO cell culture. Biotechnology and Bioengineering. 110 (7), 2013-2024 (2013).
- Hussain, H., et al. A comparative analysis of recombinant Fab and full-length antibody production in Chinese hamster ovary cells. Biotechnology and Bioengineering. 118 (12), 4815-4828 (2021).
- Shimoyama, H., et al. Partial silencing of fucosyltransferase 8 gene expression inhibits proliferation of Ishikawa cells, a cell line of endometrial cancer. Biochemistry and Biophysics Reports. 22, 100740(2020).
- Tummala, S., et al. Evaluation of exogenous siRNA addition as a metabolic engineering tool for modifying biopharmaceuticals. Biotechnology Progress. 29 (2), 415-424 (2013).
- Carillo, S., et al. Comparing different domains of analysis for the characterisation of N-glycans on monoclonal antibodies. Journal of Pharmaceutical Analysis. 10 (1), 23-34 (2020).
- Reusch, D., et al. Comparison of methods for the analysis of therapeutic immunoglobulin G Fc-glycosylation profiles-Part 2: Mass spectrometric methods. mAbs. 7 (4), 732-742 (2015).
- Donini, R., Haslam, S. M., Kontoravdi, C. Glycoengineering Chinese hamster ovary cells: a short history. Biochemical Society Transactions. 49 (2), 915-931 (2021).
- Szigeti, M., Chapman, J., Borza, B., Guttman, A. Quantitative assessment of mAb Fc glycosylation of CQA importance by capillary electrophoresis. ELECTROPHORESIS. 39 (18), 2340-2343 (2018).
- Ruhaak, L. R., et al. Optimized workflow for preparation of APTS-labeled N-glycans allowing high-throughput analysis of human plasma glycomes using 48-channel multiplexed CGE-LIF. Journal of Proteome Research. 9 (12), 6655-6664 (2010).
- Patenaude, A. -M., et al. N-glycosylation analysis of mouse immunoglobulin G isolated from dried blood spots. Electrophoresis. 42 (24), 2615-2618 (2021).
- Karst, D. J., et al. Modulation and modeling of monoclonal antibody N-linked glycosylation in mammalian cell perfusion reactors. Biotechnology and Bioengineering. 114 (9), 1978-1990 (2017).
- Dadouch, M., Ladner, Y., Perrin, C. Analysis of monoclonal antibodies by capillary electrophoresis: sample preparation, separation, and detection. Separations. 8 (1), 4(2021).
- Fakhr, E., Zare, F., Teimoori-Toolabi, L. Precise and efficient siRNA design: a key point in competent gene silencing. Cancer Gene Therapy. 23 (4), 73-82 (2016).
- Birmingham, A., et al. A protocol for designing siRNAs with high functionality and specificity. Nature Protocols. 2 (9), 2068-2078 (2007).
- Makrydaki, E., et al. Immobilised enzyme cascade for targeted glycosylation. , (2022).
- Bulletin_6201.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6201.pdf (2022).
- Bulletin_6376.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6376.pdf (2022).
- Dot Blot Analysis. , Available from: https://imagej.nih.gov/ij/docs/examples/dot-blot/index.html (2022).
- Yilmazel, B., et al. Online GESS: prediction of miRNA-like off-target effects in large-scale RNAi screen data by seed region analysis. BMC Bioinformatics. 15 (1), 192(2014).
- Kittler, R., et al. Genome-wide resources of endoribonuclease-prepared short interfering RNAs for specific loss-of-function studies. Nature Methods. 4 (4), 337-344 (2007).
- Stec, E., et al. A multiplexed siRNA screening strategy to identify genes in the PARP pathway. Journal of Biomolecular Screening. 17 (10), 1316-1328 (2012).
- Brown, J. M., et al. Ligand conjugated multimeric siRNAs enable enhanced uptake and multiplexed gene silencing. Nucleic Acid Therapeutics. 29 (5), 231-244 (2019).
- Parsons, B. D., Schindler, A., Evans, D. H., Foley, E. A direct phenotypic comparison of siRNA pools and multiple individual duplexes in a functional assay. PLoS One. 4 (12), 8471(2009).
- Martin, S. E., et al. Multiplexing siRNAs to compress RNAi-based screen size in human cells. Nucleic Acids Research. 35 (8), 57(2007).
- Popp, O., Moser, S., Zielonka, J., Rüger, P., Hansen, S., Plöttner, O. Development of a pre-glycoengineered CHO-K1 host cell line for the expression of antibodies with enhanced Fc mediated effector function. mAbs. 10 (2), 290-303 (2018).
- Yang, P. -C., Mahmood, T. Western blot: Technique, theory, and trouble shooting. North American Journal of Medical Sciences. 4 (9), 429(2012).
- Troubleshooting Western Blots with the Western Blot Doctor. Bio-Rad Laboratories. , Available from: https://www.bio-rad.com/en-uk/applications-technologies/troubleshooting-western-blots-with-western-blot-doctor?ID=MIW4HR15 (2022).
- Steentoft, C., et al. Precision mapping of the human O-GalNAc glycoproteome through SimpleCell technology. EMBO. 32 (10), 1478-1488 (2013).
- FUT8 - Alpha-(1,6)-fucosyltransferase - Proteomics. , Available from: https://www.nextprot.org/entry/NX_Q9BYC5/proteomics (2022).
- Kotidis, P., et al. Rapid antibody glycoengineering in CHO cells via RNA interference and CGE-LIF N-glycomics. Methods in Molecular Biology. 2370, 147-167 (2022).
Herprints en machtigingen
