We presenteren een methode voor het kweken en bewerken van primaire resusapen B-cellen met behulp van CRISPR / Cas9 en recombinant adeno-geassocieerd virus serotype 6 voor de studie van B-celtherapieën.
Methodenartikel
Genbewerking van primaire resusapen B-cellen
In dit artikel
Samenvatting
Samenvatting
B-cellen en hun nakomelingen zijn de bronnen van sterk tot expressie gebrachte antilichamen. Hun hoge eiwitexpressiemogelijkheden samen met hun overvloed, gemakkelijke toegankelijkheid via perifeer bloed en ontvankelijkheid voor eenvoudige adoptieve overdrachten hebben hen een aantrekkelijk doelwit gemaakt voor genbewerkingsbenaderingen om recombinante antilichamen of andere therapeutische eiwitten tot expressie te brengen. De genbewerking van primaire B-cellen van muizen en mensen is efficiënt en muismodellen voor in vivo studies zijn veelbelovend gebleken, maar haalbaarheid en schaalbaarheid voor grotere diermodellen zijn tot nu toe niet aangetoond. We hebben daarom een protocol ontwikkeld om primaire B-cellen van rhesusmakaken in vitro te bewerken om dergelijke studies mogelijk te maken. We rapporteren voorwaarden voor in vitro kweek en genbewerking van primaire resusapen B-cellen uit perifere mononucleaire bloedcellen of splenocyten met behulp van CRISPR / Cas9. Om de gerichte integratie van grote (<4,5 kb) cassettes te bereiken, werd een snel en efficiënt protocol opgenomen voor het voorbereiden van recombinant adeno-geassocieerd virus serotype 6 als een homologie-gerichte reparatiesjabloon met behulp van een tetracycline-enabled self-silencing adenoviral helper vector. Deze protocollen maken de studie van prospectieve B-cel therapieën bij resusapen mogelijk.
Inleiding
B-cellen zijn de basis van humorale immuniteit. Na activering door cognaat antigeen en secundaire signalen geven naïeve B-cellen aanleiding tot kiemcentrum B-cellen, geheugen B-cellen en plasmacellen1. Dit laatste is de bron van de uitgescheiden antilichamen die de beschermende functies van de meeste momenteel beschikbare vaccins bemiddelen2. Plasmacellen zijn beschreven als antilichaamfabrieken omdat ze enorme hoeveelheden antilichamen afscheiden in het serum - ongeveer 2 ng / dag / cel3, wat neerkomt op 7-16 g / L serum, waardoor antilichamen een van de drie meest voorkomende eiwitten in serum4 zijn. B-cellen zijn rijk aan bloed en kunnen dus gemakkelijk worden verkregen en teruggegeven aan een individu.
Deze eigenschappen hebben B-cellen tot een doelwit gemaakt van celtherapie-inspanningen om de B-celreceptor (BCR) te gen-bewerken en breed neutraliserende antilichamen (bNAbs) tot expressie te brengen tegen het humaan immunodeficiëntievirus (HIV)5,6,7,8,9,10,11,12,13,14,15 en andere eiwitten 16, 17,18,19,20,21. Dergelijke benaderingen hebben potentieel aangetoond in talrijke muisstudies in vivo 7,8,10,11,16,22. Er moeten echter nog verschillende hindernissen worden overwonnen voor klinische vertaling 9,15,23, waaronder veiligheid, duur en omvang van de therapeutische werkzaamheid, evenals schaalvergroting naar grotere dieren zoals niet-menselijke primaten (NHP's). NHP's, en in het bijzonder resusapen, die een lange geschiedenis hebben in antilichaam- en HIV-onderzoek24,25, zijn inderdaad het meest geschikte model om deze parameters te testen.
Hier hebben we protocollen ontwikkeld waarmee deze problemen kunnen worden aangepakt. Tot op heden hebben weinig studies geprobeerd om resusapen B-cellen ex vivo te kweken, en alleen positieve selectie met behulp van CD20 is gemeld voor de zuivering van resusapen B-cellen26,27,28. We hebben een protocol opgesteld voor de isolatie van onaangeroerde resusapen B-cellen door de negatieve uitputting van andere celtypen. Verder worden kweekcondities gedefinieerd voor de gerichte genbewerking van resusapen B-cellen. Dit protocol schetst het gebruik van CRISPR/Cas9 ribonucleoproteïnen (RNP's) en recombinant adeno-geassocieerd virus serotype 6 (rAAV6) als homologie-gerichte reparatiesjabloon (HDRT) om gekweekte resusaken B-cellen te bewerken voor genbewerking. Met behulp van dit protocol werden bewerkingsefficiënties tot 40% bereikt met grote (~ 1,5 kb) inserts. We presenteren ook een snelle en kosteneffectieve methode om rAAV6 te produceren met behulp van een tetracycline-enabled, zelf-uitschakelende adenovirale helper29 om het snel testen van HDRT's in dit formaat mogelijk te maken. Gecombineerd beschrijven deze protocollen een efficiënte workflow voor de genbewerking van resusapen B-cellen (figuur 1), waardoor de evaluatie van B-celtherapieën in een NHP-model mogelijk wordt.
Om de experimenten te starten, kan donormateriaal worden besteld bij commerciële bronnen of worden verkregen door flebotomieën of splenectomie. In deze studie werden de flebotomieën en bloedafnames uitgevoerd zoals eerder beschreven30 met behulp van het antistollingsmiddel EDTA. Om milt, primaire resusapen B-cellen, werden gedeeltelijke (25% -50%) of totale splenectomieën te verkrijgen met behulp van eerder gerapporteerde technieken31. De dieren werden een nacht voor de operatie gevast. Kortom, tijdens de operatie werd de buik geknipt en drie keer bereid met afwisselend scrubs van chloorhexidine en 70% isopropylalcohol. Een incisie (5-10 cm) werd gemaakt in de buik om de milt te identificeren en te isoleren. De vasculatuur van de milt werd geligeerd met hechtingen of vaatklemmen. De incisie werd in twee lagen gesloten met 4-0 PDS polydioxanon-hechtingen. Splenectomie werd een enkele keer uitgevoerd voor een individueel dier. Eencellige suspensies werden bereid uit makakenmilten door maceratie door celzeven. Mononucleaire cellen uit bloed en miltcelsuspensies werden bereid met behulp van dichtheidsgradiëntcentrifugatie en opgeslagen in vloeibare stikstof.
Protocol
Alle dierprocedures en experimenten werden uitgevoerd volgens protocollen die zijn goedgekeurd door het Institutional Animal Care and Use Committee van het National Institute of Allergy and Infectious Diseases, National Institutes of Health. Een samenvatting van de volgende protocollen is weergegeven in figuur 1. Mannelijke en vrouwelijke resusapen (Macaca mulatta) van Indiase genetische oorsprong in de leeftijd van 2-8 jaar oud werden gehuisvest en verzorgd in overeenstemming met de richtlijnen van het Comité voor de verzorging en het gebruik van proefdieren in een bioveiligheidsniveau 2-faciliteit.
LET OP: Alle experimenten werden uitgevoerd in overeenstemming met de universele voorzorgsmaatregelen voor door bloed overgedragen pathogenen, met steriele / aseptische technieken en de juiste bioveiligheidsniveau 2-apparatuur in laminaire stroomkappen.
1. rAAV6 productie
- Bereid de reagentia voor op rAAV6-productie.
- Ontwerp en kloon de homologie-gerichte reparatiesjabloon tussen de inverted terminal repeats (ITR's) van AAV2 in de vector pAAV met behulp van standaardtechnieken. Zorg ervoor dat de homologiearmen aan weerszijden ten minste ~ 250 bp zijn, maar zo weinig als 60 bp kan voldoende zijn, hoewel langere homologiearmen de voorkeur hebben als het constructieontwerp dit toelaat. Als doelsequenties van een van de gebruikte sgRNA's aanwezig zijn in de HDRT, verwijder ze dan met behulp van stille mutaties, die het meest effectief zijn in het protospacer aangrenzende motief of zaadgebied van de doellocatie.
OPMERKING: Gensynthese in combinatie met Gibson-assemblage voor efficiënt klonen32 kan worden uitgevoerd. Bereid een Maxiprep van een juiste kloon voor transfectie. Voor sgRNA-ontwerp wordt CHOPCHOP33 aanbevolen en een lijst met meer tools is te vinden op https://zlab.bio/guide-design-resources. De maximale verpakkingscapaciteit voor AAV inclusief ITR's is ~4,7 kb. AAV6 is het meest gebruikte serotype voor het bewerken van hematopoëtische cellen, met name B-cellen9. Andere serotypen van AAV voor de genbewerking van resusapen B-cellen zijn niet getest, maar AAV28 en AAV-DJ10,11 zijn gebruikt in muisstudies. - Bereid 293AAV-kweekmedium en productiemedium volgens tabel 1 en tabel 2. Steriele filter door een 0,2 μm polyethersulfon (PES) membraanfiltereenheid. Bewaren bij 4 °C.
- Bereid 1x polyethylenimine (PEI) oplossing (1 mg/ml, 100 ml).
- Verwarm in een glazen bekerglas van 250 ml ~ 70 ml H2O in een magnetron gedurende ~ 30 s en voeg vervolgens 100 mg PEI toe. Voeg een magneetroerder toe en roer tot de PEI grotendeels is opgelost.
- Stel de pH in op 7 met 1 M HCl, vul vervolgens aan tot 100 ml met H2O, wacht 10 minuten, controleer de pH opnieuw en pas indien nodig aan.
- Steriel filtreer de PEI-oplossing door een 0,2 μm PES-membraanfiltereenheid, aliquot en bewaar −20 °C. Na het ontdooien kan de oplossing maximaal 2 maanden bij 4 °C worden bewaard.
- Bereid 5x polyethyleenglycol (PEG)/NaCl-oplossing.
- Weeg 400 g PEG 8.000 en 24 g NaCl af.
- Voeg een magneetroerder toe aan een glazen bekerglas van 2 L, voeg de gewogen PEG 8.000 en NaCl toe en spoel af met ~ 550 ml gedeïoniseerd water.
- Roer met verhitting en breng aan de kook of 80-90 °C tot het volledig is opgelost.
- Stel de pH in op ~ 7,4 met 1 M NaOH, stel vervolgens het volume in op 1 L met behulp van een maatcilinder en breng het over in een glazen fles van 2 L met de magnetische roerder.
- Autoclaaf de fles, magneetroerder en oplossing in een waterbad gedurende 30 minuten bij 121 °C.
- Na het autoclaveren koelt u de oplossing in een koude ruimte terwijl u roert met behulp van de magneetroerder om scheiding in verschillende fasen te voorkomen. Aliquot indien nodig, en bewaren bij 4 °C.
- Bereid de formuleringsbuffer voor.
- Meng 500 ml DPBS met 50 μL 10% Pluronic F-68. Steriele filter door een 0,2 μm PES membraanfiltereenheid en bewaren bij kamertemperatuur (RT).
- Ontwerp en kloon de homologie-gerichte reparatiesjabloon tussen de inverted terminal repeats (ITR's) van AAV2 in de vector pAAV met behulp van standaardtechnieken. Zorg ervoor dat de homologiearmen aan weerszijden ten minste ~ 250 bp zijn, maar zo weinig als 60 bp kan voldoende zijn, hoewel langere homologiearmen de voorkeur hebben als het constructieontwerp dit toelaat. Als doelsequenties van een van de gebruikte sgRNA's aanwezig zijn in de HDRT, verwijder ze dan met behulp van stille mutaties, die het meest effectief zijn in het protospacer aangrenzende motief of zaadgebied van de doellocatie.
- Celkweek, transfectie en transductie voor rAAV6-productie
- Ontdooi, kweek en bevries 293AAV-cellen zoals beschreven door de fabrikant met behulp van het bovenstaande 293AAV-kweekmedium en Trypsine-EDTA voor het splitsen. Het wordt aanbevolen om enkele vroege passages te bevriezen en de cellen te gebruiken voor AAV-productie voordat ze passage 40 bereiken.
- Voor rAAV6-productie, zaai vier celkweekschalen van 15 cm met 5 x 10⁶ cellen in elk 30 ml. De cellen zijn klaar voor transfectie meestal 1-2 dagen na het zaaien wanneer ze 80% -90% samenvloeiing bereiken.
- Ontdooi een Maxiprep van pAAV-plasmide met daarin de HDRT die in AAV6 moet worden verpakt. Resuspendie 85,6 μg van het pAAV-plasmide in 3 ml zuiver DMEM-medium.
- Los 342 μL 1 mg/ml PEI-oplossing op in 3 ml zuiver DMEM-medium. Incubeer beide oplossingen gedurende 10 minuten bij RT.
- Meng beide buizen van 3 ml in één buis van ~ 6,4 ml transfectiemengsel en incubeer gedurende 20 minuten bij RT.
- Ontdooi ondertussen de tetracycline-enabled, zelf-dempende helpervector RepCap6 uit de vriezer van −80 °C in een waterbad van 37 °C. Om de 293AAV-cellen te transduceren, voegt u de helpervector toe bij een multipliciteit van infectie (MOI) van 25 met behulp van de mediane infectieuze dosis weefselkweek (TCID 50) en uitgaande van 1,15 x10 7 cellen / schotel; meestal wordt 2-10 μL gebruikt per schaal van 15 cm. Rock en draai de gerechten zachtjes om te verdelen.
- Voeg na de incubatie van het transfectiemengsel 1,6 ml druppelsgewijs toe aan elk van de vier schotels van 15 cm. Incubeer bij 37 °C en 5% CO2 gedurende een nacht.
OPMERKING: Als alternatief, als de rAAV6-vectoren van belang al beschikbaar zijn, kunnen deze vectoren worden gebruikt om het virale genoom te verpakken te leveren, wat de noodzaak voor plasmiden met dit systeem tenietdoet en vergelijkbare rAAV6-titers oplevert. Voor deze benadering worden de 293AAV-cellen samen met de gewenste rAAV6 getransduceerd bij een MOI van 50 (gebaseerd op rAAV6-genoomkopieën [GC] / ml) samen met de helpervector. - Zuig de volgende dag het kweekmedium voorzichtig op en gooi het weg en vervang het door 30 ml voorverwarmd productiemedium. Incubeer nog eens 96 uur voor het oogsten. Er wordt geen verdere mediumverandering aanbevolen om de opbrengsten te maximaliseren.
- Oogst en zuivering van de recombinant AAV6 uit het medium
- Zonder cellen uit de schaal te verwijderen, verzamelt u al het celsupernatant in een filtereenheid met een PES-membraan van 0,2 μm dat ten minste 50% groter is dan het volume van het te filteren medium. Filter vervolgens het supernatant.
OPMERKING: Als hogere opbrengsten van rAAV6 gewenst zijn, kunnen de cellen worden geoogst en de rAAV uit de celpellet worden geëxtraheerd met behulp van commerciële kits of vastgestelde protocollen34,35. Omdat AAV6 meestal wordt uitgescheiden in het medium36, werd alleen supernatant gebruikt, waardoor arbeid, kosten en tijd werden verminderd. - Voeg 5x PEG/NaCl-oplossing toe aan het gefilterde supernatant op 25% van het verzamelde volume; dit is meestal 30 ml als vier schaaltjes van 15 cm van 30 ml worden gebruikt.
- Meng goed door om te keren en incubeer vervolgens een nacht bij 4 °C om de virale deeltjes neer te slaan.
OPMERKING: AAV-deeltjes zijn stabiel gedurende maximaal 2 dagen in deze oplossing. - Voorkoel een draaiemmercentrifuge met 250 ml buisinzetstukken voor tot 4 °C. Bereid een centrifugaalfiltereenheid van 4 ml met een afsnijding van 100 kDa en een hydrofiele PES-spuitfilter van 0,22 μm voor door elk membraan voor te behandelen met 2 ml 10% Pluronic F-68 gedurende ten minste 1 uur bij RT.
- Breng het AAV-PEG/NaCl-mengsel over in een buis van 250 ml, centrifugeer gedurende 1 uur bij 4 °C bij 2.500 x g en verwijder vervolgens voorzichtig het hele supernatant door aspiratie.
- Resuspendeer de beige tot witte virale pellet door vortexing in 4 ml van 1 M HEPES totdat deze volledig is geresuspendeerd. Laat het desnoods 5 min staan, en vortex opnieuw. Resuspendeer met behulp van een serologische pipet van 5 ml en breng het totale volume over in een buis van 15 ml.
- Voeg in een zuurkast een gelijk volume chloroform toe aan de virussuspensie - meestal 4 ml.
- Krachtig vortex gedurende 2 minuten, en dan centrifugeren op 1.000 x g gedurende 5 minuten bij RT.
- Verzamel de bovenste laag (AAV-bevattend supernatant) in een nieuwe buis van 50 ml en gooi de onderste laag (chloroform) weg.
LET OP: Chloroform-bevattende oplossingen zijn gevaarlijk afval. Volg de institutionele richtlijnen voor de verwijdering ervan. - Plaats het AAV-bevattende supernatant onder een zuurkast en laat het resterende chloroform gedurende 30 minuten verdampen.
- Was ondertussen de voorbehandelde centrifugaalfiltereenheid en het spuitfilter.
- Voeg 1,5 ml formuleringsbuffer toe aan de voorbehandelde centrifugaalfiltereenheid. Centrifugeer bij 3.500 x g gedurende 10 minuten bij 15 °C in een draaibakrotor. Herhaal deze stap met 4 ml formuleringsbuffer om het membraan te wassen.
- Spoel het spuitfilter tweemaal met 5 ml formuleringsbuffer met een spuit van 5 ml.
- Laad het ~4 ml AAV-bevattende supernatant uit de chloroformextractie in een spuit van 5 ml, bevestig het gewassen spuitfilter en filtreer rechtstreeks in de centrifugaalfiltereenheid.
- Centrifugeer gedurende 25 minuten bij 15 °C bij 3.500 x g en bevestig vervolgens dat de AAV-oplossing in het filter ongeveer tussen 50-100 μl ligt. Als het volume van de oplossing >100 μl is, blijft u centrifugeren.
- Voeg na het verwijderen van het filtraat 4 ml formuleringsbuffer toe in de kop van de centrifugaalfiltereenheid en meng de oplossing gelijkmatig door pipetteren. Centrifugeer gedurende 25 minuten bij 3.500 x g bij 15 °C en bevestig vervolgens dat de AAV-oplossing in het filter tussen 50-100 μl ligt. Als het volume van de oplossing >100 μl is, blijft u centrifugeren. Herhaal deze stap voor een nieuwe wasbeurt.
- Controleer na de laatste centrifugatie of het volume van de oplossing 50-70 μL is; Zo niet, ga dan door met centrifugeren. Breng het preparaat over in een tube van 1,5 ml. Aliquot indien gewenst, en bewaren bij −80 °C.
- Zonder cellen uit de schaal te verwijderen, verzamelt u al het celsupernatant in een filtereenheid met een PES-membraan van 0,2 μm dat ten minste 50% groter is dan het volume van het te filteren medium. Filter vervolgens het supernatant.
- Recombinante AAV6-titerbepaling met qPCR
OPMERKING: De qPCR-primers gloeien in het ITR-gebied en moeten dus geschikt zijn voor alle constructies die in pAAV zijn gekloond.- Ontdooi een aliquot van de te titeren rAAV6 en een aliquot van het AAV6-referentiemateriaal. Het AAV6-referentiemateriaal moet dicht bij 4 x 10¹¹ GC / ml liggen; Pas anders de verdunningen dienovereenkomstig aan.
- Voer een DNase I-vertering uit om het resterende vrije plasmide-DNA in het rAAV6-preparaat te verwijderen door 2,0 μL van het monster of AAV6-referentiemateriaal te combineren met 15,6 μL nucleasevrij H 2 O,2,0μL 10x DNase I-buffer en 0,4 μL DNase I.
- Meng en incubeer zachtjes gedurende 30 minuten bij 37 °C en breng het vervolgens over op ijs. Dit is verdunning 1 (zie tabel 3).
- Bereid vijfvoudige seriële verdunningen van alle monsters en het AAV6-referentiemateriaal zoals in tabel 3 hieronder met water.
- Bereid een SYBR Green qPCR master mix. Meng per put 4,7 μL nucleasevrij water met 10 μL SYBR Green master mix, 0,15 μL ITR primer forward bij 100 μM en 0,15 μL ITR primer reverse bij 100 μM.
OPMERKING: Elk monster wordt in tweevoud gemeten, met 16 putten voor de referentiestandaard, 8 putten per monster en 2 putten voor een controle zonder sjabloon. Bereid 10% meer mastermix voor om rekening te houden met pipetteerfouten. - Laad in een optische 96-well of 384-well reactieplaat 15 μL/well van de SYBR Green qPCR master mix.
- Laad vervolgens 5 μL monsters en AAV6-referentiemateriaal of nucleasevrij water voor de controle zonder sjabloon. Voor de AAV6-referentienorm, belastingsverdunning 2 tot verdunning 9. Voor monsters, belastingsverdunning 5 tot verdunning 8. Meet elke verdunning in tweevoud. Vermijd bubbels.
- Sluit de geladen plaat af met optische transparante film, centrifugeer op 800 x g gedurende 1 minuut bij RT en laad de plaat in het qPCR-instrument met de juiste 96-well of 384-well setup.
- Stel het qPCR-instrument in en voer het uit met behulp van SYBR-detectie met de volgende cyclusomstandigheden: 98 °C gedurende 3 minuten, vervolgens 40 cycli van 98 °C gedurende 15 s en 58 °C gedurende 30 s, gevolgd door een smeltcurve.
- Analyseer de gegevens met de software van het instrument met behulp van de concentratie van het AAV6-referentiemateriaal in genoomkopieën per millimeter (GC / ml) als de standaardcurve (zie tabel 3). Bereken de uiteindelijke concentratie van het monster door vermenigvuldiging met de verdunningsfactor.
- Zorg ervoor dat de standaardcurve R2 dicht bij 1,0 ligt, de PCR-efficiëntie 90% -110% is, de basislijn is verwijderd, de smeltcurve een enkele piek toont, de C t-waarden veranderen in overeenstemming met de verdunningen en de duplicaten binnen 0,5 Ct liggen; sluit anders uitschieters uit. Verwacht rendementen zoals in figuur 2.
2. B-cel media en stimuli voorbereiden
- Ontdooimedium voorbereiden: Combineer RPMI-1640 met 20% FCS. Steriel filter door een 0,2 μm PES membraanfilterunit. Bewaren bij 4 °C.
- B-celkweekmedium bereiden: Combineer de reagentia in tabel 4 en filter vervolgens steriel door een PES-membraanfiltereenheid van 0,2 μm. Bewaren bij 4 °C.
- Resuspendie van elk van de B-celstimulerende middelen in tabel 5 bij voorraadconcentraties in B-celkweekmedium, met uitzondering van CpG ODN dat moet worden geresuspendeerd in nucleasevrij water. Bewaren bij −80 °C.
- Als u niet-B-celnegatieve depletie uitvoert (optionele stap 4), bereidt u DPBS (geen calcium, geen magnesium) voor met 2% FCS (DPBS 2% FCS). Steriel filter door een 0,2 μm PES membraanfilterunit. Bewaren bij 4 °C.
3. Bereiding en kweek van resusapen B-cellen
OPMERKING: Gecryopreserveerde resusapen PBMC's of splenocyten worden gebruikt om de celcultuur30,31 op te zetten.
- Voorwarm ontdooimedium en B-celkweekmedia in een waterbad van 37 °C. Ontdooi de B-cel stimulerende middelen uit tabel 5 op ijs.
- Bereid een buis van de juiste grootte met voorverwarmd ontdooimedium. Dit zou idealiter meer dan 10-voudig het volume van de ontdooide cellen moeten zijn.
- Ontdooi één tot twee cryovialen van PBMC's of splenocyten tegelijk in een waterbad van 37 °C en decanteer in de bereide buis met voorverwarmd medium. Spoel de cryobuizen om alle cellen te verzamelen.
- Centrifugeer de cellen op 200 x g gedurende 10 minuten bij RT.
OPMERKING: Deze centrifugatie-instellingen verminderen de bloedplaatjesverontreiniging met behoud van de PBMC-opbrengsten. Hogere snelheden zoals 350 x g gedurende 5 minuten kunnen worden gebruikt. - Resuspendeer de cellen in 10 ml ontdooimedium voor het wassen.
- Herhaal stap 3.4 en stap 3.5 voor in totaal drie centrifugaties om het vriesmedium te verwijderen. Na de laatste centrifugatie, resuspendien de cellen met een geschatte ~ 5 x 10⁶ cellen / ml in B-celkweekmedium.
OPMERKING: Het bovenstaande protocol kweekt hele PBMC- of splenocytenpreparaten met besmetting door andere cellen. Als zuiverdere B-celculturen nodig zijn, zij het bij aanzienlijk verminderde totale B-celopbrengsten, ga dan verder met stap 4. Er zijn geen verschillen waargenomen in de bewerkingsefficiëntie tussen de twee methoden. - Verdun zo nodig een hoeveelheid van 10 μL cellen met B-celkweekmedium voor het tellen. Tel met behulp van een hemocytometer en trypan blauwe kleuring, waarbij gelijke volumes geresuspendeerde cellen en trypan blue 0,4% -oplossing worden gecombineerd.
- Pas de celconcentratie aan op 3 x 10⁶ cellen / ml met B-celkweekmedium volgens het celgetal. Voeg vervolgens de B-celstimulerende middelen toe aan hun uiteindelijke concentraties volgens tabel 5 en meng.
- Breng de cellen over in een geschikte celkweekschaal. Over het algemeen wordt 0,6 x 10 6-0,7 x 10⁶ cellen / cm2 aanbevolen. Incubeer de cellen bij 37 °C met 5% CO 2 gedurende 48 uur ±2 uur.
4. Optionele negatieve depletie van niet-B-cellen
OPMERKING: Opbrengst en zuiverheid zijn afhankelijk van het invoerpercentage van B-cellen onder de PBMC's, dat drastisch kan verschillen tussen individuele resusapen27. Verwacht 80% -95% zuiverheid, 60% efficiëntie en 1 x 10 6-1,5 x 10⁶ cellen van 1 x 10⁷ PBMC's.
- Na de laatste wasbeurt (stap 3.6) resuspensie van de cellen bij 1 x 10⁸ cellen/ml in DPBS 2% FCS en humaan Fc-blok verdund 1:200. Het aantal cellen is gebaseerd op het aantal ontdooide cellen.
- Incubeer gedurende 15 minuten op ijs om de Fc-receptoren te blokkeren en voeg vervolgens de gebiotinyleerde antilichamen in tabel 6 toe. Incubeer nog eens 20 minuten op ijs.
- Vul de buis aan met DPBS 2% FCS en draai gedurende 10 minuten op 200 x g bij 4 °C.
- Resuspendeer de cellen in DPBS 2% FCS bij 80% van het volume uit stap 4.1 (d.w.z. 80 μL per 1 x 10⁷ cellen).
- Voeg magnetische streptavidin-kralen toe aan de celsuspensie op 20% van het volume uit stap 4.1 (d.w.z. 20 μL kralen per 1 x10 7 cellen).
- Incubeer de cellen gedurende 15 minuten op ijs en roer af en toe.
- Maak ondertussen per 1 x 10⁸ cellen een magnetische separator met een grote magnetische depletiekolom en een voorscheidingsfilter. Spoel het voorscheidingsfilter en de kolom af met 2 ml DPBS 2% FCS door zwaartekrachtstroom en gooi de doorstroming weg. Installeer een opvangbuis van 15 ml.
OPMERKING: Het gebruik van andere kolommen zoals positieve selectiekolommen of andere magnetische kralenzuiveringssystemen kan de zuiverheid drastisch verminderen. - Na incubatie vult u de cellen aan tot 0,5 ml met DPBS 2% FCS als het volume <0,5 ml is. Als het volume ≥0,5 ml is, gaat u gewoon verder.
- Laad de celsuspensie in het voorscheidingsfilter op de voorbereide kolom en vang de doorstroming in de buis van 15 ml.
- Elueer de ongebonden verrijkte B-cellen tweemaal door 1 ml DPBS 2% FCS toe te voegen aan het voorscheidingsfilter. Verzamel de ongebonden cellen in dezelfde buis door zwaartekrachtstroom.
OPMERKING: Extra elutie kan de opbrengst marginaal verhogen. De zuiverheid en efficiëntie kunnen worden geëvalueerd door de flowcytometrie van de invoercellen, verrijkte cellen en cellen die op de kolom worden bewaard. Om de cellen op de kolom te verkrijgen, verwijdert u de kolom van de magneet en spoelt u met 3 ml DPBS 2% FCS met behulp van de meegeleverde zuiger. Evalueer desgewenst de zuiverheid door middel van flowcytometrie zoals in figuur 3 met behulp van de reagentia in tabel 7. - Centrifugeer de verrijkte B-cellen bij 200 x g gedurende 10 minuten bij 4 °C.
- Resuspendeer de cellen met een geschatte ~ 5 x 10⁶ cellen / ml in B-celkweekmedium en ga verder met stap 3.7.
5. Primaire resusapen B-cel genbewerking
- Na het activeren van de resusapen B-cellen gedurende 48 uur ± 2 uur, bereidt u de reagentia voor op elektroporatie en transductie.
- Voorwarme DMSO, nucleasevrije duplexbuffer, buffer T en buffer E (10 μL elektroporatiekit) of E2 (100 μL elektroporatiekit) van de elektroporatiekit naar RT.
- Ontdooi de rAAV6 HDRT- en B-celstimulerende middelen uit tabel 5 op ijs.
- Resuspendeer de CRISPR-Cas9 sgRNA's bij 100 μM in duplexbuffer. Reconstitueer gedurende 10 minuten bij RT en meng door vortexing en flicking. Bewaar de gereconstitueerde sgRNA's op ijs tot gebruik. Bewaren bij −80 °C.
OPMERKING: CRISPR-Cas9 sgRNA's kunnen worden ontworpen met verschillende online tools (zie 1.1.1) en kunnen drastisch variëren in hun snij-efficiëntie. Empirisch testen van de snij-efficiëntie wordt aanbevolen met behulp van assays zoals TIDE37 of ICE38. - Bereid per 10 μL elektroporatie 550 μL B-celkweekmedium met alle stimulerende middelen uit tabel 5 en voeg 1% DMSO toe. Schaal de volumes 10-voudig voor 100 μL elektroporaties. Optioneel kan 10% van dit medium worden bereid zonder antibioticum-antimycoticum, wat de levensvatbaarheid van de cel na transfectie enigszins verhoogt.
- Per 10 μL elektroporatie, maak een put van een 48-well celkweekplaat met 50 μL van het B-celkweekmedium met stimulerende middelen en zonder antibioticum-antimycoticum, indien gebruikt. Voor 100 μL elektroporaties, pipet 500 μL in de putjes van een 6-well plaat.
- Voeg rAAV6 HDRT toe aan het medium in de putten, tot 20% van het volume in de put. Streef naar MOI's variërend van 1 x 10 5-1 x 10 6 op basis van het aantal cellen per transfectie (10 μL elektroporatie: 5 x 10 5 cellen; 100 μL elektroporatie:5 x 10⁶ cellen) en de GC in het rAAV6-preparaat. Hoge rAAV6-voorraadconcentraties van 5 x 10¹³ GC/ml tot 5 x10 14 GC/ml worden aanbevolen om hoge MOI's met lage volumes te bereiken.
OPMERKING: Lagere MOI's kunnen leiden tot verminderde bewerkingsefficiëntie en MOI's van 5 x 10⁵ liggen over het algemeen dicht bij de maximale bewerkingsefficiëntie die we hebben gezien. Een invloed van verschillende MOI's op de levensvatbaarheid van B-cellen is niet waargenomen. Het wordt aanbevolen om bedieningselementen op te nemen zonder rAAV6 HDRT, zonder RNP-transfectie en zonder beide. - Verwarm de bereide gerechten en het resterende medium voor door ze over te brengen in een incubator bij 37 °C met 5% CO2.
- Bereid per 10 μL elektroporatie 1,15 μL ribonucleoproteïne (RNP): Meng 0,4 μL 61 μM Cas9 met 0,75 μL 100 μM sgRNA in duplexbuffer. Bereid extra voor (30% meer voor een enkele elektroporatie wordt aanbevolen) vanwege pipetteerfout en om bellen te voorkomen bij het laden van de elektroporatietips. Schaal 10-voudig voor 100 μL tips.
- Incubeer de RNP gedurende ten minste 15 minuten bij RT voordat u zich mengt met de cellen. Na incubatie kunnen meerdere RNP's worden gecombineerd als meer dan één locus tegelijkertijd moet worden gericht. Er zijn geen significante verschillen in efficiëntie waargenomen met maximaal drie loci tegelijk.
- Bereid ondertussen de cellen voor op elektroporatie. Houd de cellen te allen tijde op RT om temperatuurschokken te voorkomen. Oogst de cellen na 48 uur ± 2 uur cultuur in een geschikt vat. Spoel de vaat af met DPBS om het maximale aantal cellen te verzamelen.
- Centrifugeer de cellen op 200 x g gedurende 10 minuten bij RT. Gooi het supernatant weg en resuspensie de cellen in DPBS bij ~ 2 x 10⁶ cellen / ml.
- Combineer 10 μL trypan blue 0,4% oplossing met 10 μL van de celsuspensie en tel met behulp van een hemocytometer.
OPMERKING: Verwacht op dit moment, als gevolg van verlies tijdens het oogsten en wassen, ongeveer 60% van de cellen die 48 uur ± 2 uur eerder in cultuur zijn gebracht. - Centrifugeer ondertussen de cellen op 200 x g gedurende 10 minuten bij RT. Gooi het supernatant weg en zorg ervoor dat de resterende DPBS wordt geminimaliseerd. Resuspendie van de cellen in voorverwarmde (RT) buffer T bij 5,55 x 10⁷ cellen/ml op basis van het bovenstaande celgetal.
- Stel het transfectiesysteem in door de machine in te schakelen en in te stellen op 1.350 V, 15 ms en 1 puls. Plaats het pipetstation in de laminaire stromingskap
- Bereid voor elke set van 10 elektroporaties een transfectiebuis voor met 3 ml buffer E (voor 10 μL transfecties) of E2 (voor 100 μL transfecties). Steek de buis in het pipetstation.
- Combineer per 10 μL elektroporatie 1,15 μL RNP met 9 μL cellen. Zorg voor voldoende volume (+ 30%) om te voorkomen dat er lucht in de elektroporatietip terechtkomt. Incubeer bij RT gedurende 1-2 minuten voor elektroporatie.
- Zuig 10 μL of 100 μL RNP en celmengsel aan in de elektroporatiepunt van de juiste grootte op een elektroporatiepipet, steek de geladen pipet in het pipetstation en start de elektroporatie. Zorg ervoor dat de uiteinden volledig vrij zijn van luchtbellen om boogvorming te voorkomen. Kijk tijdens elektroporatie om te controleren of er geen boogvorming optreedt.
- Werp de geëlektroporeerde cellen onmiddellijk uit in het voorbereide, voorverwarmde, kleine volume medium met of zonder rAAV6 in de 48-well (10 μL transfecties) of 6-well plaat (100 μL transfecties). Herhaal stap 5.15-5.17 met de overige monsters. Voeg controlemonsters zonder transfectie toe aan de kweekputten.
- Incubeer de cellen bij 37 °C met 5% CO 2 gedurende 4 uur ±2 uur en voeg vervolgens het bereide, voorverwarmde B-celkweekmedium toe dat stimulerende middelen, DMSO en antibioticum/antimycotica bevat: 450 μL voor 10 μL transfecties of 4,5 ml voor 100 μL transfecties.
- Zet de incubatie voort bij 37 °C met 5% CO2 gedurende 12-24 uur. Verander vervolgens het medium in B-celkweekmedium met stimulerende middelen en antibioticum / antimycotica zonder DMSO als langdurig kweken gewenst is. Analyse van het genomische DNA kan na 24 uur worden gedaan. Digitale druppel-PCR met behulp van een primer buiten de homologiearm en een primer in de insert kan worden gebruikt om de bewerkingsefficiëntie te kwantificeren39. Voer PCR's uit om de invoegsite te versterken en Sanger-sequencing om de juiste bewerking te controleren.
- Voor de analyse van de eiwitniveaus kweekt u de cellen gedurende 40-48 uur na elektroporatie om eiwitexpressieveranderingen mogelijk te maken en voert u een analyse uit met behulp van flowcytometrie met behulp van de reagentia in tabel 7.
Resultaten
De productie van rAAV6 met behulp van de tetracycline-enabled, zelf-uitschakelende adenovirale helper resulteerde in de productie van gemiddeld 4 x10 10 GC / ml celkweekmedium, waardoor de productie met behulp van een standaard, helpervrije drievoudige transfectie 30-40-voudig werd overtroffen (figuur 2).
De optionele zuivering van resusapen B-cellen resulteerde in de eliminatie van de overgrote meerderheid van de CD3+ T-cellen en CD14+ en/of CD16+ myeloïde cellen, waarbij routinematig zuiverheden van 80%-95% CD20+ B-cellen werden verkregen (figuur 3). Op basis van onze eerdere ontwerpen in murine B-cellen7, ontwikkelden we een methode om de B-celreceptorspecificiteit van resusapen B-cellen te bewerken en tegelijkertijd allelische uitsluiting in de overgrote meerderheid van B-cellen te behouden door endogene antilichaamlichtketens te verwijderen door de verstoring van hun constante regio. We construeerden een promotorloze HDRT die in de IGH-locus werd ingebracht tussen het laatste IGHJ-gen en de Eμ-versterker van resusapen B-cellen (figuur 4). Dit construct maakt gebruik van de endogene VH-promotor van het natuurlijk herschikte bovenstroomse VDJ-gebied in volwassen B-cellen en wordt dus niet uitgedrukt door episomale AAV-genomen. Bovendien vereist dit construct splicing in stroomafwaartse antilichaam zware keten constante gebieden die op het celoppervlak moeten worden uitgedrukt. Daarom duidt de specifieke antigeenbinding op het celoppervlak, weergegeven door flowcytometrie, op de juiste doellocusintegratie en op het feit dat de ingebrachte sequentie functioneel is.
We verpakten zo'n constructie die codeert voor antilichaam Ab1485, een van resusapen afgeleide anti-HIV bNAb40, in rAAV6 en gebruikten het om geactiveerde primaire resusapen splenocyten of PBMC-culturen te bewerken, zoals hierboven beschreven (figuur 5A). Het protocol handhaafde een hoge levensvatbaarheid van cellen (~ 90%) terwijl tegelijkertijd de lichte ketenexpressie in ~ 80% van de B-cellen werd verwijderd. Het merendeel van de B-cellen drukte nog steeds het isotype IgM uit (figuur 5B). De toevoeging van de rAAV6 die codeert voor de Ab1485 HDRT resulteerde in genbewerking en Ab1485-oppervlakteexpressie in 16% -21% van de B-cellen (figuur 5A), zij het met een lagere fluorescentie-intensiteit voor antilichaamketens dan op onbewerkte B-cellen (figuur 5A rechterpaneel, figuur 5C). Dit kan het gevolg zijn van epitoopcompetitie tussen de antigeenkleuring en de monoklonalen die worden gebruikt om de oppervlakte-BCR in flowcytometrie te detecteren, evenals de werkelijke verminderde eiwitexpressie als gevolg van de polycistronische aard van de HDRT en minder efficiënte splicing. De toevoeging van 1% DMSO en uitgebreide, geconcentreerde incubaties met de rAAV6 HDRT verhoogden over het algemeen de bewerkingsefficiëntie (figuur 6A-C). Met behulp van deze specifieke methode, meestal 5% -20% en tot 40%, wordt bewerkingsefficiëntie bereikt, afhankelijk van de individuele resusaap (figuur 5A, figuur 6A-E) en de kwaliteit van de rAAV6 HDRT-batch (figuur 6E). Over het algemeen presenteren we protocollen voor efficiënte rAAV6-productie en de cultuur, zuivering en genbewerking van resusapen B-cellen.
| Reagentia | Volume | Voorraad | Eindconcentratie |
| DMEM, Hoge Glucose | 500 ml | 1 x | ~ 88,5% |
| FCS, warmte-geïnactiveerd | 50 ml | 1 x | ~ 8,85% |
| Antibioticum / Antimycotica | 5 ml | 100 x | 1 x |
| Glutamine | 5 ml | 200 mM | 2 mM |
| Natriumpyruvaat | 5 ml | 100 mM | 1 mM |
Tabel 1: Het 293AAV celkweekmedium.
| Reagentia | Volume | Voorraad | Eindconcentratie |
| DMEM, Hoge Glucose | 500 ml | 1 x | ~ 95,2% |
| FCS, warmte-geïnactiveerd | 10 ml | 1 x | ~ 1,9% |
| Antibioticum / Antimycotica | 5 ml | 100 x | 1 x |
| Glutamine | 5 ml | 200 mM | 2 mM |
| Natriumpyruvaat | 5 ml | 100 mM | 1 mM |
Tabel 2: Het productiemedium van de 293AAV-cel.
| Verdunningsreeks | Volume van het monster (μL) | Verdunningsmiddel en volume | Verdunningsfactor | Totale verdunning | Referentie AAV6 |
| GC/ml | |||||
| Verdunning 1 | 2 μL monster of AAV-referentiestandaard bij 4,1 x 10¹¹ GC/ml | 18 μL DNAseI-buffer en enzym | 10 x | 10 x | 4,1 x 10¹⁰ |
| Verdunning 2 | 15 μL Dil. 1 | 60 μL H2O | 5 x | 50 x | 8,2 x 10⁹ |
| Verdunning 3 | 20 μL Dil. 2 | 80 μL H2O | 5 x | 250 x | 1,6 x 10⁹ |
| Verdunning 4 | 20 μL Dil. 3 | 80 μL H2O | 5 x | 1250 x | 3,3 x 10⁸ |
| Verdunning 5 | 20 μL Dil. 4 | 80 μL H2O | 5 x | 6250x | 6,6 x 10⁷ |
| Verdunning 6 | 20 μL Dil. 5 | 80 μL H2O | 5 x | 31250 x | 1,3 x 10⁷ |
| Verdunning 7 | 20 μL Dil. 6 | 80 μL H2O | 5 x | 156250 x | 2,6 x 10⁶ |
| Verdunning 8 | 20 μL Dil. 6 | 80 μL H2O | 5 x | 781250 x | 5,24 x 10⁵ |
| Verdunning 9 | 20 μL Dil. 7 | 80 μL H2O | 5 x | 3906250 x | 1,05 x 10⁵ |
Tabel 3: qPCR-verdunningstabel.
| Reagens | Volume | Voorraad | Eindconcentratie |
| RPMI-1640 | 420 ml | 1 x | 84% |
| FCS, warmte-geïnactiveerd | 50 ml | 1 x | 10% |
| Antibioticum / Antimycotica | 5 ml | 100 x | 1 x |
| Glutamine | 5 ml | 200 mM | 2 mM |
| Natriumpyruvaat | 5 ml | 100 mM | 1 mM |
| HEPES | 5 ml | 1 m | 10 mM |
| 2-B-mercapto-ethanol | 550 μL | 55mM | 55 μm |
| Niet-essentiële aminozuren | 5 ml | 100 x | 1 x |
| Insuline-Transferine-Selenium | 5 ml | 100 x | 1 x |
Tabel 4: B-celkweekmedium.
| Reagens | Verdunning | Voorraad | Eindconcentratie |
| MegaCD40L | 1:1000 | 100 μg/ml | 100 ng/ml |
| CpG ODN | 1:300 | 1 mg/ml | 3,33 μg/ml |
| Menselijke BAFF | 1:1000 | 40 μg/ml | 40 ng/ml |
| Menselijke IL-2 | 1:1000 | 50 μg/ml | 50 ng/ml |
| Menselijke IL-10 | 1:1000 | 50 μg/ml | 50 ng/ml |
Tabel 5: B-cel stimulerende middelen.
| Antistof | Kloon | Verdunning | Laatste Conc. |
| anti-menselijke CD3 | FN-18 | 1:40 | 2,5 μg/ml |
| anti-menselijke CD8a | RPA-T8 | 1:200 | 2,5 μg/ml |
| anti-menselijke CD14 | M5E2 | 1:200 | 2,5 μg/ml |
| anti-menselijke CD16 | 3G8 | 1:200 | 2,5 μg/ml |
| anti-menselijke CD33 | AC104.3E3 | 1:50 | 1 test |
| anti-menselijke CD64 | 10.1 | 1:800 | 0,625 μg/ml |
| anti-menselijke CD66 | TET2 | 1:11 | 1 test |
| anti-menselijke CD89 | A59 | 1:800 | 0,625 μg/ml |
Tabel 6: Antilichamen voor de optionele depletie van niet-B-cellen.
| Reagens | Type/kloon | werkverdunning/concentratie |
| anti-menselijke CD14 AlexaFluor647 | M5E2 | 1:50 |
| anti-menselijke CD16 AlexaFluor700 | 3G8 | 1:50 |
| anti-menselijke CD20 PECy7 | 2H7 | 1:50 |
| anti-menselijke CD3 PE | SP34-2 | 1:50 |
| Zombie-NIR | - | 1:500 |
| anti-menselijke HLA-DR BV605 | L243 | 1:200 |
| anti-menselijke Ig lichte ketting lambda APC | Mhl-38 | 1:50 |
| anti-menselijke Kappa Light Chain FITC | polyklonaal | 1:500 |
| anti-menselijk IgM BV421 | Mhm-88 | 1:50 |
| RC1-antigeen, willekeurig gebiotinyleerd | - | 5 μg/ml |
| Streptavidin-PE | - | 1:500 |
Tabel 7: Flowcytometrische reagentia voor analyse.

Figuur 1: Schematisch overzicht van rAAV6 productie en de genbewerking van primaire resusapen B cellen. De protocollen zijn onderverdeeld in rAAV6-productie (stap 1) en de genbewerking van resusapen B-cellen (stappen 2-5), inclusief een optionele stap voor de uitputting van niet-B-cellen (stap 4). Stappen in de protocollen worden aangegeven met rode cirkels. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Hoge rAAV6-opbrengsten met behulp van een zelf-uitschakelende adenovirale helper. rAAV6 werd geproduceerd met behulp van de hier beschreven methoden (pAAV-transfectie [TF] + zelf-uitschakelende helper RepCap6, zelf-uitschakelende adenovirale helper) of typische helpervrije drievoudige transfectie van pAAV, pHelper en pRepCap6 (pRC6). rAAV6 werd alleen gezuiverd uit het celsupernatant. De methoden met behulp van de zelf-uitschakelende adenovirale helpervectoren produceerden 30-40-voudig meer rAAV getitereerd door qPCR, zoals hierboven beschreven. Elke stip vertegenwoordigt een individuele rAAV-productie met behulp van verschillende pAAV-constructies van 2 tot 20 onafhankelijke experimenten. Gemiddelde ± SEM is uitgezet. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: B-celverrijking door de negatieve depletie van niet-B-cellen. Rhesus makaak B-cellen werden verrijkt met PBMC's met behulp van het beschreven protocol en verrijkt tot 90% zuiverheid. De voorverrijkingsinput en -output na verrijking worden getoond. Gated op live, singlet PBMCs. Representatief voor vijf onafhankelijke experimenten. Klik hier om een grotere versie van deze figuur te bekijken.
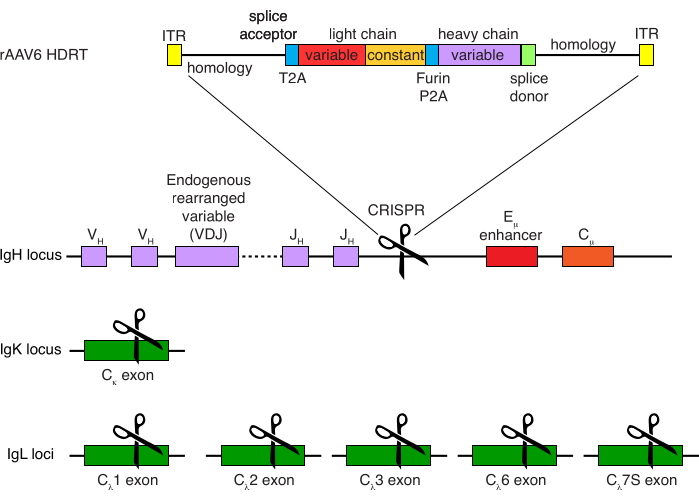
Figuur 4: Targetingstrategie gebruikt voor het bewerken van de B-celreceptorspecificiteit van resusapen B-cellen. rAAV6 werd geproduceerd met de afgebeelde HDRT. De HDRT bestaat uit een homologiearm van 266 bp 5', gevolgd door 111 bp van de resusaap IGHM exon 1 splice-acceptor, vervolgens een GSG-linker met een Thosea asigna-virus zelfsplitsende 2A-peptidesequentie (T2A), gevolgd door een leadersequentie en de volledige lichte keten van resusakenantilichaam Ab1485 als resusaap IGLC1. Dit wordt gevolgd door een furin cleavage site, een GSG linker, en een porcine teschovirus self-cleaving 2A peptide sequence (Furin-P2A), gevolgd door een andere leader sequence en de Ab1485 heavy chain variable, gevolgd door 52 bp van de rhesus macaque IGHJ4 splice donor sequence, om splicing in downstream antilichaam zware keten constante gebieden mogelijk te maken, en een 514 bp homologie arm. Dit construct werd gericht op de IGH-locus tussen het laatste IGHJ-gen en de Eμ-versterker met behulp van de sgRNA-doelsequentie GAGATGCCAGAGCAAACCAG. Beide homologiearmen zijn ontworpen om te eindigen op de snijplaats van dit sgRNA, waardoor de doelsequentie wordt verwijderd en optimale integratie-efficiëntie mogelijk is. Tegelijkertijd, om allelische uitsluiting en de expressie van een enkele B-celreceptor te behouden, verwijderden we endogene lichte ketens met behulp van sgRNA's gericht op de resusaap IGKC met de doelsequentie GGCGGGAAGATGAAGACAGA en IGLC1, IGLC2, IGLC3, IGLC6 en IGLC7S met behulp van de doelsequentie CTGATCAGTGACTTCTACCC. De HDRT omvatte stille mutaties die de splitsing van de IGLC1-sequentie door dit sgRNA voorkwamen. Klik hier om een grotere versie van deze figuur te bekijken.
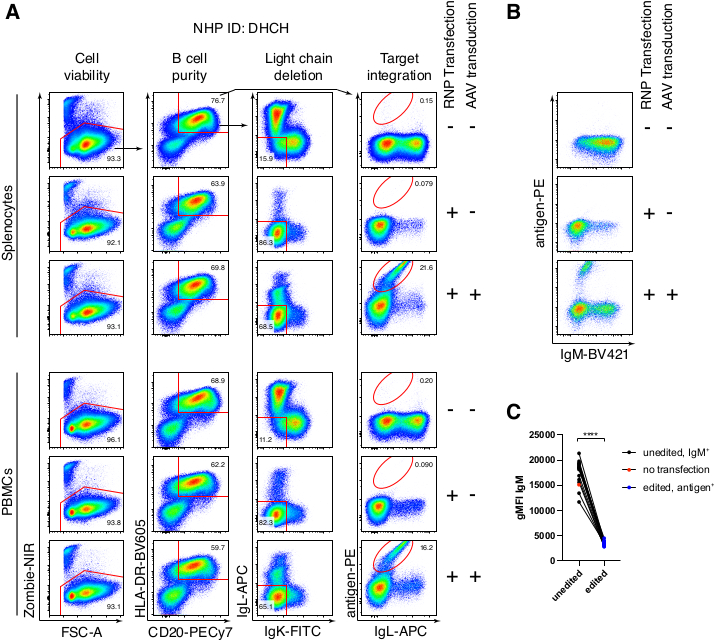
Figuur 5: Genbewerking van primaire resusapen B-cellen. (A) Primaire splenocyten (bovenste paneel) of PBMC's (onderste paneel) van dezelfde resusapen werden gekweekt zonder de uitputting van niet-B-cellen en bewerkt zoals hierboven beschreven. De targetingstrategie was zoals weergegeven in figuur 4. Twee dagen na elektroporatie werden de cellen geoogst en aan het oppervlak gekleurd voor flowcytometrische analyse. De linkerkolom was omheind op singletcellen en de andere kolommen werden vervolgens omheind, zoals aangegeven in de bovenste rij. De levensvatbaarheid van de cellen, de zuiverheid van de B-cellen, de deletie-efficiëntie van de lichte ketens en de knock-in efficiëntie van Ab1485 door kleuring met het specifieke antigeen RC141 worden aangegeven in onbehandelde, RNP getransfecteerde of RNP getransfecteerde + rAAV6 getransduceerde monsters (MOI = 5 x 10⁵). Vertegenwoordiger van zes onafhankelijke experimenten met cellen van verschillende resusapen. (B) IgM-expressie op gekweekte resusapen B-celcontroles of na bewerking en (C) geometrische gemiddelde fluorescentie-intensiteit (gMFI) van IgM op B-cellen die geen Ig-expressie hebben verloren als gevolg van IgLC- en IgKC-targeting (onbewerkt) of B-cellen die het verwachte antigeen binden (bewerkt). De rode stip geeft de gMFI aan van gekweekte niet-getransfecteerde controle B-cellen. geeft p < 0,0001 aan in een gepaarde t-test. Klik hier om een grotere versie van deze figuur te bekijken.
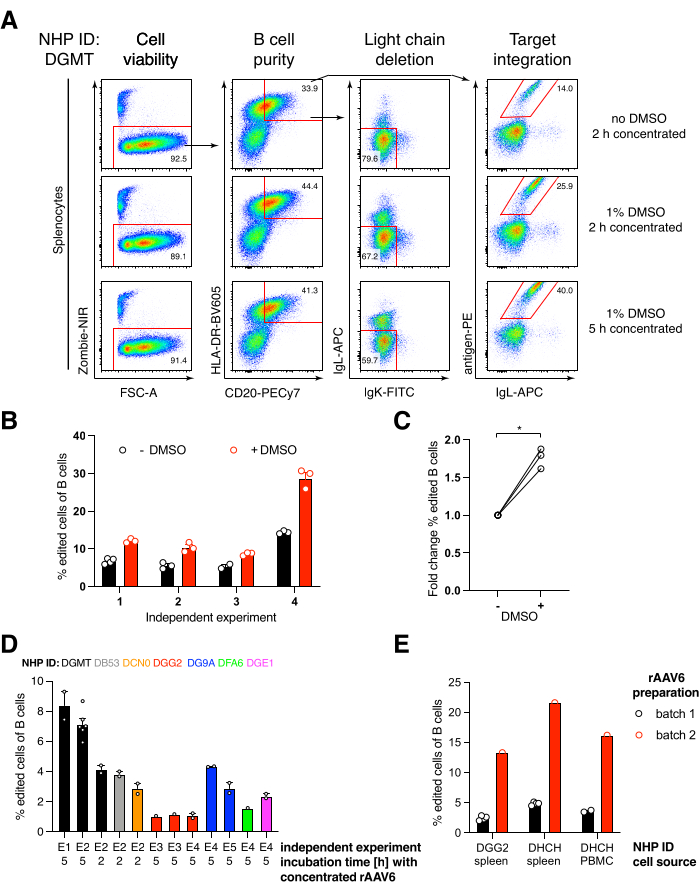
Figuur 6: Effecten van DMSO, langdurige geconcentreerde incubatie met rAAV6 HDRT, rAAV-batchkwaliteit en reproduceerbaarheid tussen verschillende donor-NHP's op de efficiëntie van genbewerking in primaire resusapen B-cellen. (A) Splenocyten werden gekweekt en bewerkt zoals beschreven. Na elektroporatie werden 5 x 10 5 cellen gekweekt in medium met of zonder 1% DMSO en geïncubeerd in 50 μL medium dat rAAV6 HDRT bevatte bij een MOI van 5 x 10 5 gedurende 2 uur of5 uur voor de toevoeging van nog eens 450 μL medium. De cellen werden 2 dagen na elektroporatie geanalyseerd door middel van flowcytometrie, zoals in figuur 5. Vertegenwoordiger van vier onafhankelijke experimenten. (B) Kwantificering van (A) over vier onafhankelijke experimenten. De stippen geven technische replicaties aan met transfectie-instellingen van 1.350 V, 10-20 ms en 1 pulselektroporatieduur en DMSO-concentraties variërend van 0,75% -1,25%. (C) Gemiddelde vouwverandering in bewerkingsefficiëntie van (B). * p > 0,05 in Mann-Whitney U-test. (D) Bewerkingsefficiëntie ten opzichte van onafhankelijke experimenten met verschillende makaken met behulp van een commerciële rAAV6-batch met een lagere efficiëntie. (E) Bewerkingsefficiëntie met behulp van twee verschillende commerciële batches rAAV6 waarin hetzelfde construct in hetzelfde experiment in de B-cellen van twee verschillende NHP's is verpakt. De stippen geven technische replicaties aan met transfectie-instellingen van 1.350 V, 10-20 ms en 1 pulselektroporatie. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De hier gepresenteerde protocollen bieden een snelle en efficiënte methode om hoge opbrengsten en titers van rAAV6's als HDRT's te genereren en nieuwe methoden om primaire resusaken B-cellen in vitro efficiënt te bewerken.
Het rAAV6-productieprotocol is relatief eenvoudig en snel, waardoor de productie en het testen van veel verschillende constructies tegelijkertijd zonder overmatige arbeid mogelijk is. Indien gewenst kan rAAV6 verder worden gezuiverd met behulp van gevestigde protocollen zoals iodixanol gradiënt ultracentrifugatie34 of waterige tweefasige partitionering35 vóór bufferuitwisseling en concentratie.
Hoewel het de totale opbrengst verminderde, kozen we ervoor om alleen serumgereduceerd celkweekmedium te gebruiken voor de rAAV6-zuivering in plaats van zuivering uit de celpellet, omdat het grootste deel van rAAV6 wordt vrijgegeven in het medium36, en zuivering van de celpellet voegt meer kosten en arbeid toe. Het gebruik van de zelfinactiverende adenovirale helper verhoogde de opbrengsten gemiddeld 30-40-voudig, waardoor het testen van constructies verpakt in AAV6 in een enkele schaal van 15 cm mogelijk was. Hoewel onze zuiveringsmethode eenvoudig is, verkrijgen we met deze methode relatief weinig batch-to-batch variatie in genbewerkingsefficiëntie of levensvatbaarheid van cellen na transductie met behulp van verschillende cellijnen of andere primaire cellen (gegevens niet getoond).
We ontwikkelden een resusapen B-celzuiveringsprotocol om onaangeroerde primaire B-cellen te verkrijgen met behulp van de negatieve uitputting van ongewenste populaties. Hoewel het niet nodig is voor het bewerken van deze cellen, biedt het een manier om een relatief zuivere populatie van primaire resusapen B-cellen te verkrijgen voor deze of andere toepassingen als andere celtypen de experimentele doelen verstoren. Zuiverheid gaat echter ten koste van verminderde totale B-celopbrengsten. Met name voor zowel de verrijkte als de niet-verrijkte B-celculturen is de fractie van B-cellen in de initiële PBMC- of splenocytenpreparaten cruciaal. Voor PBMC's in het bijzonder raden we aan om verschillende makaken te screenen op personen met een hoog percentage B-cellen in perifeer bloed om hoge aantallen B-cellen te verkrijgen voor experimenten, omdat deze waarde dramatisch kan verschillen tussen personen27. PBMC's kunnen worden verkregen door regelmatige bloedingen of leukaferese42.
Het genbewerkingsprotocol leidt tot efficiënte genbewerking, meestal tussen 60% -80% van de knock-out en 5% -20% van de knock-in B-cellen, hoewel we tot 90% BCR knock-out en 40% BCR knock-in B-cellen hebben bereikt (figuur 5 en figuur 6).
De belangrijkste parameters voor de efficiënte bewerking van resusapen B-cellen zijn de snij-efficiëntie van het sgRNA, de elektroporatieparameters, de MOI en de kwaliteit van het rAAV6-preparaat. De snij-efficiëntie van kandidaat-sgRNA's moet empirisch worden bepaald om optimale bewerking en ontwerp van de HDRT mogelijk te maken. De hier gepresenteerde elektroporatieparameters balanceren efficiëntie met levensvatbaarheid om het maximale totale aantal bewerkte B-cellen te verkrijgen in plaats van het hoogste percentage bewerkte B-cellen. Als een hoger percentage bewerkte cellen nodig is, worden verhoogde spanningen (tot 1.750 V) of veranderde pulslengtes (10-30 ms) aanbevolen, hoewel meer celdood kan worden waargenomen. We merkten ook iets hogere bewerkingsefficiënties op in milt B-cellen in vergelijking met B-cellen van PBMC's van dezelfde persoon (figuur 5); De onderliggende reden hiervoor is echter momenteel onbekend.
We ontdekten dat de toevoeging van 1% DMSO na elektroporatie de genbewerkingsefficiëntie aanzienlijk verhoogde met ~ 40% in resusapen B-cellen zonder de levensvatbaarheid van de cel te beïnvloeden (figuur 6A-C), in overeenstemming met rapporten in andere cellen43. Uitgebreide kweek in 1% DMSO moet echter worden vermeden en kan de levensvatbaarheid van cellen beïnvloeden. DMSO kan desgewenst volledig worden weggelaten.
De kweek van de cellen in een klein volume na elektroporatie gedurende enkele uren samen met de rAAV6 leidt tot hogere bewerkingsefficiënties, waarschijnlijk als gevolg van de betere transductie van HDRT door de rAAV6 en dus de hogere intracellulaire concentratie van HDRT op het relevante moment waarop Cas9 actief is. We ontdekten dat het op deze manier kweken van de cellen gedurende maximaal 8 uur de levensvatbaarheid van de cel niet beïnvloedde, maar de bewerkingsefficiëntie nam niet dramatisch toe na 5 uur (figuur 6). Als alleen knock-out in plaats van knock-in vereist is, kan deze stap worden weggelaten.
Tot slot presenteren we uitgebreide protocollen voor de genbewerking van resusapen B-cellen in vitro en de productie van rAAV6 HDRT die nodig is voor de efficiënte knock-in van gewenste constructies. Deze protocollen maken het snel, kosteneffectief testen van vele constructies verpakt als rAAV6 mogelijk en maken het preklinisch testen van de haalbaarheid en schaalbaarheid van B-celtherapieën mogelijk in een relevanter niet-menselijk primatenmodel.
Openbaarmakingen
Er worden geen tegenstrijdige belangen aangegeven.
Dankbetuigingen
We willen Harry B. Gristick en Pamela Bjorkman bedanken voor het leveren van het RC1-antigeen en de hele Nussenzweig- en Martin-laboratoria voor kritische discussie. Dit werk werd ondersteund door de Bill and Melinda Gates Foundation-subsidie INV-002777 (aan M.C.N.) en het Intramurale Onderzoeksprogramma van het National Institute of Allergy and Infectious Diseases, National Institutes of Health. (R.G. en M.A.M). M.C.N. is een HHMI-onderzoeker.
Materialen
```html
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1.5 mL tube steriele, Dnase, Rnase en purogen vrij | Stellar Scientific | T17-125 | of vergelijkbaar |
| 10 mL serologische pipet, polystyreen, steriele, non-pyrogeen, DNase-/RNase-vrij, en Human DNA-vrij | Corning | 4488 | of vergelijkbaar |
| 15 cm weefselkweekschaal | Falcon | 353025 | of vergelijkbaar |
| 15 mL polypropyleen conische buis | Falcon | 352097 | of vergelijkbaar |
| 25 mL serologische pipet, polystyreen, steriele, non-pyrogeen, DNase-/RNase-vrij, en Human DNA-vrij | Corning | 4489 | of vergelijkbaar |
| 250 mL polypropyleen conische buis | Corning | 430776 | of vergelijkbaar |
| 293AAV cellijn | Cell Biolabs | AAV-100 | |
| 2-B-mercapto-ethanol, 55mM (1000x) | Gibco | 21985-023 | |
| 48-well weefselkweekplaat | Corning | 3548 | of vergelijkbaar |
| 5 mL serologische pipet, polystyreen, steriele, non-pyrogeen, DNase-/RNase-vrij, en Human DNA-vrij | Corning | 4487 | of vergelijkbaar |
| 5 mL spuiten met Luer-Lok Tip | BD | 309646 | of vergelijkbaar |
| 50 mL polypropyleen conische buis | Falcon | 352070 | of vergelijkbaar |
| 50 mL serologische pipet, polystyreen, steriele, non-pyrogeen, DNase-/RNase-vrij, en Human DNA-vrij | Corning | 4490 | of vergelijkbaar |
| 6-well weefselkweekplaat | Falcon | 353046 | of vergelijkbaar |
| AAV-6 Verpakkingssysteem (plasmiden) | Cell Biolabs | VPK-406 | |
| AAV6 Referentiematerialen (volledige capsiden) | Charles River | RS-AAV6-FL | |
| Accu-jet S Pipet Controller | Brand | 26350 | of vergelijkbare pipet controller |
| Antibioticum/Antimycoticum 100x | Gibco | 15260-062 | |
| anti-human CD14 AlexaFluor647 | Biolegend | 301812 | |
| anti-human CD14 biotin | BioLegend | 301826 | |
| anti-human CD16 AlexaFluor700 | BD Biosciences | 557920 | |
| anti-human CD16 biotin | BioLegend | 302004 | |
| anti-human CD20 PECy7 | Biolegend | 302312 | |
| anti-human CD3 biotin | Thermo Fisher | APS0309 | |
| anti-human CD3 PE | BD Biosciences | 552127 | |
| anti-human CD33 biotin | Miltenyi | 130-113-347 | |
| anti-human CD64 biotin | BioLegend | 305004 | |
| anti-human CD66 biotin | Miltenyi | 130-100-143 | |
| anti-human CD89 biotin | BioLegend | 354112 | |
| anti-human CD8a biotin | BioLegend | 301004 | |
| anti-human HLA-DR BV605 | Biolegend | 307640 | |
| anti-human Ig lichte keten lambda APC | Biolegend | 316610 | |
| anti-human IgM BV421 | Biolegend | 314516 | |
| anti-Human Kappa Lichte Keten FITC | Fisher Scientific | A18854 | |
| Autoclaaf | Steris | Amsco Lab 250 | of vergelijkbaar |
| Celcultuur CO2 incubator | Fisher Scientific | 51026331 | of vergelijkbaar |
| Centrifugele Filter Unit (Amicon Ultra - 4, 100 kDa) | Millipore | UFC810024 | |
| Centrifuge 5920 R | Eppendorf | EP022628188 | of andere, koelbare schommelbakcentrifuge met inzetstukken voor 96-well platen, 15, 50 en 250 mL buizen |
| Chloroform | Fisher Scientific | C298SK-4 | |
| Cpg ODN | Invivogen | tlrl-2395 | |
| Dimethyl sulfoxide (DMSO) | Sigma-Aldrich | 34869-500ML | |
| DMEM, Hoge Glucose | Gibco | 11965092 | |
| DNaseI (RNase-vrij) | New England Biolabs | M0303L | |
| DPBS, geen calcium, geen magnesium | Gibco | 14190144 |
Referenties
- Victora, G. D., Nussenzweig, M. C. Germinal centers. Annual Review of Immunology. 40, 413-442 (2022).
- Plotkin, S. A. Correlates of protection induced by vaccination. Clinical and Vaccine Immunology. 17 (7), 1055-1065 (2010).
- Brinkmann, V., Heusser, C. H. T cell-dependent differentiation of human B cells into IgM, IgG, IgA, or IgE plasma cells: High rate of antibody production by IgE plasma cells, but limited clonal expansion of IgE precursors. Cellular Immunology. 152 (2), 323-332 (1993).
- Chernecky, C. C., Berger, B. J. Protein Electrophoresis - Serum., 6th edition. , Elsevier Saunders. St Louis, MO. 917-920 (2013).
- Balazs, A. B., et al. Antibody-based protection against HIV infection by vectored immunoprophylaxis. Nature. 481 (7379), 81-84 (2011).
- Greiner, V., et al. CRISPR-mediated editing of the B cell receptor in primary human B cells. iScience. 12, 369-378 (2019).
- Hartweger, H., et al. HIV-specific humoral immune responses by CRISPR/Cas9-edited B cells. Journal of Experimental Medicine. 216 (6), 1301-1310 (2019).
- Huang, D., et al. Vaccine elicitation of HIV broadly neutralizing antibodies from engineered B cells. Nature Communications. 11, 5850(2020).
- Jeske, A. M., Boucher, P., Curiel, D. T., Voss, J. E. Vector strategies to actualize B cell-based gene therapies. Journal of Immunology. 207 (3), 755-764 (2021).
- Nahmad, A. D., et al. In vivo engineered B cells secrete high titers of broadly neutralizing anti-HIV antibodies in mice. Nature Biotechnology. 40 (8), 1241-1249 (2022).
- Nahmad, A. D., et al. Engineered B cells expressing an anti-HIV antibody enable memory retention, isotype switching and clonal expansion. Nature Communications. 11, 5851(2020).
- Voss, J. E., et al. Reprogramming the antigen specificity of B cells using genome-editing technologies. eLife. 8, 42995(2019).
- Pesch, T., et al. Molecular design, optimization, and genomic integration of chimeric B cell receptors in murine B cells. Frontiers in Immunology. 10, 2630(2019).
- Cheong, T. C., Compagno, M., Chiarle, R. Editing of mouse and human immunoglobulin genes by CRISPR-Cas9 system. Nature Communications. 7, 10934(2016).
- Rogers, G. L., Cannon, P. M. Genome edited B cells: A new frontier in immune cell therapies. Molecular Therapy. 29 (11), 3192-3204 (2021).
- Hung, K. L., et al. Engineering protein-secreting plasma cells by homology-directed repair in primary human B cells. Molecular Therapy. 26 (2), 456-467 (2018).
- Johnson, M. J., Laoharawee, K., Lahr, W. S., Webber, B. R., Moriarity, B. S. Engineering of primary human B cells with CRISPR/Cas9 targeted nuclease. Scientific Reports. 8, 12144(2018).
- Wu, C. M., et al. Genetic engineering in primary human B cells with CRISPR-Cas9 ribonucleoproteins. Journal of Immunological Methods. 457, 33-40 (2018).
- Luo, B., et al. Engineering of alpha-PD-1 antibody-expressing long-lived plasma cells by CRISPR/Cas9-mediated targeted gene integration. Cell Death and Disease. 11 (11), 973(2020).
- Laoharawee, K., et al. Genome engineering of primary human B cells using CRISPR/Cas9. Journal of Visualized Experiments. (165), e61855(2020).
- Laoharawee, K., Johnson, M. J., Moriarity, B. S. CRISPR/Cas9-mediated genome engineering of primary human B cells. Methods in Molecular Biology. 2115, 435-444 (2020).
- Moffett, H. F., et al. B cells engineered to express pathogen-specific antibodies protect against infection. Science Immunology. 4 (35), (2019).
- Hartweger, H., Nussenzweig, M. C. CRISPR comes a-knock-in to reprogram antibodies in vivo. Nature Biotechnology. 40 (8), 1183-1184 (2022).
- Nishimura, Y., Martin, M. A. Of mice, macaques, and men: Broadly neutralizing antibody immunotherapy for HIV-1. Cell Host & Microbe. 22 (2), 207-216 (2017).
- Shedlock, D. J., Silvestri, G., Weiner, D. B. Monkeying around with HIV vaccines: Using rhesus macaques to define 'gatekeepers' for clinical trials. Nature Reviews Immunology. 9 (10), 717-728 (2009).
- Kreuser, S., et al. Efficient methods for generation and expansion of, and gene delivery to rhesus macaque plasma B cells. bioRxiv. , (2021).
- Gujer, C., Sundling, C., Seder, R. A., Karlsson Hedestam, G. B., Lore, K. Human and rhesus plasmacytoid dendritic cell and B-cell responses to Toll-like receptor stimulation. Immunology. 134 (3), 257-269 (2011).
- Kim, J. S., et al. Cell enrichment-free massive ex-vivo expansion of peripheral CD20(+) B cells via CD40-CD40L signals in non-human primates. Biochemical and Biophysical Research Communications. 473 (1), 92-98 (2016).
- Su, W., et al. Self-attenuating adenovirus enables production of recombinant adeno-associated virus for high manufacturing yield without contamination. Nature Communications. 13, 1182(2022).
- Endo, Y., et al. Short- and long-term clinical outcomes in rhesus monkeys inoculated with a highly pathogenic chimeric simian/human immunodeficiency virus. Journal of Virology. 74 (15), 6935-6945 (2000).
- Balaphas, A., Buchs, N. C., Meyer, J., Hagen, M. E., Morel, P. Partial splenectomy in the era of minimally invasive surgery: The current laparoscopic and robotic experiences. Surgical Endoscopy. 29 (12), 3618-3627 (2015).
- Gibson, D. G., et al. Enzymatic assembly of DNA molecules up to several hundred kilobases. Nature Methods. 6 (5), 343-345 (2009).
- Labun, K., et al. CHOPCHOP v3: Expanding the CRISPR web toolbox beyond genome editing. Nucleic Acids Research. 47, 171-174 (2019).
- Strobel, B., Miller, F. D., Rist, W., Lamla, T. Comparative analysis of cesium chloride- and iodixanol-based purification of recombinant adeno-associated viral vectors for preclinical applications. Human Gene Therapy Methods. 26 (4), 147-157 (2015).
- Guo, P., et al. Rapid and simplified purification of recombinant adeno-associated virus. Journal of Virological Methods. 183 (2), 139-146 (2012).
- Vandenberghe, L. H., et al. Efficient serotype-dependent release of functional vector into the culture medium during adeno-associated virus manufacturing. Human Gene Therapy. 21 (10), 1251-1257 (2010).
- Brinkman, E. K., Chen, T., Amendola, M., van Steensel, B. Easy quantitative assessment of genome editing by sequence trace decomposition. Nucleic Acids Research. 42 (22), 168(2014).
- Conant, D., et al. Inference of CRISPR edits from Sanger trace data. The CRISPR Journal. 5 (1), 123-130 (2022).
- Wilkinson, A. C., et al. Cas9-AAV6 gene correction of beta-globin in autologous HSCs improves sickle cell disease erythropoiesis in mice. Nature Communications. 12, 686(2021).
- Wang, Z., et al. A broadly neutralizing macaque monoclonal antibody against the HIV-1 V3-Glycan patch. eLife. 9, 61991(2020).
- Escolano, A., et al. Immunization expands B cells specific to HIV-1 V3 glycan in mice and macaques. Nature. 570 (7762), 468-473 (2019).
- Pathiraja, V., Matar, A. J., Gusha, A., Huang, C. A., Duran-Struuck, R. Leukapheresis protocol for nonhuman primates weighing less than 10 kg. Journal of the American Association for Laboratory Animal Science. 52 (1), 70-77 (2013).
- Stratigopoulos, G., De Rosa, M. C., LeDuc, C. A., Leibel, R. L., Doege, C. A. DMSO increases efficiency of genome editing at two non-coding loci. PLoS One. 13 (6), 0198637(2018).
Herprints en machtigingen
