Dit protocol beschrijft procedures voor het isoleren van hoogwaardige kernen uit bevroren niet-menselijke pancreaseilandjes van primaten voor gebruik in single-nucleus gelijktijdige RNA-sequencing en ATAC-sequencing, terwijl de bulkcytosolische fractie voor metabolomische analyses uit dezelfde monsters behouden blijft.
Methodenartikel
Bereiding van ingevroren foetale eilandjes van niet-menselijke primaten voor gecombineerde RNA-sequencing met één kern en ATAC-sequencing, en bulkmetabolomics
In dit artikel
Samenvatting
Samenvatting
Een uitdaging bij studies met weefsel dat uit meerdere cohorten is verzameld, is het vermijden van batcheffecten bij de voorbereiding op grootschalige multi-omische experimenten, zoals gecombineerde single-cell RNA-sequencing en metabolomics. De methode in de huidige studie maakt gebruik van flash-frozen pancreaseilandjes van foetale niet-menselijke primaten die over een periode van twee jaar zijn verzameld voor input in single-nucleus RNA-sequencing en ATAC-sequencing-assays. De cytosolische fractie die tijdens de nucleaire extractie werd gegenereerd, werd behouden voor stroomafwaartse capillaire elektroforese-massaspectrometrie en daaropvolgende kwantificering van metabolieten. Deze methode maakt bulkanalyse mogelijk van metabolieten die bijdragen aan de veranderende transcriptomische en epigenomische landschappen binnen experimentele omstandigheden. Het is van toepassing op veel weefseltypes en maximaliseert de hoeveelheid informatie die kan worden geëxtraheerd uit monsters die niet direct beschikbaar zijn. Naarmate de bijdrage van het metabolisme aan het vaststellen van cellulaire identiteit via epigenetische modificaties meer wordt gewaardeerd, zijn technieken die het mogelijk maken om de bijdrage van metabolieten in specifieke celtypen te identificeren, tijdig en noodzakelijk.
Inleiding
De pancreaseilandjes van Langerhans zijn van cruciaal belang voor het beheer van glucosetolerantie gedurende de hele levensduur. Het niet goed afstemmen van de bloedglucosespiegels via het glucoseverlagende hormoon, insuline of het glucoseverhogende hormoon, glucagon, resulteert in diabetes mellitus1. Aanpasbare risicofactoren om het risico op diabetes te minimaliseren, zijn onder meer lichaamsbeweging en voeding. Daarnaast wordt duidelijk dat de voeding van de moeder tijdens de zwangerschap ook effect heeft op de vatbaarheid van het nageslacht voor diabetes op volwassen leeftijd 2,3. Er zijn dus methoden nodig om de effecten van maternale voeding en andere blootstellingen, zoals medicijnen die tijdens de zwangerschap worden gebruikt, op de insulineproducerende bètacellen in modelorganismen tijdens de ontwikkeling te analyseren. Eilandjes van foetale niet-menselijke primaten (NHP) nakomelingen kunnen bijvoorbeeld worden geëvalueerd op de effecten van ontwikkelingsblootstellingen. Net als bij mensen hebben NHP's meestal eenlinggeboorten en variëren ze in hun fysiologische reactie op voeding in westerse stijl4. Hoewel de dracht en foetale ontwikkeling van NHP's veel overeenkomsten vertoont met die van mensen, waardoor ze een zeer relevante soort zijn voor metabole programmeringsstudies, omvatten uitdagingen voor het uitvoeren van vergelijkende bio-informaticatests op NHP-nakomelingen een beperkt paarseizoen en intermitterende monsterverzameling. Daarom zijn benaderingen die langdurige opslag mogelijk maken voorafgaand aan de verwerking en analyse van monsters ideaal. Dit protocol beschrijft de voorbereiding van monsters voor single nucleus RNA-sequencing, ATAC-sequencing en bulk cytoplasmatische metabolomics.
Studies door anderen op het gebied van eilandjesbiologie hebben overlap aangetoond in de genetische handtekeningen die worden waargenomen in monsters die zijn bereid via single-cell RNA-sequencing en single-nucleus RNA-sequencing 5,6. Beide methoden maken het mogelijk om transcripten te identificeren die bijdragen aan het onderscheiden van kenmerken tussen verschillende celtypen binnen de eilandjespopulatie. Door het gebruik van zachte reinigingsmiddelen op snel bevroren weefsel, kunnen intacte kernen tegelijkertijd worden gebruikt voor ATAC-sequencing, waardoor toegankelijke chromatinegebieden kunnen worden bepaald. De combinatie van single-nucleus RNA-sequencing met ATAC-sequencing zorgt voor een betere karakterisering van genregulerende netwerken7.
De voorbereiding van monsters voor metabolomics is van oudsher beperkt door de noodzaak van een hoge monstervolume-input voor vloeistofchromatografie. Bovendien moet zorgvuldig worden nagedacht over de buffers die tijdens de monstervoorbereiding worden gebruikt om valse NMR-pieken in massaspectrometrische gegevens te voorkomen. Gezien het lage aantal monsters dat uitdagend en kostbaar is om te verkrijgen in primatenstudies, kan de toewijzing van eilandjes van verschillende nakomelingen aan transcriptomische versus metabolomische experimenten moeilijk zijn. Dit protocol maakt dus gebruik van de normaal weggegooide cytosolische fractie die wordt gegenereerd tijdens cellulaire fractionering voor experimenten met één kern. Deze methode maakt de gelijktijdige karakterisering mogelijk van transcripten en open chromatineregio's die cellulaire subsets in foetale eilandjes definiëren, terwijl de metabolieten die in eilandjes worden geproduceerd kwantitatief worden gemeten (Figuur 1). Dit protocol is een bewerking van een gedemonstreerd protocol gepubliceerd door 10x genomics voor de isolatie van kernen uit flash-frozen embryonaal muizenhersenweefsel (versie CG000366 Rev D8)7.
Protocol
Het ophalen van eilandjes werd uitgevoerd in overeenstemming met de richtlijnen van het Institutional Animal Care and Use Committee (IACUC) van het Oregon National Primate Research Center (ONPRC) en de Oregon Health and Science University en werd goedgekeurd door de ONPRC IACUC. De ONPRC houdt zich aan de Animal Welfare Act en de voorschriften die worden gehandhaafd door het Amerikaanse ministerie van landbouw (USDA) en het beleid van de Public Health Service inzake humane zorg en het gebruik van laboratoria. Het protocol hierin werd toegepast op eilandjes van foetale rhesusapen die op zwangerschapsdag 145 werden geobducteerd (de dracht van rhesusapen is meestal 173-175 dagen). De bijzonderheden van de reagentia en de apparatuur die voor dit onderzoek zijn gebruikt, zijn vermeld in de materiaaltabel.
1. Isolatie van eilandjes
- Snijd de foetale alvleesklier uit de omliggende weefsels9 en plaats deze in een ijskoude, met fosfaat gebufferde zoutoplossing.
- Verwijder de alvleesklier uit PBS en blaas deze op met collagenase P (0,6 mg/ml) via canulatie van de ductus pancreaticus met behulp van een 33 G hersencanule voor knaagdieren.
- Verdeel de alvleesklier in zes secties met een steriele chirurgische schaar en verteer gedurende 27-30 minuten bij 37 °C in collagenase-oplossing.
- Bereid RT-media voor door 10% FBS en 100 E/ml penicilline/streptomycine te combineren tot RPMI 1640.
- Giet collagenase af en voeg 10 ml RT-media toe.
- Schud zachtjes gedurende 1 minuut om het resterende bindweefsel te verstoren.
- Verwijder onverteerd materiaal door het door een filter van 500 μm te persen.
- Was de eilandjes twee keer met 50 ml RT-media.
- Incubeer de eilandjes in runder-DNase I (0,8 E/ml) in een waterbad van 37 °C gedurende 10 min.
- Kweek de eilandjes 's nachts in RT-media met runder-DNase I (0,4 E/ml) bij 37 °C met 5% CO2.
- Verzend eilandjes in gespecialiseerde verpakkingen bij kamertemperatuur met gelpacks voor temperatuurregeling.
2. Steekproefbankieren voor langdurige opslag
- Beoordeel de eilandjes op grootte met behulp van een geschaald dradenkruis en noteer de mate van acinair en ducttaal weefsel in de voorbereiding.
- Pak eilandjes met een geautomatiseerde pipet met de hand in een schaal van 60 mm die 5 ml 2,8 mM glucose DMEM bevat.
OPMERKING: Het is absoluut noodzakelijk om de hoeveelheid acinair weefsel en ducttaal weefsel dat wordt opgeslagen in de uiteindelijke voorbereiding van het eilandje tot een minimum te beperken. Details van ideale eilandjes voor gebruik worden gerapporteerd in een eerder protocol9. - Pak de eilandjes in een buis van 1,5 ml en draai ze 5 minuten rond op ~300 x g bij 4 °C.
- De eilandjes geresuspendeerd in calcium- en magnesiumvrij 1x PBS.
- Centrifugeer gedurende 5 minuten op ~300 x g bij 4 °C. Gooi het supernatant weg.
- Herhaal stap 2.3-2.5 nog twee keer.
- Vries de eilandjes in een buis van 1,5 ml gedurende 10 s in vloeibare stikstof in.
- Bewaar de pellet bij -80 °C tot de dag van nucleaire isolatie.
3. Cellulaire fractionering voor isolatie van kernen en cytoplasmatische fractie
- Bereiding van buffers voor de extractie van kernen (tabel 1).
- Zorg ervoor dat de bench, pipetten en reagentia vrij zijn van RNase.
- Bereid de was, geconcentreerde lysis, lysisverdunning en verdunde kernbuffers voor volgens tabel 1.
- Bereid 0,1x lysisbuffer voor in een tube van 5 ml met behulp van de lysisverdunningsbuffer om de geconcentreerde lysisbuffer te verdunnen.
- Homogenisatie van weefsels
- Haal de monsters uit de vriezer van -80 °C en leg ze onmiddellijk op ijs.
- Voeg 500 μL 0,1x lysisbuffer toe aan de weefselkorrels en incubeer gedurende 3 minuten op ijs.
- Gebruik een wegwerp RNase-vrije pelletstamper om het weefsel voorzichtig 15 keer op ijs te homogeniseren.
- Incubeer de monsters gedurende 10 minuten op ijs.
- Voeg 500 μL wasbuffer toe aan het homogenaat en pipetteer voorzichtig op ijs.
- Vul een voorscheidingsfilter van 30 μm voor door 300 ml wasbuffer aan het filter toe te voegen over een buis van 5 ml.
- Filtreer het celhomogenaat van 1 ml met behulp van het voorscheidingsfilter van 30 μM in de buis van 5 ml.
- Draai het gefilterde homogenaat 5 minuten rond op 500 x g in een centrifuge met een zwenkbare emmer op 4 °C.
- Verzameling en opslag van supernatans voor metabolomics
- Verwijder 1 ml van het supernatans uit stap 3.2.8 met een pipet en voeg toe aan een cryovial van 1,5 ml op ijs.
- Vries het supernatans onmiddellijk in bij -80 °C. Dit supernatans zal worden gebruikt voor metabolomics.
- Voorbereiding van kernen voor single nucleus RNA- en ATAC-sequencing
- Resuspendeer de nuclei-pellet voorzichtig door druppelsgewijs 1 ml wasbuffer aan de pellet toe te voegen. Pipetteer 5 keer langzaam.
- Centrifugeer de gewassen pellet op 1000 x g gedurende 5 minuten in een centrifuge met een zwaaiende emmer op 4 °C.
- Herhaal stap 3.4.1 en 3.4.2 nog een keer.
- Na de laatste wasbeurt de kernen resuspenderen in 1 ml wasbuffer. Bewaar nucleaire bereiding op ijs.
- Aspireer 10 μL nuclei suspensie op met een pipet en meng met 10 μL 0,4% Trypan blue door voorzichtig te pipetteren.
- Voeg 10 μL van het mengsel van kernen en trypanblauw toe aan een geautomatiseerde celtellerglaasje met een pipet en plaats het in het instrument.
- Bepaal de kernconcentratie in kernen/μL.
OPMERKING: In tegenstelling tot cellulaire preparaten voor eencellige RNA-sequencing, zullen geautomatiseerde celtellers kernen als dode cellen detecteren. Niet meer dan 95% van dit preparaat mag live zijn op geautomatiseerde celtellers. Als meer dan 5% van de kernpopulatie in leven is, kan de kernsuspensie nog een keer door het voorscheidingsfilter van 30 μm worden gefilterd en gedurende 5 minuten worden gecentrifugeerd bij 1000 x g bij 4 °C. De kernconcentratie kan dan opnieuw worden berekend zoals beschreven in stap 3.4.6. - Op basis van het gewenste gerichte herstel van de kernen, resuspendeert u de kernen tot de noodzakelijke concentratie met behulp van een buffer van 1x kernen en gaat u verder met de voorbereiding van enkelkernig RNA en ATAC-sequencingbibliotheek10.
4. Bereiding van de cytosolische fractie voor capillaire elektroforese - massaspectrometrie (CE-MS)
- Combineer 80 μL cytosolische fractie verzameld in stap 3.3.1 met 20 μL nanopuur water dat geïnternaliseerde standaarden bevat.
- Ga verder met CE-MS en analyse zoals eerder beschreven 11,12,13.
Resultaten
De kwaliteit van de sequentie-outputs is sterk afhankelijk van de kwaliteit van de nucleaire input. Nucleaire blebbing en schade aan het buitenste nucleaire membraan zullen resulteren in omringende RNA- en DNA-besmetting in de analyse, wat ruis in de gegevens zal introduceren. Een puur nucleair extract heeft minimaal bewijs van kernen ingekapseld met cytoplasmatische componenten (Figuur 2A) of oververtering, bewezen door barstende kernen (Figuur 2B). Een ideale nucleaire input zal intacte kernen bevatten (Figuur 2C).
Details van de analyse van single nucleus RNA- en ATAC-sequencinggegevens worden elders uitgebreid verstrekt 5,14. Representatieve clusters van cellulaire populaties van een foetaal NHP-nucleair preparaat worden geïllustreerd via UMAP in figuur 3A. Metabolomics-gegevens kunnen gemakkelijk worden geanalyseerd met behulp van open-source software, zoals eerder beschreven15. Gegenereerde spectra kunnen worden gevisualiseerd en verrijkte metabolieten in eilandjes van een foetus van een WSD-gevoede moeder kunnen worden vergeleken met die van een CD-gevoede moeder (Figuur 3B-F).
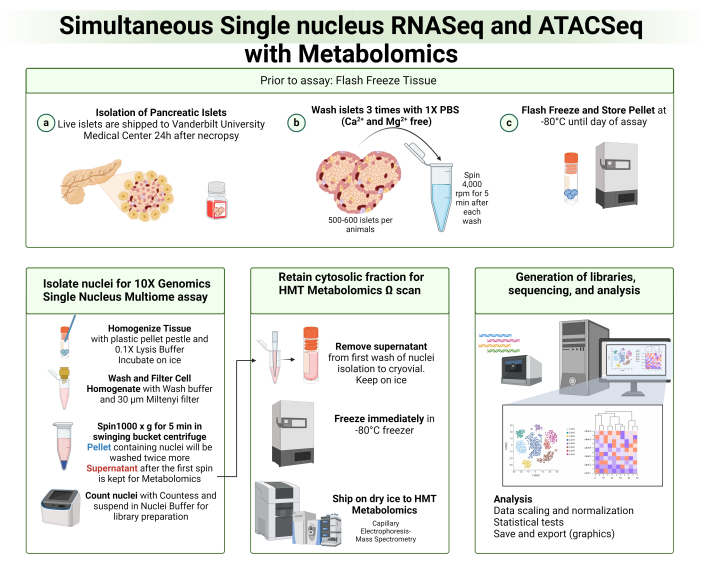
Figuur 1: Overzicht van het protocol voor de isolatie van kernen en cytosolische fracties. Foetale pancreaseilandjes werden opgeslagen bij -80 °C tot de dag van de analyse. Kernen werden geïsoleerd en gebruikt voor single nucleus RNA- en ATAC-sequencing. De cytosolische fractie na de eerste wasbeurt van de isolatie van de kernen werd behouden voor capillaire elektroforese-massaspectrometrie. Klik hier om een grotere versie van deze figuur te bekijken.
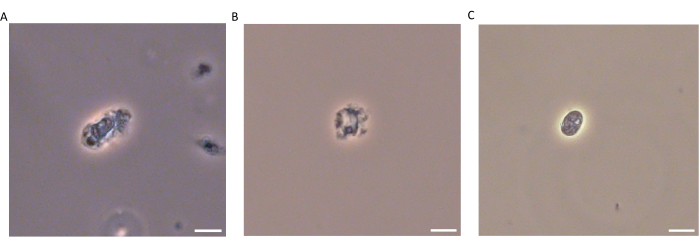
Figuur 2: Demonstratie van de juiste invoer van kernen in de multiomics-test met één kern. Voorbeelden van (A) Kern ingekapseld door cytoplasma, (B) Barstende kern met gecompromitteerd kernmembraan en (C) Intacte kern met afgeronde morfologie. Schaalbalken: 10 μm. Klik hier om een grotere versie van deze figuur te bekijken.
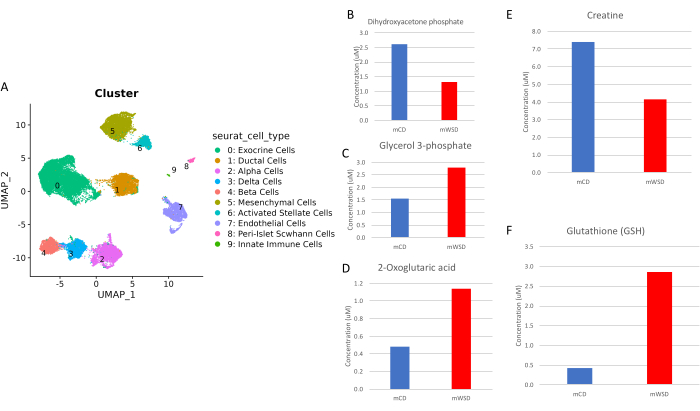
Figuur 3: Representatieve gegevens van gecombineerde single nucleus multiomics en bulk metabolomics. (EEN) UMAP-clustering van cellulaire subtypes binnen geïsoleerde foetale NHP-eilandjes op basis van genexpressie. Kwantitatieve schatting van de glycolytische metabolieten, (B) dihydroxyacetonfosfaat en (C) glycerol-3-fosfaat in de cytosolische fractie van geïsoleerde foetale NHP-eilandjes wanneer het moederdier een WSD (mWSD) of een CD (mCD) kreeg. Het dieet van de moeder kan ook het metabolisme differentieel reguleren via de (D) citroenzuurcyclus (2-oxoglutaraat), (E) aminozuurmetabolisme (creatine) en door (F) cellulaire redoxstatus (glutathion) in foetale eilandjes te veranderen. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Bufferformuleringen voor isolatie van kernen. Gedetailleerde componenten van kernen, lysis, lysisverdunning en wasbuffers worden getoond. Verdun indien nodig de reagentia tot de voorraadconcentratie voordat u de buffer bereidt. Klik hier om deze tabel te downloaden.
Discussie
Historisch gezien hebben de methoden van nucleaire isolatie voor RNA- en ATAC-sequencing met één kern gebruik gemaakt van buffers die reinigingsmiddelen bevatten die onverenigbaar zijn met vloeistofchromatografie-massaspectrometrie (LC-MS), een veelgebruikte techniek die wordt gebruikt voor kwantificering van metabolieten16,17. Het huidige protocol maakt de combinatie van transcriptomische en metabolomische technieken van dezelfde monstervoorbereiding mogelijk door een zacht reinigingsmiddel te gebruiken voor cellulaire fractionering, en deze fractionering te volgen met capillaire elektroforese, een techniek die een kleinere monsterinvoer vereist ten opzichte van vloeistofchromatografie voor de scheiding van metabolieten18.
Het meest kritische aspect van dit protocol is het behoud van het kernmembraan tijdens nucleaire isolatie om de afbraak van genetisch materiaal te voorkomen en besmetting door omringende nucleotiden en macromoleculen te verminderen. De blootstellingstijden van het monster aan lysisbuffer kunnen worden gemoduleerd om oververtering van weefsels en schade aan kernen te voorkomen. Bovendien is het snel invriezen van de eilandjes tijdens het opslaan van monsters en het supernatans dat de cytosolische fractie bevat absoluut noodzakelijk om de afbraak van genetisch materiaal en metabolieten te voorkomen. Alle monsters moeten worden verzameld uit dezelfde mediaformulering (2,8 mM glucose DMEM in dit onderzoek) om het verstorende effect van een veranderd metabolisme als gevolg van de beschikbaarheid van voedingsstoffen in kweekmedia te voorkomen.
Een beperking van deze gecombineerde metabolomische benadering is dat sommige metabolieten mogelijk niet worden vastgelegd vanwege het wasmiddel dat wordt gebruikt voor de isolatie van kernen. Daarom kan deze aanpak voor een completere metabolietenanalyse worden aangevuld met analyses van bevroren weefsels en het isoleren van metabolieten met behulp van niet-organische wasbuffers en LC-MS. Een aanbevolen aanvullende benadering is gerichte ruimtelijke metabolomics via MALDI-MS om metabole veranderingen in organen te lokaliseren19. Bovendien zijn de huidige technologieën voor het evalueren van transcriptievariabiliteit en chromatinetoegankelijkheid binnen dezelfde kern beperkt vanwege de geringe sequencingdiepte voor ATAC-sequencing. Bij data-analyses kunnen onderzoekers alleen open chromatineregio's binnen brede cellulaire clusters evalueren in plaats van specifieke subclusters binnen de dataset.
Naarmate het gebruik van weefsels die niet direct beschikbaar zijn, met name die van mensen en niet-menselijke primaten, steeds vaker voorkomt, is het absoluut noodzakelijk om de hoeveelheid informatie die uit een biologische replica kan worden gehaald, te maximaliseren. De hierboven beschreven multi-omische benadering stelt onderzoekers in staat om genetische handtekeningen te correleren met piekbeschikbaarheid rond belangrijke promotors van cellulaire identiteit, terwijl ook wordt overwogen hoe cellulair metabolisme kan hebben bijgedragen aan dergelijke veranderingen. Het identificeren van de metabolieten die overvloediger zijn in cellulaire preparaten zal aanwijzingen geven voor de specifieke epigenetische modificaties die de specificatie van cellulaire subtypes naar een bepaalde afstamming zouden drijven. Er zijn inderdaad nieuwe protocollen opgesteld voor het integreren van de bevindingen van transcriptomische en metabolomische experimenten, zij het uit verschillende weefselbronnen20. Het belang van dit protocol is dat de toegankelijkheid van chromatine, transcriptionele veranderingen en metabolietverrijking kunnen worden geëvalueerd op basis van een enkele monsterinvoer. Toekomstige toepassingen van deze techniek zullen een betere karakterisering van ziektetoestanden mogelijk maken in weefsels die zijn verkregen uit schaarse steekproefpopulaties, zoals weefsels van patiënten met zeldzame ziekten. Op het gebied van eilandjesbiologie kan de karakterisering van genregulerende netwerken en de metabole handtekeningen die correleren cruciaal inzicht verschaffen in mechanismen voor het behoud van de identiteit en functie van bètacellen om het ontstaan van diabetes te voorkomen.
Openbaarmakingen
De auteurs verklaren geen belangenconflicten.
Dankbetuigingen
De auteurs willen het hele team van de Oregon Health Sciences University bedanken voor de zorg voor de niet-menselijke primatenkolonie en voor weefselverwerving. Daarnaast leverde Vanderbilt Technologies for Advanced Genomics technische expertise en advies over experimenteel ontwerp. DTC werd ondersteund door een F31 pre-doctorale fellowship van de NIH/NIDK (1F31DK135164). PK werd ondersteund door de NIH/NIDDK (1R01DK128187). MG werd ondersteund door een VA Merit-prijs (I01 BX005399), de NIH/NIDDK (1R01DK135032, 1R01DK128187) en de JDRF (2-SRA-2024-1455-SB). Het werk van het Oregon National Primate Research Center (ONPRC) werd ondersteund door P51OD011092 voor operationele ondersteuning van het centrum.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 33 G rat brain cannula injector | Protech International | 8IC315IS5SPC | Voor duct canuleringen en pancreas opblazing |
| Penicillin/Streptomycin | Fisher | 15-140-122 | Voor RT media |
| FBS | Millipore/Sigma | F4135-500ML | Voor RT media |
| RPMI 1640 | Thermo Fisher Scientific | 11-875-135 | Voor RT media |
| Collagenase P | Sigma Aldrich | 11213865001 | Voor pancreas vertering |
| Bovine Dnase I | Sigma Aldrich | 11284932001 | Voor RT media en isolatie |
| Dextrose | Fisher | D16-1 | De uiteindelijke concentratie zal 2,8 mM zijn |
| Calcium Chloride | Fisher | C4901-500G | De uiteindelijke concentratie zal 0,5 mM zijn |
| HEPES | Gibco | 15630-080 | De uiteindelijke concentratie zal 10 mM zijn |
| Bovine Serum Albumin (BSA) Fraction 5 | Research Products International | A30075100 | De uiteindelijke concentratie zal 0,5 mg/mL zijn |
| Dulbecco's Modified Eagle Medium | Gibco | 11966025 | Voor handpicking islets |
| 20x Nuclei Buffer | 10X Genomics | 2000153/2000207 | |
| Digitonin (5%) | Thermo Fisher Scientific | BN2006 | Digitonin moet mogelijk worden opgewarmd tot 65 °C om witte neerslag op te lossen |
| MACS SmartStrainers (30 µM) | Miltenyi Biotec | 130-098-458 | |
| MACS BSA Stock Solution (10%) | Miltenyi Biotec | 130-091-376 | |
| IGEPAL CA-630 | Sigma Aldrich | i8896 | Maak een 10% stockoplossing met MilliQ water |
| Trizma Hydrochloride Solution, pH 7.5 | Sigma Aldrich | T2319-1L | |
| Sodium Chloride Solution, 5 M | Sigma Aldrich | S6546-1L | |
| Magnesium Chloride Solution, 1 M | Sigma Aldrich | M1028-100mL | |
| Sigma Protector Rnase inhibitor | Sigma Aldrich | 3335402001 | |
| DTT | Research Products International | D11000-5.0 | |
| Rnase-Free Disposable Pellet Pestles | Fisher Scientific | 12-141-368 | |
| Tween 20 | Fisher Bioreagents | BP337-500 | Maak een 20% stockoplossing met MilliQ water |
| Nuclease-Free Water | Promega | PR-P1193 | |
| DNA LoBind Tubes (5 mL) | Eppendorf | 30108310 | |
| Cryovials (1.5 mL) | VWR | 20170-225 | |
| Posi-Click Tubes (0.6 mL) | Denville | C-2177 | |
| Trypan Blue (0.4%) | Thermo Fisher Scientific | T-10282 | |
| Dual-Chamber Cell Counting Slides | Bio-Rad | 1450011 | |
| MiiliQ Ultrapure Water System | Millipore/Sigma | 7003/05/10/15 | |
| 5 kDa cut-off filter | HMT Metabolome Technologies | ||
| Internal Standards | HMT Metabolome Technologies | ||
| P10, P20, P200, and P1000 Pipettes | Eppendorf | 2231000602 | |
| Pipette Tips, 10 µL | VWR | 76322-528 | |
| Pipette Tips, 1000 µL | Thermo Fisher Scientific | 21-236-2A | |
| Pipette Tips, 20 µL | Genesee Scientific | 23-404 | |
| Pipette Tips, 200 µL | USA Scientific | 1120-8810 | |
| Phase Contrast Microscope | Olympus | BX41-PH-B | |
| Countess II Automated Cell Counter | Thermo Fisher Scientific | AMQAX1000 | |
| DPBS (1x) | Gibco | 14190-144 | |
| Allegra X-30R Centrifuge | Beckman-Coulter | B06315 | |
| RNase-ZAP | Sigma Aldrich | R2020 |
Referenties
- Christensen, A. A., Gannon, M. The beta cell in type 2 diabetes. Curr Diab Rep. 19 (9), 81(2019).
- Elsakr, J. M., Gannon, M. Developmental programming of the pancreatic islet by. Trends Dev Biol. 10, 79-95 (2017).
- Salzberg, L. Risk factors and lifestyle interventions. Prim Care. 49 (2), 201-212 (2022).
- Pound, L. D., Kievit, P., Grove, K. L. The non-human primate as a model for type 2 diabetes. Curr Opin Endocrinol Diabetes Obes. 21 (2), 89-94 (2014).
- Kang, R. B., et al. Single-nucleus RNA sequencing of human pancreatic islets identifies novel gene sets and distinguishes β-cell subpopulations with dynamic transcriptome profiles. Genome Med. 15 (1), 30(2023).
- Basile, G., et al. Using single-nucleus RNA-sequencing to interrogate transcriptomic profiles of archived human pancreatic islets. Genome Med. 13 (1), 128(2021).
- Cabé, C. M., et al. High-quality brain and bone marrow nuclei preparation for single nuclei multiome assays. J Vis Exp. (202), e65715(2023).
- Nuclei from embryonic mouse brain for single cell multiome ATAC + gex sequencing. , Available from: https://www.10xgenomics.com (2022).
- Elsakr, J. M., Deeter, C., Ricciardi, V., Gannon, M. Analysis of non-human primate pancreatic islet oxygen consumption. J Vis Exp. (154), e60696(2019).
- Chromium next gem single cell multiome ATAC + gene expression reagent kits user guide. , Available from: https://www.10xgenomics.com (2022).
- Maruyama, A., et al. Extraction of aqueous metabolites from cultured adherent cells for metabolomic analysis by capillary electrophoresis-mass spectrometry. J Vis Exp. (148), e59551(2019).
- Ooga, T., et al. Metabolomic anatomy of an animal model revealing homeostatic imbalances in dyslipidaemia. Mol Biosyst. 7 (4), 1217-1223 (2011).
- Ohashi, Y., et al. Depiction of metabolome changes in histidine-starved Escherichia coli by CE-TOFMS. Mol Biosyst. 4 (2), 135-147 (2008).
- Chiou, J., et al. Single-cell chromatin accessibility identifies pancreatic islet cell type– and state-specific regulatory programs of diabetes risk. Nat Genetics. 53 (4), 455-466 (2021).
- Pang, Z., et al. Metaboanalyst 6.0: Towards a unified platform for metabolomics data processing, analysis and interpretation. Nucleic Acids Res. , 253(2024).
- Willency, J. A., Lin, Y., Pirro, V. Targeted metabolomics in human and animal biofluids and tissues using liquid chromatography coupled with tandem mass spectrometry. STAR Protoc. 5 (1), 102884(2024).
- Behnke, J. -S., Urner, L. H. Emergence of mass spectrometry detergents for membrane proteomics. Anal Bioanal Chem. 415 (18), 3897-3909 (2023).
- Ouimet, C. M., D'amico, C. I., Kennedy, R. T. Advances in capillary electrophoresis and the implications for drug discovery. Expert Opin Drug Discov. 12 (2), 213-224 (2017).
- Alexandrov, T. Spatial metabolomics and imaging mass spectrometry in the age of artificial intelligence. Annu Rev Biomed Data Sci. 3, 61-87 (2020).
- Ewald, J. D., et al. Web-based multi-omics integration using the analyst software suite. Nat Protoc. 19, 1467-1497 (2024).
Herprints en machtigingen
