W niniejszej pracy opisujemy podstawowy protokół obrazowania i kwantyfikacji czasu trwania mitozy w żywych komórkach ssaków hodowlanych po transfekcji siRNA.
Artykuł metodologiczny
Obrazowanie time-lapse mitozy po transfekcji siRNA
W tym artykule
Podsumowanie
Streszczenie
Zmiany w organizacji komórkowej i dynamice chromosomów zachodzące podczas mitozy są ściśle skoordynowane, aby zapewnić dokładne dziedziczenie zawartości genomowej i komórkowej. Kluczowe zdarzenia mitozy, takie jak ruch chromosomów, można łatwo śledzić w pojedynczych komórkach, wykorzystując fluorescencyjną mikroskopię poklatkową (time-lapse) linii komórkowych ssaków wykazujących ekspresję specyficznych białek znakowanych GFP. W połączeniu z wyciszaniem opartym na RNAi może to być potężna metoda pozwalająca na precyzyjne określenie etapu lub etapów mitozy, na których pojawiają się defekty po obniżeniu poziomu konkretnego białka. W niniejszym protokole przedstawiamy podstawową metodę oceny wpływu wyciszenia potencjalnego białka regulacyjnego mitozy na czas trwania mitozy. Komórki są transfekowane siRNA, umieszczane w komorze inkubacyjnej na stoliku mikroskopu i obrazowane przy użyciu zautomatyzowanego mikroskopu fluorescencyjnego. Opisujemy sposób wykorzystania oprogramowania do konfiguracji eksperymentu poklatkowego, przetwarzania sekwencji obrazów w celu utworzenia montaży obrazów statycznych lub filmów, a także kwantyfikacji i analizy czasu trwania etapów mitozy z wykorzystaniem linii komórkowej wykazującej ekspresję histony H2B znakowanej mCherry. Na koniec omawiamy ważne kwestie dotyczące projektowania eksperymentu poklatkowego. Strategia ta jest komplementarna wobec innych podejść i oferuje następujące zalety: 1) wrażliwość na zmiany w kinetyce, których mogłoby nie być zauważono podczas badania komórek jako populacji oraz 2) możliwość analizy mitozy bez konieczności synchronizacji cyklu komórkowego za pomocą leków. Informacje wizualne z takich eksperymentów obrazowych pozwalają nie tylko na ocenę podetapów mitozy, ale mogą również dostarczyć nieoczekiwanych spostrzeżeń, które nie byłyby widoczne podczas analizy cyklu komórkowego metodą FACS.
Protokół
transfekcja siRNA i przygotowanie komórek
- Przygotować 4-dołkową szkiełko przedmiotowe z komorami LabTek II, dodając 0,5 mL fibronektyny (10μg/mL) do każdego otworu, który będzie wykorzystany. Inkubować przez 10-15 minut w temperaturze pokojowej.
- Przygotować kompleksy siRNA/Lipofectamine RNAiMAX (Invitrogen) do transfekcji odwróconej zgodnie z instrukcjami producenta. Należy użyć ilości zalecanych dla jednego dołka płytki 24-dołkowej na każdą komorę przeznaczoną do użycia (łącznie 100μL). Można zastosować analogiczny produkt/protokół transfekcji siRNA.
- Usunąć fibronektynę z dołków szkiełka z komorami. Do każdego wykorzystanego dołka dodać 100μL kompleksów siRNA/Lipofectamine RNAiMAX.
- Do każdego dołka zawierającego mieszaninę do transfekcji przelać 20 000 komórek wykazujących ekspresję histonu H2B-mCherry (w 500μL).
- Inkubować komórki przez ok. 24 godziny przed zastąpieniem mieszaniny do transfekcji 1mL standardowej pożywki hodowlanej.
- Inkubować komórki przez kolejne 24 godziny przed akwizycją obrazów (48 godzin po transfekcji).
Konfiguracja mikroskopu i akwizycja obrazu
- Układ do akwizycji obrazów składa się z trzech głównych części: 1) inkubatora komórkowego montowanego na stoliku mikroskopu, który utrzymuje stałą wilgotność, temperaturę 37°C oraz stężenie 5% CO2; 2) mikroskopu odwróconego wyposażonego w zautomatyzowany stolik, automatyczne przesłony dla fluorescencji i światła przechodzącego oraz automatyczne koła filtrowe; oraz 3) pakietu oprogramowania, który integruje i steruje stolikiem, przesłonami oraz kołami filtrowymi. W naszym układzie obrazowania stosujemy dostosowany inkubator komórkowy firmy OKO Lab, który można wykorzystać z szkiełkami przedmiotowymi z komorami LabTek II. Stolikiem, przesłonami i kołami filtrowymi steruje oprogramowanie Metamorph. Wskazówka: System inkubatora nablatowego OKO Lab zawiera adaptery dla różnych rozmiarów płytek, naczyń lub szkiełek przedmiotowych.
- Umieść szkiełko przedmiotowe z komorami LabTek II w inkubatorze, otwierając pokrywę wstępnie ogrzanego i ustabilizowanego inkubatora, wkładając szkiełko do adaptera i mocując je za pomocą plasteliny modelarskiej. Pozostaw pokrywkę na szkiełku z komorami, aby pożywka hodowlana nie wyschła. Zamknij pokrywę i ustaw cały inkubator na stoliku mikroskopu, upewniając się, że inkubator jest stabilnie zamocowany.
- Za pomocą programu Metamorph skonfiguruj eksperyment, wybierając „Apps/Multidimensional Acquisition” w pasku menu oprogramowania. Spowoduje to otwarcie okna, w którym można wybrać częstotliwość i czas trwania timelapse, czas ekspozycji dla każdego koloru (w przypadku stosowania wielu ustawień), liczbę i położenie pozycji stolika oraz liczbę sekcji z (jeśli jest wymagane). Wybierz miejsce zapisu plików z danymi. Wskazówka: W przypadku korzystania z oprogramowania innego niż Metamorph funkcje mogą się nieco różnić, ale ogólna koncepcja pozostaje taka sama. Doskonałą alternatywą jest Micromanager – otwartoźródłowe oprogramowanie do akwizycji oparte na ImageJ, kompatybilne z większością konfiguracji sprzętowych.
- Na potrzeby niniejszego protokołu będziemy pobierać obrazy przy dwóch długościach fal (światło przechodzące i mCherry) co 15 minut przez 8 godzin w 15 pozycjach stolika. Wskazówka: Jeśli wymagana jest lepsza rozdzielczość czasowa, można skrócić odstęp czasu między akwizycjami; wówczas należy jednak użyć mniejszej liczby pozycji stolika, przez co do analizy dostępnych będzie mniej komórek w fazie mitozy. Przy określaniu odstępów czasowych ważne jest uwzględnienie czasu potrzebnego na przełączenie zestawów filtrów w kole filtrowym.
- Wyznacz optymalny czas ekspozycji dla każdej długości fali, najpierw ustawiając ostrość na polu komórek przy użyciu oświetlenia polem jasnym. W oprogramowaniu dostosuj funkcję autofokusu tylko dla kanału światła przechodzącego (pozwoli to oprogramowaniu automatycznie ustawić ostrość w każdej pozycji stolika przed każdą akwizycją). Wskazówka: Stosujemy suchy obiektyw fazokontrastowy 40x, aby uzyskać doskonałą rozdzielczość bez konieczności użycia olejku. W zależności od wymaganej rozdzielczości optycznej można zastosować inne obiektywy.
- Przełącz na długość fali dla mCherry i wykonaj zdjęcie przy czasie ekspozycji 50 ms. Dostosuj czas ekspozycji do minimum niezbędnego do uzyskania dobrego obrazu. Niezbędne jest ograniczenie ekspozycji na światło w celu zapewnienia utrzymania żywotności komórek. Zasadniczo najlepiej osiągnąć to poprzez zastosowanie filtra neutralnego (aby zmniejszyć strumień światła wzbudzenia) i wydłużenie czasu ekspozycji kamery, zamiast zwiększać natężenie oświetlenia. Powtórz tę procedurę dla wszystkich dodatkowych długości fal, które mają być użyte. Wskazówka: Aby określić długoterminową żywotność komórek przy danej ekspozycji w Twoim eksperymencie, możesz sprawdzić całkowitą liczbę obrazów, przy których komórka przeżyje podczas planowanego timelapse, tymczasowo zmieniając odstępy między punktami czasowymi z minut na sekundy (np. 10 min staje się 10 sekundami). Jeśli komórki przeżyją 100–200 ekspozycji (lub odpowiednią liczbę), ekspozycja jest prawidłowa. W przeciwnym razie zmniejsz światło wzbudzenia, czas ekspozycji lub całkowitą liczbę obrazów, aby zasymulować pełny eksperyment.
- Następnie wybierz i zaznacz odpowiednią liczbę pozycji stolika, aby uzyskać właściwą próbkę populacji komórek. Metamorph zapisze te pozycje i będzie do nich powracać przy każdej akwizycji. Wskazówka: Zazwyczaj staram się znaleźć pozycje, w których znajduje się dużo komórek do obrazowania, ale nie tak wiele, by były zbyt gęste. Ważne jest również wybranie wystarczającej liczby pozycji, aby mieć dużą szansę na zaobserwowanie wielu komórek przechodzących przez mitozę.
- Po zarejestrowaniu wszystkich informacji dotyczących timelapse, czasu ekspozycji dla długości fal i pozycji stolika, wybierz przycisk „Preview” na ekranie, aby sprawdzić, czy oprogramowanie prawidłowo steruje urządzeniami.
- Po upewnieniu się, że wszystko jest w porządku, wybierz przycisk „Acquire” na ekranie, aby rozpocząć akwizycję. Następnie pozostaw komputer i mikroskop do wykonania pracy. Wskazówka: Obserwuj automatyzację przez co najmniej jeden pełny cykl akwizycji, aby upewnić się, że wszystko działa prawidłowo.
Przetwarzanie i analiza obrazu
- Po zakończeniu akwizycji kolejnym krokiem jest przekształcenie danych obrazowych w formę łatwiejszą w obróbce. Na potrzeby niniejszego protokołu zaprezentuję najpierw, jak generować filmy za pomocą programu Metamorph, a następnie, jak tworzyć montaże obrazów w programie ImageJ. Oba formaty będą przydatne do celów ilościowych.
- Pierwszym krokiem jest przegląd danych. W tym celu należy wybrać z paska menu opcję „Apps/Review Multidimensional Data”. Wskaż lokalizację plików, a następnie wybierz „View”. Pozwoli to na indywidualny przegląd stosu obrazów dla każdej pozycji stolika. Wybierz żądaną pozycję stolika, a następnie „Load Images”. Można teraz przesuwać się przez dane klatka po klatce.
- Dla tych pozycji stolika, w których komórki przechodzą mitozę (co określono na podstawie DNA oraz morfologii komórkowej), można tworzyć filmy i montaże za pomocą programu Metamorph lub innych programów, takich jak ImageJ (dostępny bezpłatnie poprzez NIH).
- Aby stworzyć film w programie Metamorph, wybierz z paska menu opcję „Process/Save movie”. Będzie można wybrać klatki do wykorzystania, prędkość oraz typ pliku filmu. Następnie wybierz „Save Movie”.
- Aby stworzyć montaż, zapisuję stos obrazów jako plik .stk, który może być wykorzystany w innych programach, takich jak ImageJ.
- Otwórz plik w programie ImageJ i przechodź przez klatki, aż znajdziesz komórkę przechodzącą mitozę. Wytnij obszar wokół komórki i wybierz „Image/Duplicate”. Wskazówka: Upewnij się, że powielono wszystkie klatki.
- Aby stworzyć montaż, wybierz z paska menu opcję „Image/Stacks/Make Montage”. Można tutaj określić, które klatki mają zostać uwzględnione, rozmiar i kształt montażu oraz czy między klatkami mają znajdować się obramowania. Wybierz te parametry i zatwierdź przyciskiem „Okay”. Zapisz montaż jako plik .tif i wykonaj dalszą obróbkę w programie ImageJ lub Adobe Photoshop. Wskazówka: Zmień pliki montażu z formatu 16-bitowego stosowanego przez Metamorph na format 8-bitowy, aby ułatwić przetwarzanie obrazów.
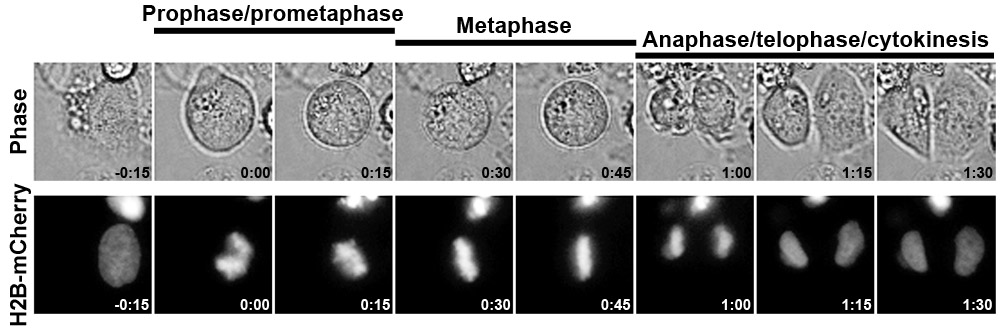
- Aby obliczyć czas trwania poszczególnych etapów mitozy, wyznacz t=0 (pierwsza oznaka kondensacji DNA lub zaokrąglenia komórki), policz liczbę klatek do momentu ułożenia chromosomów na równiku (czas w profazie/prometafazie), liczbę klatek do momentu rozpoczęcia segregacji chromosomów (czas w metafazie) oraz liczbę klatek do momentu, gdy komórki zaczną się spłaszczać (anafaza/telofaza/cytokineza). Obliczony czas dla każdego etapu mitozy zależy od odstępu czasowego między poszczególnymi klatkami.
Reprezentatywne wyniki

Rysunek 1 przedstawia wyniki typowego eksperymentu kontrolnej transfekcji siRNA z użyciem linii komórek HeLa wykazujących ekspresję histony H2B-mCherry. Metoda ta była skutecznie stosowana do ilościowego określania czasu trwania mitozy, ujawniając nieoczekiwaną rolę nukleoporyny Nup153 w czasie trwania późnej fazy mitozy1. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję rysunku 1.
Dyskusja
Dzięki niedawnym postępom w obrazowaniu i technologii białek fluorescencyjnych, obrazowanie żywych komórek stało się rutynowym elementem analizy komórkowej2. Szeroko dostępne lub stosunkowo łatwe do skonstruowania białka znakowane GFP (oraz innymi wariantami kolorystycznymi3) mogą być wykorzystywane do śledzenia wielu cech charakterystycznych dla podziału komórki, w tym dynamiki DNA/chromosomów4, 5, duplikacji centrosomów6, dynamiki cykliny B7, rozpadu i ponownego formowania się otoczki jądrowej8, 9, tworzenia wrzeciona mitotycznego10 oraz różnych etapów cytokinezy11. Białka znakowane można stosować pojedynczo lub w kombinacjach, gdy widma wzbudzenia/emisji znaczników fluorescencyjnych są kompatybilne, co pozwala na ocenę koordynacji między konkretnymi zdarzeniami. W przypadku potrzeby uzyskania większej rozdzielczości przestrzennej i/lub czasowej można zastosować mikroskopię konfokalną – niezależnie od tego, czy jest to skanowanie laserowe, dysk obrotowy czy skanowanie rezonansowe – a lista zaawansowanych opcji mikroskopowych o coraz wyższej rozdzielczości stale rośnie. Obrazowanie żywych komórek ssaków podczas mitozy zostało również przystosowane do zastosowania w wysokoprzepustowych badaniach przesiewowych RNAi oraz małych cząsteczek12-14. Zatem, choć pierwsze eksperymenty z wykorzystaniem tej techniki mogą być stosunkowo proste, możliwości rozbudowy tej strategii są ogromne.
Podziękowania
Praca ta była wspierana przez American Cancer Society (PF-07-103-01-CSM), National Institutes of Health (R01 GM61275 oraz P30 CA042014), Leukemia and Lymphoma Society oraz Huntsman Cancer Foundation.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Lipofectamine RNAiMAX | Invitrogen | 13778-075 | |
| Kryszalki z komorami Lab Tek II (4-dołkowe) | Thermo Fisher Scientific, Inc. | 12-565-337 | Dostępne są dodatkowe rozmiary komór |
| Fibronektyna | Sigma-Aldrich | F1141 | |
| Inkubator komórkowy na stolik mikroskopu | OKO Lab | Można użyć dowolnej odpowiedniej komory | |
| Zautomatyzowany odwrócony mikroskop fluorescencyjny | Olympus Corporation | Można użyć dowolnego odpowiedniego mikroskopu | |
| Pakiet oprogramowania | Metamorph | Można użyć dowolnego odpowiedniego oprogramowania |
Bibliografia
- Mackay, D. R., Elgort, S. W., Ullman, K. S. The nucleoporin Nup153 has separable roles in both early mitotic progression and the resolution of mitosis. Mol Biol Cell. 20, 1652-1660 (2009).
- Khodjakov, A., Rieder, C. L. Imaging the division process in living tissue culture cells. Methods. 38, 2-16 (2006).
- Shaner, N. C., Steinbach, P. A., Tsien, R. Y. A guide to choosing fluorescent proteins. Nat Methods. 2, 905-909 (2005).
- Meraldi, P., Draviam, V. M., Sorger, P. K. Timing and checkpoints in the regulation of mitotic progression. Dev Cell. 7, 45-60 (2004).
- Mora-Bermudez, F., Ellenberg, J. Measuring structural dynamics of chromosomes in living cells by fluorescence microscopy. Methods. 41, 158-167 (2007).
- Prosser, S. L., Fry, A. M. Fluorescence imaging of the centrosome cycle in mammalian cells. Methods Mol Biol. 545, 165-183 (2009).
- Malureanu, L. A. BubR1 N terminus acts as a soluble inhibitor of cyclin B degradation by APC/C(Cdc20) in interphase. Dev Cell. 16, 118-131 (2009).
- Anderson, D. J., Hetzer, M. W. Reshaping of the endoplasmic reticulum limits the rate for nuclear envelope formation. J Cell Biol. 182, 911-924 (2008).
- Beaudouin, J., Gerlich, D., Daigle, N., Eils, R., Ellenberg, J. Nuclear envelope breakdown proceeds by microtubule-induced tearing of the lamina. Cell. 108, 83-96 (2002).
- Marcus, A. I. Visualization of spindle behavior using confocal microscopy. Methods Mol Med. 137, 125-137 (2007).
- Steigemann, P. Aurora B-mediated abscission checkpoint protects against tetraploidization. Cell. 136, 473-484 (2009).
- Draviam, V. M. A functional genomic screen identifies a role for TAO1 kinase in spindle-checkpoint signalling. Nat Cell Biol. 9, 556-564 (2007).
- Neumann, B. High-throughput RNAi screening by time-lapse imaging of live human cells. Nat Methods. 3, 385-390 (2006).
- Stegmeier, F. Anaphase initiation is regulated by antagonistic ubiquitination and deubiquitination activities. Nature. 446, 876-881 (2007).
Przedruki i uprawnienia
