Opisano szybki test in vivo służący do badania związków neuromodulacyjnych z wykorzystaniem systemu włókien olbrzymich (Giant Fiber System, GFS) u Drosophila melanogaster. Nanowstrzyknięcia do głowy zwierzęcia wraz z rejestracją elektrofizjologiczną GFS mogą ujawnić bioaktywność związków w obrębie neuronów lub mięśni.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Połączony test nanoiniekcji i elektrofizjologii do przesiewowej oceny bioaktywności związków z wykorzystaniem systemu włókien olbrzymich Drosophila melanogaster
W tym artykule
Podsumowanie
Streszczenie
Przesiewowe badanie związków pod kątem aktywności in vivo może służyć jako pierwszy etap identyfikacji kandydatów, którzy mogą zostać rozwinięci w środki farmakologiczne1,2. Opracowaliśmy nową metodę nanoiniekcji/elektrofizjologii, która umożliwia wykrywanie bioaktywnych efektów modulujących związki na funkcję obwodu neuronalnego pośredniczącego w reakcji ucieczki u Drosophila melanogaster3,4. Nasz test in vivo, wykorzystujący system włókien olbrzymich (GFS, Rysunek 1) muszki owocówki, pozwala na przesiewanie różnych rodzajów związków, takich jak małe cząsteczki lub peptydy, i wymaga jedynie minimalnych ilości do wywołania efektu. Ponadto Drosophila GFS oferuje szeroką gamę potencjalnych celów molekularnych w neuronach lub mięśniach. Włókna olbrzymie (GFs) synaptyzują elektrycznie (złącza szczelinowe) oraz chemicznie (cholinergicznie) z obwodowym neuronem pośredniczącym (PSI) oraz neuronem mięśnia tergo-trochanteralnego (TTMn)5. Połączenie PSI z DLMn (neuronem grzbietowego mięśnia podłużnego) jest zależne od nikotynowych receptorów acetylocholiny Dα7 (nAChRs)6. Wreszcie, złącza nerwowo-mięśniowe (NMJ) TTMn i DLMn z mięśniami skoku (TTM) i lotu (DLM) są glutaminergiczne7-12. W niniejszej pracy demonstrujemy, jak wstrzykiwać nanolitrowe ilości związku, uzyskując jednocześnie wewnątrzkomórkowe zapisy elektrofizjologiczne z systemu włókien olbrzymich13 oraz jak monitorować wpływ związku na funkcję tego obwodu. Wykazujemy specyficzność testu za pomocą cytrynianu metyllycakonityny (MLA), antagonisty nAChR, który zaburza połączenie PSI z DLMn, ale nie połączenie GF z TTMn ani funkcję NMJ w mięśniach skoku lub lotu.
Przed rozpoczęciem oglądania niniejszego filmu krytycznie ważne jest, aby uważnie obejrzeć i zapoznać się z filmem JoVE pt. „Electrophysiological Recordings from the Giant Fiber Pathway of D. melanogaster ” autorstwa Augustina et al7, ponieważ prezentowany tutaj materiał stanowi rozszerzenie tej istniejącej techniki. W niniejszym opracowaniu wykorzystujemy metodę rejestracji elektrofizjologicznej, koncentrując się szczegółowo jedynie na dodatkowym zastosowaniu techniki sparowanych nanoiniekcji i monitorowania.
Protokół
1. Konfiguracja zestawu do elektrofizjologii
- Wyposażenie niezbędne do konfiguracji stanowiska elektrofizjologicznego zostało szczegółowo opisane przez Augustina et al. w niniejszym czasopiśmie14. Prosimy o zapoznanie się z tym artykułem w celu uzyskania szczegółowych informacji na temat wymaganej aparatury elektrofizjologicznej.
- Należy zmodyfikować wcześniej opisaną konfigurację stanowiska elektrofizjologicznego14, dodając szósty mikromanipulator, w którym umieszczony jest nanowtryskiwacz. Aby zapewnić łatwy dostęp do głowy zwierzęcia, powinien on zostać umieszczony pomiędzy dwoma mikromanipulatorami elektrod stymulujących, jak pokazano na Rysunku 2.
- Przed rozpoczęciem eksperymentu należy upewnić się, że wszystkie mikromanipulatory mają odpowiedni zakres ruchu na wszystkich osiach obrotu, a wszystkie elektrody oraz mikropipeta do wtryskiwania (patrz krok 2) mogą dotrzeć do zwierzęcia.
2. Konfiguracja nanoiniekcji
- Układ do nanoiniekcji wymaga urządzenia Nanoliter2000 (World Precision Instruments, Sarasota, FL, U.S.A.) lub podobnego typu injektora, który umożliwia kontrolowane iniekcje w ilościach nanolitrowych.
- Przygotować igłę do iniekcji, wykorzystując szklane mikropipety dostarczone wraz z injektorem, wyciągając je za pomocą wyciągarki do elektrod do oporności 80-100 MΩ.
- W celu zapewnienia płynnych iniekcji należy ściąć końcówki mikropipet pod kątem 45 stopni, tak aby otwór miał średnicę 11-17 μm (Rysunek 3).
- Powoli wypełnić mikropipetę do iniekcji od tyłu syntetycznym olejem za pomocą strzykawki Hamiltona, zgodnie z instrukcją obsługi Nanoliter2000, upewniając się, że nie ma pęcherzyków powietrza.
- Ostrożnie zamocować mikropipetę w nanoinjektorze i przygotować ją do załadowania związku, usuwając nadmiar oleju zgodnie z instrukcją obsługi Nanoliter2000.
- Umieścić injektor na mikromanipulatorze i załadować związek zgodnie z instrukcją obsługi Nanoliter2000. Należy dopilnować, aby końcówka mikropipety nie uległa złamaniu podczas tej procedury.
- W panelu sterowania injektora ustawić pożądaną ilość nanolitrów do iniekcji, zgodnie z instrukcją obsługi Nanoliter2000. Należy pamiętać, że całkowita wstrzyknięta ilość nie powinna przekraczać 100 nl. Stwierdzono, że większe ilości soli fizjologicznej stosowanej jako kontrola mogą wpływać na funkcjonowanie obwodu GFS.
- Kluczowe jest, aby podczas akwizycji zapisów injektor był odłączony od panelu sterowania, z wyjątkiem samego momentu iniekcji, ponieważ zasilanie nanoinjektora zakłóca zapisy, co objawia się jako szum tła (Rysunek 4). Nie należy jednak odłączać zasilania panelu sterowania, ponieważ spowoduje to jego zresetowanie.
3. Przygotowanie Drosophila melanogaster
- Znieczulić muchy w wieku od 2 do 6 dni za pomocą CO2 lub na lodzie, zgodnie z wcześniejszym opisem14,15.
- Po unieruchomieniu zwierzęcia przenieść je za pomocą pęsety na małą płytkę z miękkim woskiem dentystycznym, chwytając je za odnóża. Należy pamiętać, że samiec muszki owocowej waży około 1,0 mg, a samica około 1,2 mg, w związku z czym stosunek ilości związku do masy ciała jest inny u samców i samic. Dlatego zaleca się stosowanie w eksperymentach osobników tylko jednej płci.
- Zgodnie z wcześniejszym opisem14,15, ostrożnie zamocować muchę grzbietem do góry, upewniając się, że klatka piersiowa i głowa są unieruchomione za pomocą miękkiego wosku dentystycznego umieszczonego wokół ciała. Ostrożnie rozłożyć skrzydła tak, aby znajdowały się prostopadle do klatki piersiowej (Rysunek 2, C). Mucha powinna zostać zamocowana przy jak najmniejszym uszkodzeniu organizmu.
4. Połączona nanoiniekcja i elektrofizjologia
- Umieść zamontowaną muchę na zestawie do elektrofizjologii, kierując jej głowę w stronę elektrod stymulujących.
- Wprowadź do zwierzęcia odpowiednie elektrody stymulujące, uziemiające i rejestrujące, zgodnie z wcześniejszym opisem14,15 (Rycina 2, C). O ile nie określono inaczej, jedną elektrodę rejestrującą umieść w mięśniu DLM, a drugą w mięśniu TTM. Mięsień DLM znajduje się w klatce piersiowej między przednimi włoskami grzbietowo-centralnymi a linią środkową muchy. Mięsień TTM znajduje się w pobliżu przyczepów skrzydeł, między tylnymi a przednimi włoskami nadszybowymi muchy7.
- Wyrównaj mikropipetę do iniekcji zawierającą związek z centrum trzech ocelli znajdujących się w przyśrodkowej tylnej części głowy, ale nie wykonuj jeszcze wstrzykiwania (Rycina 2, C).
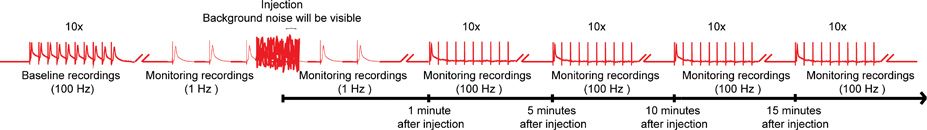
- Przed iniekcją związku uzyskaj zapis bazowy dla szlaków GF do TTM oraz GF do DLM w obrębie systemu włókien olbrzymich (GFS, Rycina 1) poprzez stymulację mózgu. W tym celu aktywuj włókna olbrzymie (GFs), podając 10 serii po 10 impulsów (40-50 mV) każdy o czasie trwania 0,03 ms z częstotliwością 100 Hz i 1-sekundową przerwą między seriami14,15 (Rycina 4). Muchy typu dzikiego powinny być w stanie odpowiadać w stosunku jeden do jednego przy tej częstotliwości stymulacji dla obu szlaków, DLM i TTM. Odrzuć muchę, jeśli szlaki GF do DLM i GF do TTM nie reagują na stymulację 100 Hz w stosunku 1:1.
- Przejdź do ciągłej stymulacji GF pojedynczymi impulsami z częstotliwością 1 Hz (Rycina 4).
- Szybko podłącz injektor do skrzynki sterowniczej. Mimo że szum tła będzie zakłócać zapisy stymulacji 1 Hz, nie przerywaj jej.
- Ostrożnie wprowadź mikropipetę do iniekcji do torebki głownej muchy tuż pod kutykulę i wstrzyknij pożądaną ilość związku do hemolimfy muchy, utrzymując stymulację 1 Hz (Rycina 4). Ze względu na otwarty układ krwionośny muchy, cały układ nerwowy zostanie wystawiony na działanie związku w ciągu kilku sekund. Chociaż konkretne miejsce iniekcji nie jest krytyczne dla dostarczenia związków do hemolimfy, region ocelli, zlokalizowanych przyśrodkowo na najbardziej grzbietowej stronie torebki głownej, jest wygodnym miejscem, które umożliwia łatwą iniekcję prowadzącą do szybkiego i równomiernego rozprowadzenia związku.
- Natychmiast usuń mikropipetę z miejsca iniekcji i odłącz injektor od skrzynki sterowniczej, kontynuując stymulację GF 1 Hz do 1 min po iniekcji (Rycina 4).
- Aby ujawnić subtelniejsze efekty działania związków na GFS, poddaj włókna olbrzymie (GFs) stresowi, podając 10 serii po 10 impulsów przy 100 Hz z 1-sekundową przerwą między seriami. Kontynuuj testowanie funkcji szlaków GF według tego schematu co 5 minut, aż do 15 min (Rycina 4). Możliwe są jednak krótsze odstępy czasu lub dłuższe okresy monitorowania.
- Aby sprawdzić, czy związek wywiera wpływ na złącza nerwowo-mięśniowe (NMJs) w GFS, i ewentualnie zawęzić zakres efektów działania związku, przystąp do bezpośredniej aktywacji neuronów ruchowych poprzez stymulację klatki piersiowej. W tym celu usuń elektrody stymulujące z oczu i umieść je na przedniej stronie klatki piersiowej, aby stymulować neurony ruchowe 10 seriami po 10 impulsów przy 100 Hz.
Uwaga: zapisy elektrofizjologiczne przedstawione w filmie nie odpowiadają efektom wstrzyknięcia czystego barwnika.
5. Reprezentatywne wyniki
Wpływ antagonisty na synapsę PSI do DLM w obrębie systemu włókien olbrzymich
Cytrynian metyllykakonityny (MLA) jest antagonistą nAChR specyficznym dla podtypów α7 nAChR. Synapsa PSI do DLMn w ścieżce GF-DLM jest zależna od podtypu Dα7 nAChR w celu prawidłowego funkcjonowania, podczas gdy genetyczne usunięcie podtypu Dα7 nAChR nie wpływa na ścieżkę GF-TTM5,6. Aby wykazać specyficzność i czułość naszego testu, wstrzyknęliśmy MLA w różnych stężeniach (0, 0,02, 0,04, 0,08, 0,12 ng/mg, objętość wstrzyknięta 46 nl) do głowy zwierzęcia (n=10 na grupę traktowaną związkiem; n=15 dla grupy traktowanej solą fizjologiczną). Wykorzystano wyłącznie samce much (o genotypie typu dzikiego wild 10E), a efekt działania związku monitorowano przez łącznie 15 minut po wstrzyknięciu.
Rysunek 5 przedstawia różnicę między zapisami bazowymi uzyskanymi przed wstrzyknięciem a zapisami uzyskanymi po wstrzyknięciu w odpowiedzi na MLA oraz kontrolny roztwór soli fizjologicznej. Stwierdzono, że wstrzyknięcie MLA spowodowało utratę zdolności ścieżki GF-DLM do odpowiedzi w stosunku jeden do jednego przy 100 Hz podczas stymulacji GF w mózgu, podczas gdy ścieżka GF-TTM pozostała niezakłócona. (Rysunek 5, górny i środkowy ślad, test t przeprowadzony między kontrolami z solą fizjologiczną [0 ng/mg] a różnymi stężeniami MLA w każdym punkcie czasowym, chyba że dane są nieparametryczne [przetestowano normalność i równość wariancji], w przeciwnym razie zastosowano test sum rang Manna-Whitneya. *p<0.001). Jednakże, w przypadku bezpośredniej stymulacji neuronów ruchowych zaobserwowano odpowiedź DLM w stosunku jeden do jednego (Rysunek 5, dolny ślad), co dowodzi, że funkcja złącza nerwowo-mięśniowego (NMJ) w DLM i TTM nie jest wpływana przez MLA. MLA wydawało się osiągać maksymalny efekt 1 minutę po wstrzyknięciu dawek 0,04, 0,08 i 0,12 ng/mg, ponieważ w ciągu następnych 15 minut okresu testowania nie odnotowano dalszych istotnych zmian. Ponadto związek ten osiągnął maksymalny efekt przy 0,08 ng/mg, gdyż przy wyższej dawce 0,12 ng/mg nie zaobserwowano silniejszych odpowiedzi.

Rycina 1. Schemat systemu włókien olbrzymich (GFS). Włókna olbrzymie (GFs, zaznaczone na czerwono) tworzą synapsy elektryczne (złącza szczelinowe) oraz chemiczne (cholinergiczne) z peryferyjnym interneuronem synaptycznym (PSI, zaznaczony na zielono) oraz neuronem mięśnia tergo-trochanteralnego (TTMn, zaznaczony na żółto)5. Połączenie PSI z DLMn (neuronem mięśnia grzbietowo-podłużnego, zaznaczony na niebiesko) jest zależne od podtypu Dα7 nAChR6. Wreszcie złącze nerwowo-mięśniowe (NMJ) TTMn i DLMn z mięśniami skoknymi (TTM, zaznaczone na fioletowo) i mięśniami lotnymi (DLM, zaznaczone na fioletowo) jest glutaminergiczne.
Uwaga: Połączenie GF z PSI ma charakter zarówno elektryczny, jak i chemiczny. Jednakże u mutantów shakB (którym brakuje połączeń szczelinowych) nie można zarejestrować żadnej odpowiedzi DLM po stymulacji GF w mózgu, co dowodzi, że komponent chemiczny w przypadku braku połączeń elektrycznych jest niewystarczający do wywołania potencjału czynnościowego w PSI 5,16-18. Ponieważ połączenie GF z PSI jest zależne od połączeń szczelinowych, na rysunku tym, ze względów uproszczenia, przedstawiono jedynie połączenie szczelinowe w synapsie.

Rycina 2.
Konfiguracja mikromanipulatorów.
- Do dopasowania mikromanipulatora do iniekcji dla rejestracji par GFS z jednoczesnymi nanoiniekcjami wykorzystuje się zmodyfikowaną konfigurację wcześniej opisanego protokołu14. Zamocowany preparat muchy jest zorientowany głową w stronę eksperymentatora. Mikromanipulator do iniekcji (#1) jest umieszczony przed eksperymentatorem, pomiędzy dwoma manipulatorami dla wolframowych elektrod stymulujących (#2 i #3). Dwa mikromanipulatory dla szklanych elektrod rejestrujących (#4 i #5) są umieszczone odpowiednio po lewej i prawej stronie. Mikromanipulator dla wolframowej elektrody uziemiającej (#6) jest umieszczony najdalej z tyłu, po lewej stronie (pokazano tutaj) lub po prawej stronie.
- Zbliżenie z góry na rozmieszczenie poszczególnych elektrod i mikropipety do iniekcji.
- Prawidłowo zamocowana D. melanogaster z wprowadzonymi elektrodami i mikropipetą do iniekcji, gotowa do zabiegu. Należy zwrócić uwagę, że ciało zwierzęcia jest zamocowane tak, aby klatka piersiowa znajdowała się w poziomie, a skrzydła były rozpostarte. Wosk jest bezpiecznie owinięty wokół ciała, co zapobiega ruchom zwierzęcia. Dodatkowo, zgodnie z wcześniejszym opisem14, w odpowiednich miejscach zostały umieszczone elektroda uziemiająca (#6, w odwłoku), szklane elektrody rejestrujące (#4 i #5, w klatce piersiowej, zaznaczone ciemnymi konturami) oraz elektrody stymulujące (#2 i #3, po jednej w każdym oku). Mikropipeta do iniekcji (#1) jest prawidłowo wyrównana z centrum trzech ocelli (zakreślone kółkiem). Wprowadzenie mikropipety do iniekcji powinno nastąpić w tym obszarze.

Rycina 3. Skośna mikropipeta do iniekcji. Przedstawiono schemat prawidłowo ściętej mikropipety. Otwór elektrody powinien być ścięty pod kątem 45 stopni i mieć średnicę od 11 do 17 μm. Prawidłowo przygotowana skośna mikropipeta do iniekcji jest kluczowa dla sprawnego przeprowadzenia iniekcji przy minimalnym uszkodzeniu muchy.

Rysunek 4. Ogólny schemat protokołu nanoiniekcji/elektrofizjologii. Reprezentatywny schemat ogólnego przebiegu protokołu nanoiniekcji/elektrofizjologii. Rozpocznij od wykonania pomiaru bazowego poprzez stymulację włókien olbrzymich (GF) z częstotliwością 100 Hz przy użyciu 10 serii po 10 bodźców każda (tutaj pokazano tylko jedną serię). Przed wstrzyknięciem rozpocznij stymulację z częstotliwością 1 Hz w odstępach jednej sekundy. W czasie wstrzykiwania (gdy injektor jest podłączony do jednostki sterującej) zaobserwowany zostanie znaczny szum tła; mimo to nie należy przerywać rejestracji. Po wstrzyknięciu (gdy injektor zostanie odłączony od jednostki sterującej) kontynuuj stymulację 1 Hz przez około kolejną minutę. Na koniec poddaj włókna GF stresowi za pomocą 10 serii po 10 bodźców przy 100 Hz i kontynuuj testowanie funkcji szlaków GF według tego paradygmatu co 5 minut przez maksymalnie 15 minut. Uwaga: zapisy zostały zmodyfikowane w celu stworzenia ogólnego schematu i nie reprezentują konkretnego uzyskanego wyniku. Rysunek nie jest w skali, nie wszystkie ślady są pokazane. Kliknij tutaj, aby wyświetlić powiększony obraz.

Rysunek 5. Efekty MLA w GFS.
- Graficzne przedstawienie wpływu cytrynianu metyllykakonityny (MLA), antagonisty α7 nAChR, na szlak GF-DLM u muszki owocowej przy różnych stężeniach (0, 0.02, 0.04, 0.08, 0.12 ng/mg; n=10 dla każdej grupy traktowanej związkiem; n=15 dla grupy traktowanej solą fizjologiczną). Już jedną minutę po wstrzyknięciu zaobserwowano istotny i natychmiastowy efekt przy stężeniu 0.04 ng/mg MLA. Istotny efekt odnotowano również przy 0.8 ng/mg i 0.12 ng/mg MLA podczas stymulacji GFs częstotliwością 100 Hz. Nie stwierdzono istotnych różnic między kontrolą z solą fizjologiczną a stężeniem 0.02 ng/mg MLA. Ponadto nie zauważono zmiany efektu po 1. minucie od wstrzyknięcia w badanym przedziale czasowym (15 minut). Test t przeprowadzono pomiędzy kontrolami z solą fizjologiczną (0 ng/mg) a różnymi stężeniami MLA w każdym punkcie czasowym. Poziomy przedstawiono jako średnia +/- SEM, *p < 0.001.
- Przykładowe zapisy odpowiedzi DLM przy stymulacji 100 Hz. Górny zapis pokazuje odpowiedzi mięśnia przed wstrzyknięciem MLA w odpowiedzi na stymulację GF w mózgu. Zauważmy, że mięsień jest w stanie odpowiadać na każdy bodziec w stosunku jeden do jednego przy 100 Hz. Środkowy zapis przedstawia odpowiedzi DLM po wstrzyknięciu MLA (0.12 ng/mg). Zauważmy, że mięsień nie jest w stanie odpowiadać na każdy bodziec w stosunku jeden do jednego przy 100 Hz (gwiazdki). Dolny zapis pokazuje odpowiedzi DLM z tego samego preparatu (0.12 ng/mg) w odpowiedzi na bezpośrednią stymulację neuronów ruchowych w klatce piersiowej. Ponieważ DLM odpowiada w stosunku jeden do jednego przy 100 Hz podczas stymulacji torakalnej, brak odpowiedzi przy stymulacji mózgu można przypisać cholinergicznemu połączeniu PSI-DLMn.
- Graficzne przedstawienie wpływu różnych stężeń MLA (0, 0.02, 0.04, 0.08, 0.12 ng/mg) na szlak GF-TTM. Nie zaobserwowano istotnych różnic między wstrzyknięciem soli fizjologicznej (0 ng/mg) a związkiem w żadnym punkcie czasowym. Test t przeprowadzono pomiędzy kontrolami z solą fizjologiczną (0 ng/mg) a różnymi stężeniami MLA w każdym punkcie czasowym, *p < 0.001.
- Przykładowe zapisy odpowiedzi TTM przy stymulacji 100 Hz. Górny zapis pokazuje odpowiedzi mięśnia przed wstrzyknięciem MLA w odpowiedzi na aktywację GF poprzez stymulację w mózgu. Zauważmy, że mięsień jest w stanie odpowiadać na wszystkie bodźce przy 100 Hz. Środkowy zapis pokazuje odpowiedzi DLM po wstrzyknięciu MLA (0.12 ng/mg). Odpowiedzi mięśnia TTM na stymulację GF w mózgu pozostają w stosunku jeden do jednego. Dolny zapis pokazuje odpowiedzi TTM z tego samego preparatu na stymulację neuronów ruchowych w klatce piersiowej częstotliwością 100 Hz (0.12 ng/mg).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiony tutaj bioassay z nanoiniekcją/elektrofizjologią umożliwia szybki screening związków w układzie nerwowym muszki owocówki. Jest to nowatorska technika in vivo, która wymaga niewielkich ilości związku w celu wywołania efektu w obrębie różnych celów molekularnych w dobrze scharakteryzowanym obwodzie neuronalnym. Metoda ta może być wykorzystywana do badania bioaktywności różnych związków, od nieznanych toksyn po komercyjnie dostępne środki farmakologiczne.
W niniejszej pracy ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie zgłoszono żadnych konfliktów interesów.
Podziękowania
Pragniemy podziękować członkom laboratoriów Mari i Godenschwege, w szczególności Aline Yonezawa, za uwagi i pomoc w opracowaniu niniejszego protokołu. Praca ta była finansowana z grantu R21NS06637 National Institute for Neurological Disorders and Stroke przyznanego F.M. i T.A.G.; A.B. otrzymał finansowanie z grantu National Science Foundation o numerze 082925, URM: Integrative Biology for future researchers.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Rejestracja za pomocą elektrod szklanych: kapilary z borokrzemianu szkła | World Precision Instruments, Inc. | 1B100F-4 | średnica zewnętrzna 1,0 mm, średnica wewnętrzna 0,58 mm |
| Stymulator | Technologie traw | Model S48 | |
| Wzmacniacz | Getting Instruments, Inc. | Model 5A | |
| Oprogramowanie do akwizycji danych: Digidata | Molecular Devices | Model 1440A | |
| Oprogramowanie do gromadzenia danych: pCLAMP | Molecular Devices | Wersja 10 | |
| Stereomikroskop z pierścieniowym oświetlaczem światłowodowym | AmScope | Model SM-4T HL250-AR | |
| Przygotowanie pola sekcji do montażu | AmScope | SM-2TZ | |
| Manualny mikromanipulator Kite &podstawa z regulacją kąta nachylenia | World Precision Instruments, Inc. | Model nr M3301 Kite: Model nr KITE-M3-L | |
| Drosophila melanogaster Genotyp Wild 10E (szczep typu dzikiego) | Bloomington Stock Center | Numer katalogowy 3892 | |
| Pionowa wyciągarka do pipet | Instrumenty Davida Kopfa | Model 700c | |
| Szklane mikropipety do iniekcji: kapilary z borokrzemianu szkła | World Precision Instruments, Inc. | Katalog nr 4878 | średnica zewnętrzna 1,14 mm, średnica wewnętrzna 0,5 mm |
| Olej silikonowy | Fisher Scientific | Numer katalogowy S159-500 | |
| Fazownik | Sutter Instrument Co. | K.T. Brown Typ Model nr BV-10 | |
| Nanoliter2000 | World Precision Instruments, Inc. | Katalog nr B203XVY | |
| Niebieski barwnik spożywczy | McCormick &i Sp. | N/D | Składniki: woda, glikol propylenowy, FD&C Blue 1 oraz 0,1% propyloparabenu (konserwant). |
| Cytrynian metyllycakonityny (MLA) | Tocris Bioscience | Katalog nr 1029 | |
| Plastikowe pałeczki woskowe | Hygenic Corporation (Akron Ohio USA) |
Bibliografia
- Koehn, F. E., Carter, G. T. The evolving role of natural products in drug discovery. Nat. Rev. Drug Discov. 4, 206-220 (2005).
- Miljanich, G. P. Ziconotide: neuronal calcium channel blocker for treating severe chronic pain. Curr. Med. Chem. 11, 3029-3040 (2004).
- Layer, R. T., Wagstaff, J. D., White, H. S. Conantokins: peptide antagonists of NMDA receptors. Curr. Med. Chem. 11, 3073-3084 (2004).
- Lewis, R. J. Conotoxins as selective inhibitors of neuronal ion channels, receptors and transporters. IUBMB Life. 56, 89-93 (2004).
- Allen, M. J., Godenschwege, T. A., Tanouye, M. A., Phelan, P. Making an escape: development and function of the Drosophila giant fibre system. Semin. Cell Dev. Biol. 17, 31-41 (2006).
- Fayyazuddin, A., Zaheer, M. A., Hiesinger, P. R., Bellen, H. J. The nicotinic acetylcholine receptor Dalpha7 is required for an escape behavior in Drosophila. PLoS biology. 4, e63(2006).
- Jan, L. Y., Jan, Y. N. L-glutamate as an excitatory transmitter at the Drosophila larval neuromuscular junction. The Journal of physiology. 262, 215-236 (1976).
- Usherwood, P. N., Machili, P., Leaf, G. L-Glutamate at insect excitatory nerve-muscle synapses. Nature. 219, 1169-1172 (1968).
- Marrus, S. B., Portman, S. L., Allen, M. J., Moffat, K. G., DiAntonio, A. Differential localization of glutamate receptor subunits at the Drosophila neuromuscular junction. The Journal of neuroscience : the official journal of the Society for Neuroscience. 24, 1406-1415 (2004).
- Petersen, S. A., Fetter, R. D., Noordermeer, J. N., Goodman, C. S., DiAntonio, A. Genetic analysis of glutamate receptors in Drosophila reveals a retrograde signal regulating presynaptic transmitter release. Neuron. 19, 1237-1248 (1997).
- Qin, G. Four different subunits are essential for expressing the synaptic glutamate receptor at neuromuscular junctions of Drosophila. The Journal of neuroscience : the official journal of the Society for Neuroscience. 25, 3209-3218 (2005).
- Schuster, C. M. Molecular cloning of an invertebrate glutamate receptor subunit expressed in Drosophila muscle. Science. 254, 112-114 (1991).
- Tanouye, M. A., Wyman, R. J. Motor outputs of giant nerve fiber in Drosophila. Journal of. 44, 405-421 (1980).
- Augustin, H., Allen, M. J., Partridge, L. Electrophysiological Recordings from the Giant Fiber Pathway of D. melanogaster. J. Vis. Exp. (47), e2412(2011).
- Allen, M. J., Godenschwege, T. Drosophila Neurobiology. Zhang, B., Freeman, M. R., Waddell, S. , Cold Spring Harbor Laboratory Press. 215-224 (2010).
- Blagburn, J. M., Alexopoulos, H., Davies, J. A., Bacon, J. P. Null mutation in shaking-B eliminates electrical, but not chemical, synapses in the Drosophila giant fiber system: a structural study. J. Comp. Neurol. 404, 449-458 (1999).
- Thomas, J. B., Wyman, R. J. Mutations altering synaptic connectivity between identified neurons in Drosophila. J. Neurosci. 4, 530-538 (1984).
- Baird, D. H., Schalet, A. P., Wyman, R. J. The Passover locus in Drosophila melanogaster: complex complementation and different effects on the giant fiber neural pathway. Genetics. 126, 1045-1059 (1990).
- Gorczyca, M., Hall, J. C. Identification of a cholinergic synapse in the giant fiber pathway of Drosophila using conditional mutations of acetylcholine synthesis. J. Neurogenet. 1, 289-313 (1984).
- Allen, M. J., Murphey, R. K. The chemical component of the mixed GF-TTMn synapse in Drosophila melanogaster uses acetylcholine as its neurotransmitter. The European journal of neuroscience. 26, 439-445 (2007).
- Mejia, M. A novel approach for in vivo screening of toxins using the Drosophila Giant Fiber circuit. Toxicon. 56, 1398-1407 (2010).
- Stork, T. Organization and function of the blood-brain barrier in Drosophila. J. Neurosci. 28, 587-597 (2008).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Tagi
System włókien olbrzymich Drosophilatest elektrofizjologiczny z nanoiniekcjąprzesiewowe badanie bioaktywności związkówrejestracje elektrofizjologicznenanoinżektor Nanoliter 2000szlak włókien olbrzymichanaliza złącza nerwowo-mięśniowegonikotynowe receptory acetylocholinystymulacja neuronów ruchowychobwód reakcji ucieczkowej
