Przeszczepianie szpiku kostnego u myszy jest powszechnie stosowaną techniką badania mechanizmów immunologicznych sterujących chorobą przeszczep przeciw gospodarzowi u ludzi. Możliwość monitorowania wzorców migracji limfocytów T in vivo pozwala na szczegółową analizę rozwoju i utrwalania odpowiedzi limfocytów T podczas choroby przeszczep przeciw gospodarzowi.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Indukcja choroby przeszczep przeciw gospodarzowi i monitorowanie limfocytów T in vivo z wykorzystaniem modelu mysiego dopasowanego pod kątem MHC
W tym artykule
Podsumowanie
Streszczenie
Choroba przeszczep przeciw gospodarzowi (GVHD) stanowi główną barierę ograniczającą szerokie zastosowanie przeszczepu szpiku kostnego jako terapii leczniczej w różnorodnych niedoborach hematologicznych. GVHD jest wywoływana przez dojrzałe, alloreaktywne limfocyty T obecne w przeszczepie szpiku kostnego, które po wlewieniu do biorcy powodują uszkodzenie narządów gospodarza. Jednak u myszy do inokulum szpiku kostnego należy dodać limfocyty T, aby wywołać GVHD. Choć podjęto szeroko zakrojone prace nad charakterystyką odpowiedzi limfocytów T po przeszczepie, obrazowanie bioluminescencyjne jest nieinwazyjną metodą monitorowania wzorców migracji limfocytów T in vivo.
Po letalnym napromieniowaniu myszy biorcze poddawane są przeszczepowi komórek szpiku kostnego i splenocytów od myszy dawców. W przeszczepie uwzględniono subpopulacje limfocytów T pochodzących od myszy L2G85.B6 (myszy transgeniczne konstytutywnie ekspresujące lucyferazę). Poprzez przeszczepienie jedynie wybranych subpopulacji limfocytów T możliwe jest śledzenie konkretnych grup tych komórek in vivo, a na podstawie ich lokalizacji można formułować hipotezy dotyczące roli określonych subpopulacji limfocytów T w promowaniu GVHD w różnych punktach czasowych. W ustalonych odstępach czasu po przeszczepie myszy biorcze są obrazowane przy użyciu kamery Xenogen IVIS CCD. Intensywność światła można skwantyfikować za pomocą oprogramowania Living Image w celu wygenerowania obrazu w pseudokolorach na podstawie intensywności fotonów (czerwony = wysoka intensywność, fioletowy = niska intensywność).
Między 4. a 7. dniem po przeszczepie myszy biorcze zaczynają wykazywać kliniczne objawy GVHD. Cooke et al.1 opracowali system punktacji do ilościowej oceny progresji choroby na podstawie tekstury futra, integralności skóry, aktywności, utraty masy ciała oraz postawy myszy biorczych. Myszy są oceniane codziennie i poddawane eutanazji w stanie agonalnym. Myszy biorcze zazwyczaj wchodzą w stan agonalny 20-30 dni po przeszczepie.
Modele mysie są cennymi narzędziami w badaniu immunologii GVHD. Selektywne przeszczepianie konkretnych subpopulacji limfocytów T pozwala na dokładną identyfikację roli, jaką odgrywa każda z tych subpopulacji. Nieinwazyjne śledzenie odpowiedzi limfocytów T in vivo stanowi dodatkową wartość modeli mysich GVHD.
Protokół
1. Naświetlanie letalne
- Umieść do 10 myszy biorców w klatce mikroizolacyjnej kompatybilnej z używanym irradiatorem.
- Naświetlaj w 2 równych dawkach, sumując dawkę całkowitą (dawka całkowita = 9 cGy dla biorców BALB.B). Druga irradiacja powinna odbyć się 3 hr po pierwszej. Iniekcję należy wykonać w ciągu 4-6 hr po końcowej irradiacji. Naświetlaj myszy przy użyciu źródła Cs137 lub irradiatora RS2,000.
- Po drugiej dawce promieniowania przechowuj myszy w klatce mikroizolacyjnej z zakwaszoną wodą do momentu transplantacji.
2. Przygotowanie splenocytów
- Uśmiercić jedną mysz dawcy zgodnie z wytycznymi instytucjonalnymi. Każdy dawca dostarcza zazwyczaj od 75x106 do 125x106 splenocytów. Przy zastosowaniu zestawów do oczyszczania CD8, z każdej myszy uzyskuje się zazwyczaj od 6x10⁶ do 12x106 limfocytów T CD8.
- Usunąć śledzionę, wykonując najpierw pionowe nacięcie o długości 2 cm, 2 cm na prawo od linii środkowej, bezpośrednio pod klatką piersiową. Przeciąć futro, skórę i błonę trzewną.
- Wyjąć śledzionę i przygotować zawiesinę pojedynczych komórek, umieszczając narząd na sicie o oczkach 40 μl w szalce Petriego z pożywką 1640 RPMI z dodatkiem 5% FBS. Użyć tłoka strzykawki do rozcierania śledziony, aż cały narząd zostanie przepuszczony przez sito.
- Powtórzyć ten proces dla każdego dawcy WT i L2G85.B6. Wszystkie zawiesiny pojedynczych komórek WT zebrać do jednej probówki stożkowej 50 ml, a wszystkie zawiesiny pojedynczych komórek L2G85.B6 zebrać do oddzielnej probówki stożkowej 50 ml.
- Wirować komórki z prędkością 1 200 obr./min przez 10 min w temperaturze 4 °C. Resuspendować osady w pożywce 1640 RPMI z 5% FBS i policzyć komórki.
3. Przygotowanie szpiku kostnego
- Usuń skórę z jednej kończyny tylnej myszy donora.
- Ostrożnie wytnij jak najwięcej tkanki mięśniowej z kości udowej oraz piszczeli i strzałki.
- Oddziel kończynę tylną, odcinając kość udową w stawie biodrowym. Odetnij tylną łapę tuż poniżej miejsca przecięcia piszczeli i strzałki. Wszystkie cięcia kości należy wykonać przy użyciu wytrzymałych nożyczek.
- Ostrożnie usuń pozostałą tkankę mięśniową. Odetnij strzałkę – w strzałce znajduje się stosunkowo mało szpiku kostnego, więc jej opracowywanie nie jest opłacalne.
- Umieść kończynę tylną w schłodzonym medium 1640 RPMI z 5% FBS i powtórz proces dla drugiej kończyny tylnej. Z każdej myszy powinno uzyskać się od 20x106 do 40x106 komórek szpiku kostnego.
4. Usuwanie szpiku kostnego
- Wyjąć jedną tylną kończynę z pożywki i umieścić w dużej płytce Petri z niewielką ilością zimnej pożywki (~1 ml).
- Odciąć staw kolanowy. Za pomocą strzykawki (pojemność > 5 ml) wprowadzić igłę podskórną do kości piszczelowej i nacisnąć tłok, aż cały czerwony materiał zostanie usunięty z wnętrza kości. Powtórzyć czynność dla kości udowej. Pozostałe kości pozbawione szpiku odrzucić. Powtórzyć cały proces dla drugiej tylnej kończyny.
- Przygotować zawiesinę pojedynczych komórek, pipetując pożywkę zawierającą szpik do dużej płytki Petri, a następnie użyć tłoka strzykawki i sita o oczkach 40 μl. Przenieść zawiesinę pojedynczych komórek do probówki stożkowej o pojemności 50 ml i przechowywać w lodzie.
5. Usuwanie CD3
Istnieje wiele sposobów na usunięcie komórek CD3+ z szpiku kostnego. Nasze laboratorium stosuje zestaw firmy Miltenyi Biotec (CD3-biotin - 130-093-021). Usuń komórki CD3+ ze szpiku kostnego zgodnie z protokołem producenta. Bufor do zestawów Miltenyi będzie odtąd nazywany Buforem MACS (2 mM EDTA, 0,5% BSA w PBS, pH 7,2).
- Przemyć komórki, wirując splenocyty i komórki szpiku kostnego przy 1200 rpm przez 10 min w temperaturze 4 °C, a następnie policzyć komórki.
- Usunąć CAŁY supernatant. Resuspendować komórki szpiku kostnego w 100 μl buforu MACS na każde 10 milionów komórek szpiku kostnego.
- Kontynuować proces usuwania komórek CD3 zgodnie z protokołem producenta.
- Przemyć komórki szpiku kostnego po usunięciu CD3 trzykrotnie w sterylnym PBS. Policzyć komórki szpiku kostnego pozbawione CD3 i resuspendować w odpowiedniej objętości, aby wstrzyknąć 107 komórek.
6. Oczyszczanie limfocytów T CD8+ z myszy L2G85.B6
Istnieje wiele sposobów oczyszczania limfocytów T CD8 z myszy L2G85.B6. Istnieje również kilka metod usuwania limfocytów T CD8 z donorów splenocytów WT. Nasze laboratorium wykorzystuje zestawy firmy Miltenyi Biotec (usuwanie CD8 – 130-049-401, oczyszczanie CD8 – 130-095-236).
- Resuspendować osad WT w 90 μl buforu MACS na 107 komórek. Następnie przeprowadzić deplecję limfocytów T CD8 zgodnie z protokołem producenta (CD8 depletion - 130-049-401).
- Resuspendować osad L2G85.B6 w 40 μl buforu MACS na 107 komórek. Następnie przeprowadzić puryfikację limfocytów T CD8 zgodnie z protokołem producenta (CD8 purification - 130-095-236).
- Policzyć każdą populację komórek i przemyć każdą z nich 3 razy sterylnym PBS. Resuspendować każdą populację w odpowiedniej objętości, aby wstrzyknąć 18x106 splenocytów WT (po deplecji CD8) oraz 2x10⁶ zpuryfikowanych limfocytów T CD8 L2G85.B6.
7. Przygotowanie do wstrzyknięcia
- W probówce do mikrocentryfugi połączyć 107 komórek szpiku kostnego pozbawionych CD3, 18x106 splenocytów WT (pozbawionych CD8) oraz 2x10⁶ oczyszczonych limfocytów T CD8 L2G85.B6. Przemyć sterylnym PBS i zawiesić ponownie w 300 μl.
- Wstrzyknąć preparat komórkowy do żyły ogonowej myszy biorcy. Iniekcje należy wykonywać przy użyciu igieł o rozmiarze 28 G.
- Przechowywać myszy w klatkach z mikroizolatorem i zakwaszoną wodą. Codziennie oceniać stan myszy, korzystając z systemu oceny GVHD opracowanego przez Cooke et al1.
8. Obrazowanie bioluminescencyjne
- Sześć dni po przeszczepie wstrzyknąć myszom biorcom 4 mg D-lucyferyny. Odczekać 5 min, aby lucyferyna zareagowała z lucyferazą.
- Uśpić mysz w komorze z izofluranem obrazownika bioluminescencyjnego i obrazować biorców przez 5 min przy małym binningu. Pozwoli to uzyskać obraz o wysokiej rozdzielczości przy jednoczesnym zarejestrowaniu jak największej liczby zdarzeń.
- Przeanalizować dane przy użyciu oprogramowania Living Image. Skalę obrazu w pseudokolorach można zmienić, aby uzyskać najlepsze wyniki. Jest jednak niezbędne, aby w różnych eksperymentach stosować tę samą skalę.
- Obszary zainteresowania (ROI) można wyznaczyć za pomocą oprogramowania Living Image, a emisję światła można ilościowo określić, obliczając strumień (fotony/sec) emitowany z każdego obszaru zainteresowania.
9. Reprezentatywne wyniki
Około 7–10 dni po transplantacji u myszy zaczynają pojawiać się kliniczne objawy GVHD. Myszy wyglądają na zaniedbane z powodu braku pielęgnacji. Odbiorcy zaczną również tracić na wadze między 7. a 10. dniem po transplantacji. Aktywność i postawa myszy biorców pozostaną stosunkowo normalne do około 12–14 dnia po transplantacji. Skumulowane wyniki GVHD będą sukcesywnie rosły przez pierwsze 2–3 tygodnie po transplantacji (Rycina 1A). Przebieg choroby jest dość zróżnicowany między osobnikami; jednak biorcy powinni jednolicie ulec GVHD do 30–40 dnia po transplantacji (Rycina 1B).
Rycina 2 przedstawia myszy biorców, których obrazowanie wykonano 6 dni po przeszczepie. Skala pseudokolorów wskazuje na zróżnicowaną emisję światła w całym organizmie, przy czym najwyższa intensywność światła jest emitowana w śledzionie i jelitach. Akumulacja limfocytów T CD8 w jelitach jest zgodna z wcześniejszymi ustaleniami6. Myszy biorców można ponownie umieścić w klatce mikroizolacyjnej w celu obrazowania w późniejszym punkcie czasowym lub poddać eutanazji w celu obrazowania ex vivo.
| Kryteria | Stopień 0 | Stopień 1 | Stopień 2 |
| Utrata masy ciała (tygodniowo) | < 10% | > 10% - < 25% | >25% |
| Postawa | Normalna | Garbienie się tylko w spoczynku | Wyraźne garbienie się; ograniczenie ruchomości |
| Aktywność | Normalna | Łagodny do umiarkowanego spadek aktywności | Brak ruchu, chyba że nastąpi stymulacja |
| Struktura futra | Normalna | Łagodne do umiarkowanego zmierzwienie | Silne zmierzwienie/brak pielęgnacji |
| Struktura skóry | Normalna | Łuszczka łap/ogona | Wyraźne obszary pozbawione skóry |
Tabela 1. Cooke et al opracowali ten system punktacji w 1996 roku1. Myszy powinny być oceniane codziennie według każdego z kryteriów wymienionych po lewej stronie. Każda mysz otrzymuje od 0 do 2 punktów za każde kryterium, a wynik całkowity stanowi suma wszystkich poszczególnych punktów.
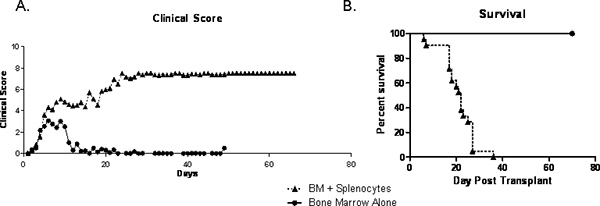
Rysunek 1. Myszy BALB.B poddane dawce letalnej napromieniowania otrzymały przeszczep 107 komórek szpiku kostnego samodzielnie lub wraz z 18x106 splenocytów WT pozbawionych komórek T CD8 oraz 2x10⁶ oczyszczonych komórek T CD8 L2G85.B6. A) Dane dotyczące oceny klinicznej biorców szpiku kostnego samodzielnie lub wraz ze splenocytami WT pozbawionymi komórek T CD8 i oczyszczonymi komórkami T CD8 L2G85.B6. B) Dane dotyczące przeżywalności biorców szpiku kostnego samodzielnie lub wraz ze splenocytami WT pozbawionymi komórek T CD8 i oczyszczonymi komórkami T CD8 L2G85.B6. Kliknij tutaj, aby wyświetlić powiększony rysunek.
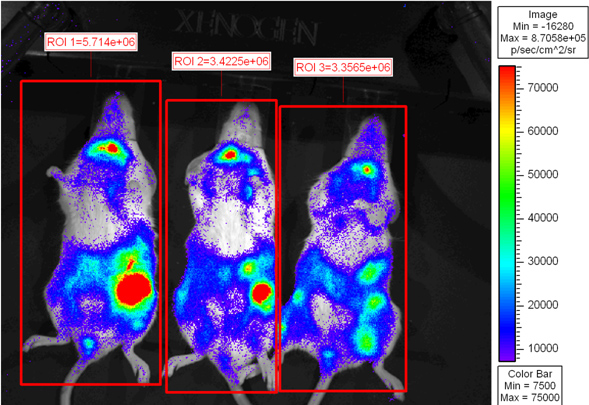
Rysunek 2. Myszy BALB.B poddane irradiation letalnej otrzymały przeszczep 107 komórek szpiku kostnego samodzielnie lub wraz z 18x106 splenocytami WT z usuniętymi limfocytami T CD8 oraz 2x10⁶ oczyszczonymi limfocytami T CD8 L2G85.B6. Odbiorcom wstrzyknięto 4 mg D-lucyferyny drogą domięśniową, a następnie wykonano obrazowanie za pomocą Xenogen IVIS przez 5 min przy małym binningu. Przedstawiono obrazy w pseudokolorach, gdzie kolor fioletowy oznacza niską intensywność, a czerwony wysoką intensywność. Wyznaczono obszary zainteresowania obejmujące całą mysz i zmierzono całkowity strumień (photons/sec).
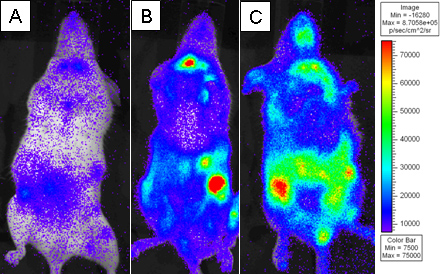
Rysunek 3. Myszy BALB.B poddane dawce śmiertelnej napromieniowania otrzymały przeszczep 107 komórek szpiku kostnego samodzielnie lub wraz z 18x106 splenocytami WT pozbawionymi limfocytów T CD8 oraz 2x10⁶ oczyszczonych limfocytów T CD8 L2G85.B6. Odbiorcom wstrzyknięto 4 mg D-lucyferyny drogą doszczuwną, a następnie wykonano obrazowanie systemem Xenogen IVIS przez 5 min przy małym binningu. Przedstawiono obrazy w pseudokolorach, gdzie kolor fioletowy oznacza niską intensywność, a czerwony wysoką intensywność. Obrazowanie odbiorców wykonano w dniach: A) 4, B) 6 i C) 8 po transferze.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiony tutaj protokół indukcji GVHD u myszy stanowi klinicznie istotny model mysiej GVHD. Pierwotnie opracowana przez zespół Bergera et al. w 1994 roku kombinacja szczepów C57Bl/6 do BALB.B jest dopasowana pod kątem MHC, a śmiertelność w przebiegu GVHD jest pośredniczona przez efektory CD4-zależne oraz CD8 T2, co jest bardzo zbliżone do najczęstszego scenariusza klinicznego3. Znane jest, że sam przeszczep komórek T CD8 nie wywołuje GVHD w tym modelu; jednak progresja choroby jest zna...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Brak zadeklarowanych konfliktów interesów.
Podziękowania
Jesteśmy wdzięczni Alice Gaughan i Jiao-Jing Wang, których wybitne wsparcie techniczne, wkład intelektualny i wsparcie moralne odegrały kluczową rolę w rozwoju tych badań. Badania te były finansowane z grantu NIH AI036532 przyznanego GAH.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| RPMI 1640 | Invitrogen | 12633-012 | |
| Płódycowa surowica bydlęca | Invitrogen | 10439016 | |
| Sito do komórek 40 μM | BD Biosciences | 352340 | |
| CD3e-Biotyna | Miltenyi Biotec | 130-093-021 | |
| Mikrokulki przeciwbiotynowe | Miltenyi Biotec | 130-091-147 | |
| Mikrokulki CD8a | Miltenyi Biotec | 130-049-401 | Stosowane do usuwania limfocytów T CD8 ze śledziony. |
| Koktajl przeciwciał do oczyszczania CD8a | Miltenyi Biotec | 130-095-236 | Stosowany do oczyszczania limfocytów T CD8 ze śledziony. |
| D-lucyferyna | Caliper Life Sciences | 122796 |
Bibliografia
- Cooke, K. R. An experimental model of idiopathic pneumonia syndrome after bone marrow transplantation: The roles of minor H antigens and endotoxin. Blood. 88, 3230-3239 (1996).
- Berger, M. T cell subsets involved in lethal graft-versus-host disease directed to immunodominant minor histocompatibility antigens. Transplantation. 57, 1095-1102 (1994).
- Nimer, S. D. Selective depletion of CD8+ cells for prevention of graft-versus-host disease after bone marrowtransplantation. A randomized controlled trial. Transplantation. 57, 82-87 (1994).
- Korngold, R., Sprent, J. Surface markers of T cells causing lethal graft-vs-host disease to class I vs class II H-2 differences. Journal of Immunology. 135, 3004-3010 (1985).
- Cao, Y. A. Molecular imaging using labeled donor tissues reveals patterns of engraftment, rejection, and survival in transplantation. Transplantation. 80, 134-139 (2005).
- Asady, R. E. l TGF-{beta}-dependent CD103 expression by CD8(+) T cells promotes selective destruction of the host intestinal epithelium during graft-versus-host disease. J. Exp. Med. 201, 1647-1657 (2005).
- Larson, R. S., Springer, T. A. Structure and function of leukocyte integrins. Immunol Rev. 114, 181-217 (1990).
- Karecla, P. I. Recognition of E-cadherin on epithelial cells by the mucosal T cell integrin alpha M290 beta 7 (alpha E beta 7). Eur. J. Immunol. 25, 852-856 (1995).
- Cepek, K. L. Adhesion between epithelial cells and T lymphocytes mediated by E-cadherin and the alpha E beta 7 integrin. Nature. 372, 190-193 (1994).
- Malarkannan, S. The molecular and functional characterization of a dominant minor H antigen, H60. J. Immunol. 161, 3501-3509 (1998).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
