Ksenoprzeszczepy ludzkich nowotworów są unaczyniane i infiltrowane przez komórki pochodzenia mysiego podczas fazy wzrostu in vivo. Aby obejść odchylenia spowodowane przez te zanieczyszczające komórki podczas dalszej analizy, opracowaliśmy metodę pozwalającą na kompleksowe zubożenie wszystkich komórek myszy poprzez magnetyczne sortowanie komórek.
Artykuł metodologiczny
Zubożenie komórek myszy z ludzkich ksenoprzeszczepów nowotworowych znacznie poprawia dalszą analizę komórek docelowych
W tym artykule
Podsumowanie
Streszczenie
Wykorzystanie modeli linii komórkowych in vitro do badań nad rakiem było użytecznym narzędziem. Wykazano jednak, że modele te nie naśladują wiarygodnie guzów pacjenta w różnych testach1. Ludzkie ksenoprzeszczepy nowotworowe stanowią złoty standard w odniesieniu do biologii nowotworów, odkrywania leków i badań nad przerzutami 2-4. Ksenoprzeszczepy nowotworowe mogą pochodzić z różnych rodzajów materiałów, takich jak linie komórek nowotworowych, tkanka nowotworowa z pierwotnych guzów pacjenta4 lub guzy przeszczepiane seryjnie. Podczas rozmnażania in vivo ksenografowana tkanka jest infiltrowana i unaczyniana przez komórki pochodzenia mysiego. Wiele czynników, takich jak jednostka nowotworowa, pochodzenie materiału ksenoprzeszczepowego, tempo wzrostu i region przeszczepu, wpływa na skład i ilość komórek myszy obecnych w ksenoprzeszczepach nowotworowych. Jednak nawet gdy czynniki te są utrzymywane na stałym poziomie, stopień zanieczyszczenia komórek myszy jest bardzo zmienny.
Zanieczyszczenie komórek myszy znacząco utrudnia dalsze analizy ksenoprzeszczepów ludzkich nowotworów. Ponieważ fibroblasty myszy wykazują wysoką skuteczność posiewu i tempo proliferacji, mają tendencję do przerastania kultur ludzkich komórek nowotworowych, zwłaszcza wolno proliferujących subpopulacji. DNA, mRNA i składniki białkowe pochodzące z komórek myszy mogą wpływać na dalszą analizę ekspresji genów, sekwencjonowanie nowej generacji, a także analizę proteomu 5. Aby przezwyciężyć te ograniczenia, opracowaliśmy szybką i łatwą metodę izolowania nietkniętych ludzkich komórek nowotworowych z ksenoprzeszczepowanej tkanki nowotworowej. Procedura ta opiera się na kompleksowym zubożeniu komórek pochodzenia mysiego poprzez połączenie automatycznej dysocjacji tkanek z laboratoryjnym dysocjatorem tkanek i magnetycznym sortowaniem komórek. Tutaj pokazujemy, że ludzkie komórki docelowe można uzyskać o czystości wyższej niż 96% w czasie krótszym niż 20 minut, niezależnie od typu nowotworu.
Wprowadzenie
Guzy lite u ludzi składają się z wielu typów komórek fizjologicznych, jak również nowotworowych. Tworzą niejednorodne tkanki o złożonych strukturach biologicznych. Procesy biologiczne, takie jak powstawanie nowotworów, progresja i reakcje na terapie, nie są jeszcze w pełni poznane. Modele hodowli komórkowych in vitro stanowią użyteczne narzędzie do badania i zrozumienia biologii nowotworów. Mogą one jednak tylko częściowo odzwierciedlać struktury i procesy występujące w tkankach nowotworowych. Wiarygodne i stabilne przedkliniczne modele nowotworów ludzkich są warunkiem wstępnym dla rozwoju leków i terapii przeciwnowotworowych4,6, a także dla zrozumienia biologii guza i interakcji komórek nowotworowych i ich środowiska.
Modele ksenoprzeszczepów ludzkich nowotworów pochodzące z pierwotnych guzów pacjentów wykazują wysokie relacje z tkanką pochodzenia pod względem architektury histologicznej, interakcji ze strukturami mikrośrodowiskowymi, potencjału przerzutowego i reakcji na leki7. Nawet jeśli ksenoprzeszczepy nowotworowe pochodzą z hodowanych komórek lub linii komórkowych, bardziej naśladują guzy pacjenta, dlatego wykazują większą trafność w większości testów w porównaniu z modelami hodowli komórkowych in vitro. Te cechy sprawiają, że są one złotym standardem modeli przedklinicznych4. Ksenotransplantacja komórek ludzkich myszom jest często stosowana nie tylko w badaniach nad komórkami macierzystymi w celu określenia potencjału macierzystego i różnicowania populacji docelowej8.
Wykazano, że ludzkie mikrokrążenie i ludzkie komórki odpornościowe są zastępowane podczas rozmnażania in vivo ludzkich nowotworów2,9. Czynniki takie jak podtyp guza, tempo wzrostu i region przeszczepu mają duży wpływ na globalny poziom infiltracji, a także na skład znalezionych typów komórek myszy. Jednak nawet gdy czynniki te są utrzymywane na stałym poziomie, ilość i skład komórek myszy są bardzo zmienne.
Dalsze analizy ksenoprzeszczepowanych tkanek są często kwestionowane przez komórki pochodzenia mysiego. Pierwotne hodowle ludzkich komórek nowotworowych z ksenoprzeszczepów są często przerastane przez fibroblasty. Oprócz utrudniania wytwarzania linii komórek nowotworowych in vitro, dalsze testy, takie jak badanie cytotoksyczności leków lub farmakokinetyka, są stronnicze, ponieważ w większości przypadków niemożliwa jest korekta in silico na skutki wynikające z zanieczyszczenia komórek myszy. Poza tym, jedyny częściowo wyjaśniony wzajemny oddziaływanie między mysimi fibroblastami a ludzkimi komórkami nowotworowymi ma bezpośredni wpływ na wyniki eksperymentalne badań10. Co więcej, najbardziej nieprzewidywalna zmienność naciekających komórek myszy pogarsza dokładne analizy molekularne. W analizach NGS lub proteomów każdy mierzony sygnał pochodzący od myszy zamiast sygnału ludzkiego guza bezpośrednio zmniejsza czułość sekwencjonowania. Również analizy ekspresji oparte na mikromacierzach są kwestionowane przez mysie kwasy nukleinowe, które mogą krzyżować się z ludzkimi sondami.
Aby obejść przeszkody związane z zanieczyszczeniem komórek myszy w dalszych analizach ludzkich komórek nowotworowych z modeli ksenoprzeszczepów, zaproponowano różne podejścia. W wielu badaniach pożądane komórki docelowe do dalszej analizy są izolowane przy użyciu markerów lub kombinacji markerów wyrażanych wyłącznie na ludzkich komórkach nowotworowych. Jednak brak wiarygodnych markerów do pozytywnej identyfikacji ludzkich komórek nowotworowych często stanowi dużą przeszkodę. Nawet markery o szerokiej ekspresji, takie jak EpCAM w przypadku nowotworów u ludzi, często wykazują wewnętrzne różnice w ekspresji guza11. Zwiększa to ryzyko, że subpopulacje o niskiej ekspresji, np. komórki nowotworowe przeszły przejście z nabłonka do mezenchymalnego, zostaną utracone podczas izolacji. Ponadto bezpośrednie powiązanie agenta selekcyjnego z komórką docelową może mieć wpływ na późniejsze wyniki analizy. Podjęto również próby zubożenia komórek myszy przy użyciu kombinacji przeciwciał specyficznych dla mysich epitopów CD45 i MHC klasy I12. Jednak ta kombinacja znaczników wykrywa tylko podzbiór komórek myszy. Innym podejściem jest usprawnienie analizowania procesów przez oprogramowanie. Niemniej jednak, wszystkie te podejścia albo nie są odpowiednie dla żadnego rodzaju konfiguracji eksperymentalnej, albo dla żadnej jednostki nowotworowej i metody transplantacji.
W tym badaniu prezentujemy nowatorską i szybką metodę kompleksowego usuwania komórek myszy z ksenoprzeszczepowanych tkanek, niezależnie od szczepu myszy i tkanki pochodzenia. W badaniach przesiewowych na wielu narządach i tkankach docelowych do przeszczepu ksenoprzeszczepów (w tym skóry, płuc, mózgu, nerek i mięśni szkieletowych) byliśmy w stanie zidentyfikować kombinację przeciwciał pozwalającą na kompleksowe wykrywanie komórek myszy. Przeciwciała te sprzężono z cząstkami superparamagnetycznymi, miareczkowano i optymalizowano pod kątem zubożenia za pomocą magnetycznego sortowania komórek. Ponieważ stosowane są tylko przeciwciała specyficzne dla myszy, ludzkie komórki docelowe pozostają "nietknięte", a metoda nie ogranicza się do ksenoprzeszczepionej tkanki nowotworowej. Wykazaliśmy, że kompleksowe usunięcie komórek myszy z ksenoprzeszczepowanych próbek nowotworowych standaryzuje i ułatwia hodowle ludzkich komórek nowotworowych. Ponadto wykazaliśmy, że analiza ludzkich ksenoprzeszczepów nowotworowych za pomocą sekwencjonowania nowej generacji jest znacznie ulepszona. Ponieważ efekt ten zaobserwowano, mimo że podczas wzbogacania egzomu przeprowadzono selekcję specyficzną dla sekwencji ludzkiej, oczekuje się, że wpływ na sekwencjonowanie całego genomu i całego transkryptomu będzie jeszcze bardziej widoczny. Podsumowując, usunięcie komórek myszy za pomocą tej nowatorskiej metody ułatwia hodowlę ludzkich komórek nowotworowych i znacznie usprawnia dalsze analizy ksenoprzeszczepów ludzkich nowotworów.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z lokalnymi wytycznymi etycznymi i prawnymi Regierungspräsidium Freiburg Referat 35.
1. Przygotowanie odczynnika
UWAGA: Przed rozpoczęciem eksperymentu przygotuj następujące odczynniki z zestawu dysocjacyjnego:
- Aby przygotować enzym H, rozpuścić każdą fiolkę liofilizowanego proszku w 3 ml RPMI 1640, Roswell Park Memorial Institute 1640 (RPMI 1640) lub zmodyfikowanej pożywki Eagle (DMEM) firmy Dulbecco. Aby uniknąć wielokrotnego zamrażania i rozmrażania, należy przygotować odpowiednie porcje (np. 200 μl) i przechowywać je w temperaturze -20 °C przez okres do 6 miesięcy.
- Aby przygotować enzym R, rozpuścić fiolkę z liofilizowanym proszkiem w 2,7 ml pożywki RPMI lub DMEM. Aby uniknąć wielokrotnego zamrażania i rozmrażania, należy przygotować odpowiednie porcje (np. 100 μl) i przechowywać je w temperaturze -20 °C przez okres do 6 miesięcy.
- Aby przygotować enzym A, rozpuścić fiolkę z liofilizowanym proszkiem w 1 ml buforu A dostarczonego z zestawem bez wirowania. Aby uniknąć wielokrotnego zamrażania i rozmrażania, należy przygotować odpowiednie porcje (np. 25 μl) i przechowywać je w temperaturze -20 °C przez okres do 6 miesięcy. Należy upewnić się, że zawiesina ta została dokładnie wymieszana bezpośrednio przed pobraniem wymaganej objętości reakcji.
- Przygotować 250 ml buforu (1x PBS z 0,5% BSA) do procedury separacji komórek i barwienia przeciwciał.
UWAGA: Podczas hodowli komórek po usunięciu komórek myszy przefiltruj wszystkie i roztwory enzymów przez filtr 0,22 μm.
2. Protokół dysocjacji guza
UWAGA: W tym badaniu użyto ksenoprzeszczepów niedrobnokomórkowego raka płuca (NSCLC), raka nerki i pęcherza moczowego. Guzy zostały wygenerowane przez wszczepienie ksenoprzeszczepów niedrobnokomórkowego raka płuca (NSCLC), raka nerki i pęcherza moczowego u 4-6 tygodniowych samic myszy NMRI nu / nu, jak opisano wcześniej13,
UWAGA: Ponieważ protokół ten jest całkowicie niezależny od typu nowotworu, może być stosowany do każdego rodzaju guza pochodzącego z pacjenta lub linii komórkowej, a także innych rodzajów ludzkich tkanek ksenotransplantowanych bez modyfikacji protokołu.
- Przygotować 5 ml mieszanki wytrawiającej na próbkę tkanki (do 1 g) na świeżo, dodając 4,7 ml RPMI 1640 lub DMEM, 200 μl enzymu H, 100 μl enzymu R i 25 μl enzymu A do probówki dysocjacyjnej (probówki C). Upewnij się, że dokładnie wymieszałeś zawiesinę enzymu R przed pobraniem wymaganej objętości.
- Złóż zwierzęta w ofierze przez zwichnięcie szyjki macicy w znieczuleniu. Zdezynfekuj mysz poprzez spryskanie niewielką ilością etanolu 80% v/v.
- Zbierz podskórny guz z boku myszy za pomocą kleszczy i nożyczek w kapturze do hodowli tkankowej. Przeciąć skórę w miejscu guza za pomocą nożyczek, a następnie oddzielić guz od sąsiedniej zdrowej tkanki za pomocą kleszczy i nożyczek.
UWAGA: W zależności od celu eksperymentu wykonaj ten i kolejne kroki w warunkach aseptycznych. W tym badaniu wszystkie etapy przeprowadzono w kapturze do hodowli komórkowej w warunkach aseptycznych, aby móc hodować komórki. - Przygotuj próbkę guza do trawienia, usuwając tłuszcz (ponieważ spowoduje to, że próbka będzie unosić się na wodzie) i obszary martwicze (ponieważ spowoduje to zmniejszenie żywotności), odcinając ją za pomocą kleszczy i skalpela. Tkankę zmielić na kawałki o grubości 2 - 4 mm za pomocą skalpeli i kleszczy.
- Przenieś kawałki tkanki do probówki C zawierającej mieszankę do wytrawiania.
- Zamknij rurkę C i upewnij się, że jest szczelnie zamknięta. Przymocuj go do góry nogami na tulei stołowego dysocjatora tkanek i upewnij się, że kawałki tkanki znajdują się w obszarze wirnika/stojana.
- Wybierz tryb "h_tumor_01", naciskając przycisk "w górę" lub "w dół", aż tryb pojawi się na wyświetlaczu, a następnie naciskając przycisk "start".
- Jeśli korzystasz z funkcji podgrzewania dysocjatora tkanek na stole, pamiętaj również o podłączeniu grzejnika. Następnie uruchom tryb 37C_h_TDK_1 (dla guzów miękkich), 37C_h_TDK_2 (dla średnich guzów) lub 37C_h_TDK_3 (dla guzów twardych), klikając symbol folderu na ekranie dotykowym, aż pojawi się folder "Miltenyi".
- Aby wybrać tryb, klikaj strzałkę w górę lub w dół, aż zostanie podświetlony 37C_h_TDK_2 trybu dysocjacji. Rękawy stacjonarnego dysocjatora tkanek są przedstawione jako pozycje na wyświetlaczu urządzenia. Wybierz pozycje, na których są uruchamiane próbki, klikając je na ekranie dotykowym. Naciśnij "start", aby uruchomić tryb i kontynuuj krok 2.16.
UWAGA: W zależności od typu nowotworu odpowiedni może być inny program dysocjacji (patrz krok 2.7.1).
- Obserwuj okno pokazujące "Zakończenie programu" na ekranie. Po zakończeniu programu odłącz rurkę C od stacjonarnego dysocjatora tkankowego.
- Inkubować próbkę przez 30 minut w temperaturze 37 °C w ciągłym obracaniu, np. za pomocą rotatora probówkowego.
- Po inkubacji przymocuj rurkę C do góry nogami na tulei stołowego dysocjatora tkanek. Ponownie upewnij się, że materiał próbki znajduje się w obszarze wirnika/stojana.
- Uruchom program dysocjacji h_tumor_02 (dla guzów miękkich i średnich) lub h_tumor_01 (dla guzów twardych) zgodnie z opisem w kroku 2.7.1.
- Po zakończeniu programu odłącz rurkę C od stacjonarnego dysocjatora tkankowego.
- Inkubować próbkę przez 30 minut w temperaturze 37 °C w ciągłej rotacji.
- Po inkubacji przymocuj rurkę C do góry nogami na tulei laboratoryjnego dysocjatora tkanek. Ponownie upewnij się, że materiał próbki znajduje się w obszarze wirnika/stojana.
- Uruchom program dysocjacji h_tumor_03 (w przypadku guzów miękkich), h_tumor_02 (w przypadku guzów średnich) lub h_tumor_01 (w przypadku guzów twardych) zgodnie z opisem w kroku 2.7.
- Aby pobrać materiał próbki na dno probówki, należy przeprowadzić krótki etap wirowania (przy 100 x g przez 10 sekund).
- Ponownie zawiesić komórki i nałożyć na sitko o wielkości 70 μm nesh umieszczone w probówce o pojemności 50 ml. Umyj sitko komórkowe 20 ml RPMI 1640 lub DMEM.
- Odwirować zawiesinę komórek w dawce 300 x g przez 7 min. Całkowicie odessać supernatant.
- Ponownie zawiesić komórki w 5 ml buforu w celu zliczenia. Kontynuuj zubożanie komórek myszy przez magnetyczną separację komórek (sekcja 3).
3. Zubożenie komórek myszy przez technologię magnetycznej separacji komórek
UWAGA: Objętości do oznaczania magnetycznego podane poniżej dotyczą do 2 x 10⁶ komórek nowotworowych lub 107 komórek ogółem, w tym czerwonych krwinek. W zależności od wielkości guza zostanie uzyskana mniejsza lub wyższa liczba komórek. W przypadku mniejszej liczby komórek należy użyć tych samych woluminów, jak wskazano. W przypadku używania większej liczby komórek należy odpowiednio zwiększyć wszystkie objętości odczynników i objętości całkowite (np. w przypadku komórek nowotworowych 4 x 10⁶ lub 2 x 10⁷ komórek ogółem należy użyć podwójnej objętości wszystkich wskazanych objętości odczynników i objętości całkowitych).
- Oznaczyć numer komórki podwielokrotności z zawiesiny komórek w kroku 2.21 za pomocą mikroskopu i odpowiedniej komory do liczenia.
UWAGA: W tym momencie zawiesina komórkowa składa się z niejednorodnej mieszaniny ludzkich komórek nowotworowych, a także mysich komórek zrębu i krwi, w tym czerwonych krwinek. Skład komórek silnie zależy od typu guza i regionu do przeszczepu. - Podczas wykonywania analizy cytometrii przepływowej po usunięciu komórek myszy należy pobrać 100 μl podwielokrotności do odpowiednich probówek do niebarwionego i dwóch jednokolorowych barwień kontrolnych do analizy cytometrii przepływowej. Przechowywać je w lodówce w temperaturze 2 - 8 °C do czasu dalszych etapów barwienia (punkt 4).
- Odwirować zawiesinę komórek w sile 300 x g przez 10 min. Odrzucić supernatant.
- Zawiesić osad komórkowy w 80 μl buforu na 2 x 10⁶ komórek nowotworowych lub 107 komórek ogółem Dodaj 20 μl odczynnika do znakowania magnetycznego dla komórek myszy.
- Dobrze wymieszać i inkubować przez 15 minut w lodówce (2 - 8 °C). Podczas etykietowania magnetycznego należy przygotować kolumny o dużej skali (kolumny LS) do separacji magnetycznej, umieszczając je w polu magnetycznym odpowiedniego magnesu (patrz Tabela Materiałów i Wyposażenia) zgodnie z protokołem producenta. Przepłukać kolumnę 3 ml buforu.
- Dostosuj objętość próbki do 500 μl za pomocą buforu dla maksymalnie 2 x 10⁶ komórek nowotworowych lub do 107 komórek ogółem. (Do 1 x 10⁷ komórek nowotworowych lub do 5 x 10⁷ całkowitych komórek może być przetwarzanych na jednej kolumnie LS. Podczas pracy z większą liczbą komórek podziel próbkę na wiele kolumn LS).
- Wykonując analizę cytometryczną przepływową, analizę molekularną lub porównując frakcje w kulturach, należy pobrać 50 μl podwielokrotności jako próbkę niesortowaną. Przechowywać w lodówce w temperaturze 2 - 8 °C do czasu dalszej obróbki.
- Nałożyć 500 μl zawiesiny komórek na wcześniej przygotowaną kolumnę. Zebrać przepływowe zawierające nieznakowane komórki docelowe, reprezentujące wzbogacone ludzkie komórki nowotworowe.
UWAGA: Podczas pracy z większą liczbą komórek do jednej kolumny można nałożyć do 2,5 ml zawiesiny komórek, która została przygotowana zgodnie z krokiem 3.5. - Przemyć kolumnę 2 x 1 ml buforu. Zbierz komórki, które przechodzą i połącz je z przepływem z kroku 3.6. Wykonać etapy mycia, dodając 1 ml podwielokrotności buforu, gdy tylko zbiornik kolumny będzie pusty.
UWAGA: Przepływ zawiera oczyszczone ludzkie komórki nowotworowe. - Aby również zebrać komórki myszy zatrzymane w kolumnie, wyjmij kolumnę z separatora i umieść ją na odpowiedniej probówce. Odpipetować 3 ml buforu na kolumnę i natychmiast użyć tłoka, aby wypłukać komórki myszy, mocno wciskając go do kolumny.
- Odwirować frakcje i próbki kontrolne w temperaturze 300 x g przez 10 minut. Całkowicie odessać supernatant i ponownie zawiesić komórki w buforze, pożywce hodowlanej lub granulce do zamrażania w ciekłym azocie, w zależności od pożądanego dalszego zastosowania.
4. Dalsze analizy
- Barwienie do analizy metodą cytometrii przepływowej
UWAGA: Przed przeprowadzeniem dalszych analiz część komórek uzyskanych w wyniku procedury zubożenia komórek myszy może być analizowana (np. ocena czystości i wydajności) w cytometrii przepływowej.- W przypadku analiz cytometrycznych przepływowych należy odwirować co najmniej 10 % frakcji ujemnej i dodatniej otrzymanej z procedury magnetycznego rozdzielania komórek (sekcja 3), jak również próbki kontrolne z etapów 3.2 i 3.5 przy 300 x g przez 10 minut.
- Odrzucić supernatant. Zawiesić osad komórkowy próbek kontrolnych barwienia z etapu 3.2 w 90 μl buforu. Zawiesić frakcje otrzymane w procesie magnetycznego rozdzielania komórek w 80 μl buforu.
- Dodać 10 μl mysiego odczynnika blokującego FcR do wszystkich próbek. Dobrze wymieszać i inkubować przez 5 minut w temperaturze 2 - 8 °C w lodówce.
- Dodać 10 μl anty-ludzkiego EpCAM-PE (równa się rozcieńczeniu przeciwciała 1:10) i 25 μl koktajlu anty-mysiego APC (równa się rozcieńczeniu przeciwciała 1:4) do próbek z sekcji 3. Dodać 10 μl anty-ludzkiego EpCAM-PE do jednej próbki kontrolnej koloru (równa się rozcieńczeniu przeciwciała 1:10) i 10 μl anty-ludzkiego EpCAM-APC do drugiej (równa się rozcieńczeniu przeciwciała 1:10). Wymieszać wszystkie próbki i inkubować przez 10 minut w temperaturze 2 - 8 °C w lodówce.
UWAGA: EpCAM nie nadaje się jako marker komórek nowotworowych żadnego typu nowotworu. Dla nowotworów wykorzystanych w tym badaniu znana była ekspresja EpCAM. - Aby przepłukać próbki, dodać po 1 ml buforu i wirować w masie 300 x g przez 5 minut.
- Odrzucić supernatant i ponownie zawiesić osad komórkowy do stężenia do analizy metodą cytometrii przepływowej. Aby wykluczyć martwe komórki, dodać jodek propidyny (1 μg/ml).
- Przeprowadzić analizę cytometrii przepływowej przy użyciu odpowiedniego cytometru przepływowego zgodnie z protokołami producenta.
- Hodowla ludzkich komórek nowotworowych
UWAGA: Oprócz cytometrii przepływowej, komórki uzyskane w procesie separacji mogą być hodowane i wykorzystywane do dalszych testów in vitro.- Zawiesić posortowaną frakcję z sekcji 3 w pożywce do stężenia 5 x 10⁵ komórek/ml.
UWAGA: W zależności od rodzaju powłoki guza, odpowiednia gęstość siewu i warunki uprawy mogą się różnić. - Dodać 500 μl zawiesiny komórkowej do studzienek 24-dołkowej płytki pokrytej 0,1% żelatyną.
- Inkubować komórki w inkubatorze do hodowli komórkowych w temperaturze 37 °C i 5%.
UWAGA: Optymalne warunki hodowli zależą od zastosowanego typu nowotworu. Dlatego należy zastosować warunki hodowli odpowiednie dla zastosowanego typu nowotworu.
- Zawiesić posortowaną frakcję z sekcji 3 w pożywce do stężenia 5 x 10⁵ komórek/ml.
- Barwienie immunofluorescencyjne hodowanych komórek
- Przygotuj roztwór blokujący, dodając 10% FCS i 0,1% Triton X-100 do 1x PBS.
- Odrzuć pożywkę hodowlaną. Dodaj 500 μl 1x PBS na studzienkę, aby przepłukać komórki. Inkubować przez 2 minuty w temperaturze pokojowej (RT), a następnie całkowicie odrzucić 1x PBS.
- Napraw komórki, dodając 300 μl 4% roztworu PFA. Inkubować w temperaturze pokojowej przez 15 minut.
- Wyrzuć roztwór PFA. Umyj stałe komórki 3 razy, jak wskazano w kroku 4.3.2.
- Przeprowadź przepuszczalność i blokowanie, dodając 300 μl bloku na studzienkę. Inkubować w temperaturze pokojowej przez 30 minut.
- Odrzuć roztwór blokujący. Umyj komórki, jak wskazano w kroku 4.3.2.
- Dodać do komórek 300 μl przeciwciała pierwszorzędowego rozcieńczonego w roztworze blokującym. Przeciwciało anty-ludzkie EpCAM rozcieńcza się w stosunku 1:40, przeciwciało Vimentin rozcieńcza się w stosunku 1:200. Inkubować przez noc w temperaturze 2 - 8 °C.
Uwaga: Stosowane przeciwciała nie są odpowiednie dla żadnego typu nowotworu, ponieważ EpCAM może nie ulegać ekspresji na komórkach nowotworowych i/lub wimentyna jest również wyrażana przez komórki nowotworowe. Upewnij się, że użyte przeciwciała są odpowiednie dla modelu ksenoprzeszczepu. - Odrzucić roztwór przeciwciał pierwotnych. Umyj komórki 3 razy, jak wskazano w kroku 4.3.2.
- Dodać do komórek 300 μl przeciwciała drugorzędowego rozcieńczonego w roztworze blokującym. Oba przeciwciała, anty-królicze IgG-Alexe594 i anty-mysie IgG-Alexa488 rozcieńcza się w stosunku 1:400. Inkubować przez 1 godzinę w ciemności w temperaturze pokojowej.
- Odrzucić drugorzędowy roztwór przeciwciała. Umyj komórki 2 razy, jak wskazano w kroku 4.3.2.
- Dodać 300 μl roztworu DAPI (0,1 μg/ml) do każdego dołka. Inkubować przez 10 minut w ciemności w temperaturze pokojowej.
- Odrzuć roztwór DAPI. Umyj komórki 3 razy, jak wskazano w kroku 4.3.2.
- Dodaj 500 μl 1x PBS do każdej studzienki. Wykonaj mikroskopię fluorescencyjną przy użyciu odpowiedniego mikroskopu.
- Sekwencjonowanie całego egzomu
- W przypadku sekwencjonowania całego eksomu (WES) należy zamrozić granulki z kroku 3.9 w ciekłym azocie. Przechowywać i pobierać próbki w temperaturze -80 °C.
- Po pobraniu komórek należy przeprowadzić wychwyt egzomu i sekwencjonowanie całego egzomu zgodnie z instrukcjami producenta odpowiedniego zestawu (patrz Tabela materiałów i wyposażenia).
Wyniki
Zaproponowano różne podejścia w celu identyfikacji lub usuwania komórek mysich z ksenoprzeszczepów guzów ludzkich, na przykład kombinację przeciwciał swoistych dla myszy przeciwko CD45 i MHC klasy I. Jednakże za pomocą tych kombinacji wykrywano jedynie subpopulacje komórek mysich, podczas gdy proponowana kombinacja wykryła komórki mysie wykazujące ekspresję CD45 i MHC klasy I, a także pozostałe komórki mysie znalezione w tkankach docelowych transplantacji (Rysunek 1). Dzięki zastosowaniu tej nowej kombinacji przeciwciał do magnetycznego sortowania komórek, możliwe było wyizolowanie ludzkich komórek nowotworowych niezależnie od typu guza (Rysunek 2).
Komórki otrzymane w wyniku procedury usuwania komórek mysich opartej na magnetycznej separacji komórek mogły być hodowane, co prowadziło do uzyskania czystych kultur ludzkich komórek nowotworowych (Rycina 4). Ponadto, z tej samej próbki można było uzyskać i hodować żywe komórki mysie. Oprócz usuwania komórek mysich, podczas usuwania komórek mysich (MCD) usuwane były również zanieczyszczenia (Rycina 3).
Całkowite usunięcie komórek mysich, jak również usunięcie zanieczyszczeń, prowadzi do poprawy wyników dalszych analiz molekularnych. Wykazano to poprzez porównanie wyników sekwencjonowania całego eksomu (WES) przeprowadzonego na fragmentach guzów w masie oraz na próbkach pozbawionych komórek mysich, pochodzących z trzech różnych modeli ksenoprzeszczepów nowotworowych pochodzenia pacjenta (Ryciny 5–9). Nasze dane wskazują, że usunięcie komórek mysich przed przeprowadzeniem WES w próbkach guzów ksenoprzeszczepionych nie tylko znacząco zwiększa całkowitą liczbę odczytów (Rycina 5) ale także znacznie zmniejsza liczbę odczytów pochodzących od gospodarza zmapowanych do ludzkiego genomu referencyjnego (Rysunek 6B)Ponieważ te błędnie zmapowane odczyty mysie często zakłócają wyznaczanie SNP, zaobserwowaliśmy znaczną redukcję fałszywie przewidzianych SNP po zastosowaniu MCD. (Ryciny 7–8)Wreszcie wykazaliśmy, że usuwanie odczytów pochodzenia mysiego in silico za pomocą metod bioinformatycznych nie może w pełni zastąpić procedury eksperymentalnej, ponieważ w przypadku wszystkich odczytów nie było możliwe jednoznaczne przypisanie do gatunku pochodzenia na podstawie sekwencji. Co więcej, procedura in silico nie była w stanie skorygować poprawionej jakości i towarzyszącego jej wyższego pokrycia odczytów w obrębie in vitro próbki zredukowane (Rysunek 9).
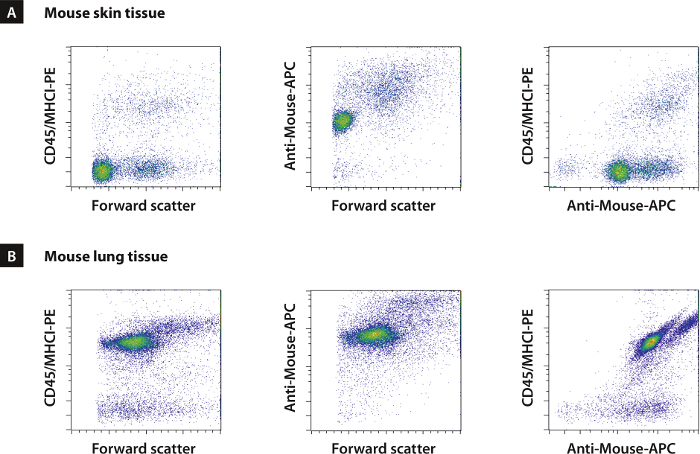
Rycina 1. Opracowanie koktajlu przeciwciał rozpoznających wszystkie komórki mysie w wielu narządach14. Przeprowadzono badania przesiewowe w wielu narządach, w tym w skórze, płucach, mózgu, nerkach i mięśniach szkieletowych. Narządy te stanowią główne tkanki docelowe dla ksenotransplantacji. Kombinacje, takie jak te rozpoznające mysie epitopy CD45 i MHC klasy I, były już stosowane w celu eliminacji komórek mysich po ksenotransplantacji. Jednakże kombinacje markerów te rozpoznawały jedynie podzbiór komórek mysich we wszystkich analizowanych tkankach. W poprzednich badaniach przesiewowych zidentyfikowano kombinację pięciu przeciwciał, która umożliwia kompleksowe wykrywanie wszystkich komórek pochodzenia mysiego. Panel ten obejmuje erytrocyty i jest niezależny od tkanki pochodzenia (A, B oraz dane niepokazane). Zmodyfikowano na podstawie14. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
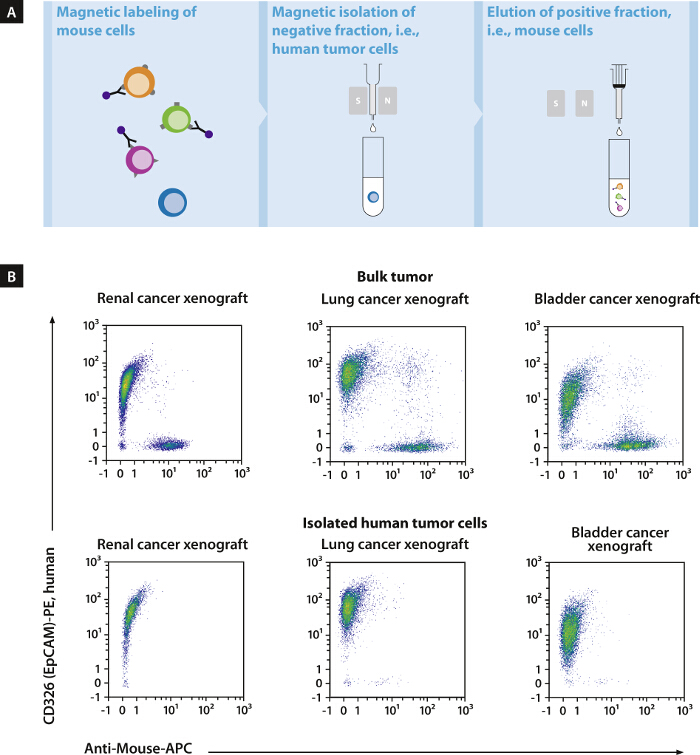
Rycina 2. Niezawodna i szybka eliminacja komórek mysich15. Konjugaty kombinacji przeciwciał z superparamagnetycznymi nanocząsteczkami zostały wykorzystane do opracowania zoptymalizowanego protokołu eliminacji komórek mysich z ludzkich ksenoprzeszczepów nowotworowych za pomocą magnetycznego sortowania komórek (magnetycznej separacji komórek) (A). Ten nowy protokół pozwolił na usunięcie > 99% zanieczyszczających komórek mysich w czasie krótszym niż 20 min, niezależnie od typu nowotworu. Frakcje komórek uzyskane w procedurze magnetycznej separacji komórek zostały znakowane koktajlem przeciwciał pan-mouse oraz przeciwciałem specyficznym dla człowieka przeciwko CD326 (EpCAM) (B). Zmodyfikowano na podstawie15. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
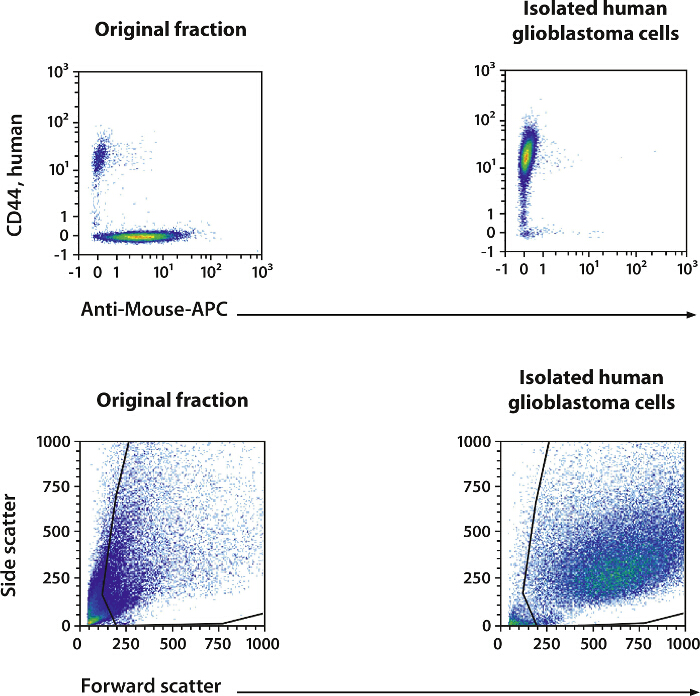
Rysunek 3. Izolacja ludzkich komórek glejaka. Do izolacji ludzkich komórek glejaka z mózgu dorosłej myszy zastosowano zestaw Mouse Cell Depletion Kit. Podczas dysocjacji tkanki nerwowej zazwyczaj powstaje duża ilość debrisu. MCDK skutecznie usuwa martwe komórki i debris, co obrazuje wykres zależności wielkości komórek od ich ziarnistości. Dzięki zastosowaniu tego koktajlu koniugatów możliwe było wyeliminowanie > 99% zanieczyszczających komórek mysich oraz > 60% debrisu. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
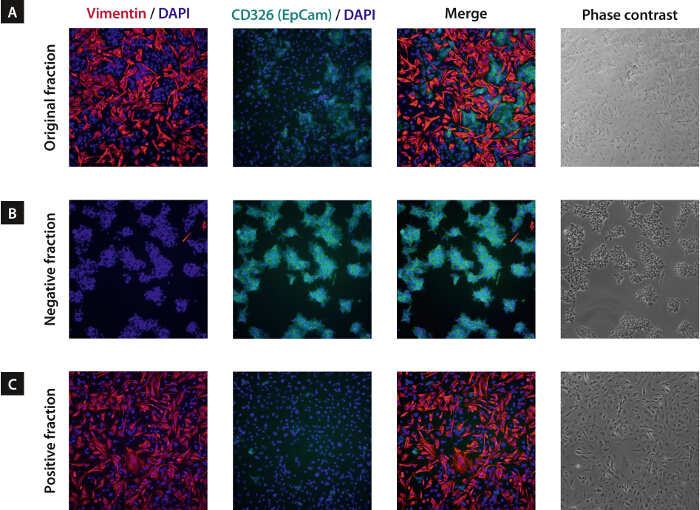
Rycina 4. Usuwanie komórek mysich ułatwia dalsze hodowle ludzkich komórek nowotworowych14. Fibroblasty mysie często utrudniają hodowlę ludzkich komórek nowotworowych po dysocjacji przeszczepionych tkanek lub prowadzą do powstania kultur heterogenicznych. Fibroblasty przywierają i namnażają się efektywniej, przez co przerastają komórki docelowe. Zaburza to analizy hodowli komórkowych in vitro (np. testy cytotoksyczności leków), ponieważ w większości przypadków matematyczna korekta efektów wynikających z zanieczyszczenia komórkami mysimi jest niemożliwa. Frakcje negatywne (B) i pozytywne (C) po usunięciu komórek mysich hodowano przez trzy dni, utrwalono i zabarwiono na specyficzny dla myszy marker fibroblastów (wimentynę) oraz specyficzny dla ludzi marker nowotworowy CD326 (EpCAM). Jako kontrolę, hodowano i zabarwiono również oryginalną frakcję zawierającą nieposeparowane komórki (A). Nawet po trzech dniach hodowli w frakcji negatywnej (B) obserwowano niemal czystą populację ludzkich komórek nowotworowych, podczas gdy frakcja niesortowana (A) została niemal całkowicie przerostowana przez fibroblasty. Do frakcji pozytywnej (C) utracono jedynie niewielką część komórek docelowych. Zmodyfikowano na podstawie14. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
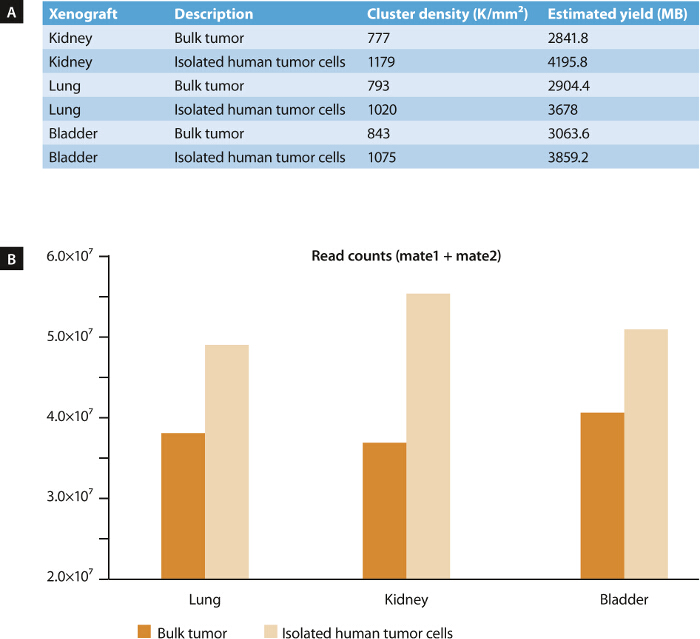
Rysunek 5. Sekwencjonowanie całego egzomu (WES) próbek nowotworowych przed i po usuwaniu komórek mysich (MCD)15. Przeprowadzono WES w trzech różnych modelach ksenoprzeszczepów pochodzących z ludzkiego raka nerki, płuca i pęcherza moczowego, aby ocenić wpływ MCD na jakość danych sekwencjonowania następnej generacji. DNA z całej masy guza oraz z wyizolowanych komórek nowotworowych po usuwaniu komórek mysich wykorzystano do generowania bibliotek sekwencjonowania z wychwytem egzomu przy użyciu zestawu do wychwytu egzomu. Do sekwencjonowania na sekwenatorze pulpitowym zastosowano zestaw odczynników do sekwenatora pulpitowego (150 cykli), aby wygenerować odczyty par końców (paired-end reads) o długości 75 bp. W próbkach po usunięciu komórek mysich zaobserwowano istotny wzrost (p < 0.05) gęstości klastrów (A) oraz średni wzrost liczby odczytów o 33% (B), co wskazuje na poprawę jakości próbek. Odpowiednio, silną redukcję debris i martwych komórek po MCD można było również wykazać w analizie cytometrii przepływowej (patrz Rysunek 3). Zmodyfikowano z15. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
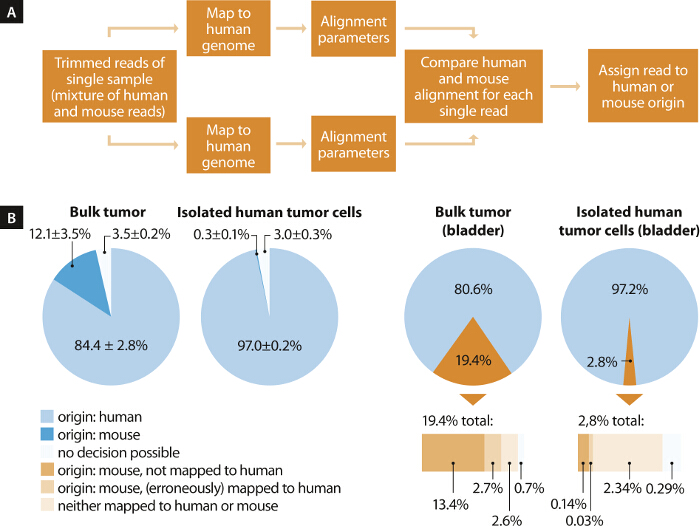
Rysunek 6. Usuwanie komórek mysich (MCD) znacznie redukuje liczbę błędnie zmapowanych odczytów mysich po sekwencjonowaniu całego egzomu (WES)15. Ponieważ oligonukleotydy do przechwytywania stosowane w celowanym wzbogacaniu sekwencji kodujących białka zostały zaprojektowane w oparciu o genom ludzki, oczekiwano wstępnego wzbogacenia fragmentów DNA pochodzenia ludzkiego z mieszaniny komórek mysich i ludzkich. Aby ocenić liczbę oligonukleotydów do przechwytywania, które mogłyby ulec hybrydyzacji krzyżowej z mysim DNA genomowym, przeprowadziliśmy wyszukiwania BLAST dla każdej pojedynczej sondy do szybkiego przechwytywania egzomu przeciwko genomowi mysiemu. Wynikowe parametry dopasowania wykorzystano do określenia możliwej hybrydyzacji krzyżowej. W zależności od progów selekcji (długość dopasowania, liczba niedopasowań, liczba przerw), przewidzieliśmy reaktywność krzyżową 5 - 10% sond do przechwytywania z transkryptami mysimi (dane nie pokazano). Po przycięciu adapterów (trimmomatic v0.3216), zmapowaliśmy odczyty ze wszystkich próbek przeciwko genomom ludzkiemu i mysiemu (bwa v0.7.1217) i określiliśmy ich przypuszczalne pochodzenie na podstawie odpowiednich parametrów dopasowania (powłoka LINUX, wiersz poleceń Perl) (A). Średnio 12% odczytów pochodzących z próbek guza zbiorczego przypisano komórkom mysim. Ilość tę można było zredukować do 0,3% poprzez wcześniejsze usunięcie komórek mysich (B). Ponieważ średnio 15% odczytów pochodzenia mysiego błędnie zmapowało się do genomu ludzkiego, co odpowiada 1,9% całkowitych odczytów w próbkach guza zbiorczego i 0,04% w izolowanych komórkach nowotworowych, można oczekiwać silnego pozytywnego wpływu usuwania komórek mysich na analizy następcze. Rysunek 6B obrazuje szczegółowe przypisanie odczytów dla guza zbiorczego i izolowanych ludzkich komórek nowotworowych pochodzących z ksenoprzeszczepu raka pęcherza moczowego. Zmodyfikowano z15. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
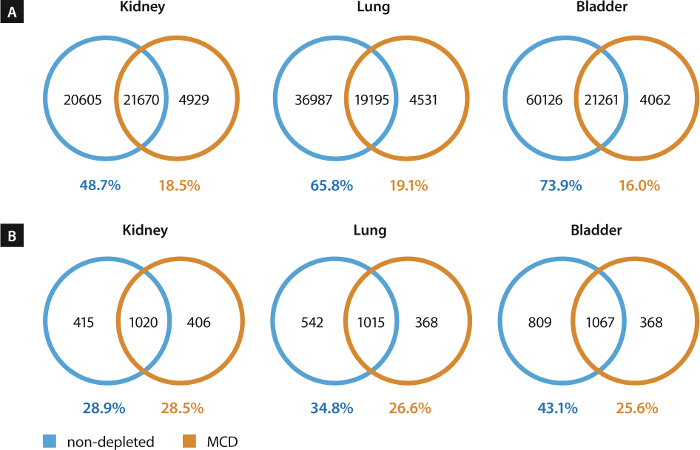
Rycina 7. MCD znacząco redukuje liczbę błędnie przewidzianych SNP15. Aby określić wpływ odczytów mysich zmapowanych do ludzkiego genomu, ustalono liczbę przewidzianych SNP dla próbek ksenoprzeszczepów przed i po MCD. Ponieważ do porównania nie było dostępnych zdrowych tkanek, SNP zdefiniowano jako różnicę między sekwencjonowaną próbką a genomem referencyjnym (hg19). Po usunięciu duplikatów odczytów przeprowadzono identyfikację SNP oraz INDEL18, ograniczając ją do regionów docelowych zestawu do wychwytywania egzomu. 63 ± 10% wszystkich SNP przewidzianych dla próbek guza masowego nie było już wykrywanych po usunięciu komórek mysich, natomiast 18 ± 1% było specyficznych dla wyizolowanych ludzkich komórek nowotworowych (A). Podczas gdy pierwsze były spowodowane głównie przez błędnie zmapowane odczyty mysie, drugie wydawały się być wykrywane dzięki większej liczbie odczytów i w konsekwencji wyższemu pokryciu w próbkach wyizolowanych ludzkich komórek nowotworowych. Efekt ten był widoczny również w przypadku przewidzianych INDEL (B). Zmodyfikowano na podstawie15. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
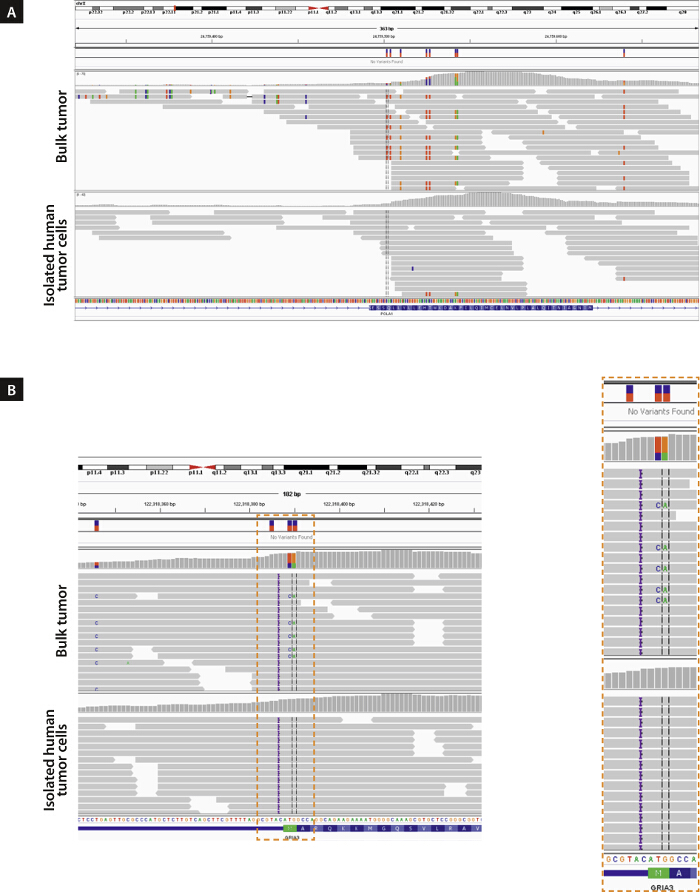
Rycina 8. MCD poprawia predykcję wysokowpływowych SNP15. (A) Przedstawiono wpływ MCD na predykcję SNP w obrębie eksonu kodującego białko genu POLA119. Podczas gdy błędnie zmapowane odczyty mysie spowodowały szereg fałszywie zpredykowanych SNP w masie ksenoprzeszczepu raka nerki, SNP te zniknęły po zastosowaniu MCD. Ponadto MCD poprawiło predykcję wysokowpływowych SNP. Na przykład odczyty mysie zmapowane do ludzkiego genomu referencyjnego w próbce z masy guza doprowadziły do błędnego zpredykowania zniszczenia kodonu startowego genu GRIA3 (B). Zmodyfikowano na podstawie15. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
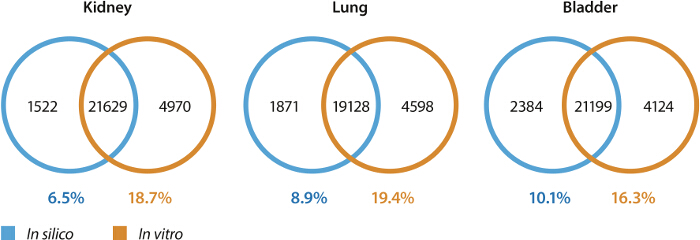
Rycina 9. In silico Usuwanie odczytów pochodzenia mysiego nie może w pełni zastąpić IIn Vitro MCD15. Odczyty, co do których przewidywano, że pochodzą od myszy, zostały usunięte z danych sekwencyjnych drogą obliczeniową, a następnie powtórzono proces wyznaczania SNP. Dzięki temu podejściu liczba SNP przewidywanych dla próbek guza zbiorczego uległa znacznemu zmniejszeniu z 63% do 8,5% całkowitej liczby SNP (porównać z Rysunek 8). Jednakże to in silico podejście nie mogło całkowicie zastąpić in vitro MCD, zwłaszcza jeśli weźmie się pod uwagę poprawioną jakość próbek oraz towarzyszący temu wzrost liczby odczytów i pokrycia. Zmodyfikowano z15. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Opracowaliśmy szybką i łatwą metodę izolowania nietkniętych ludzkich komórek nowotworowych z ksenoprzeszczepowanej tkanki nowotworowej. Procedura ta opiera się na kompleksowym zubożeniu komórek pochodzenia mysiego poprzez połączenie automatycznej dysocjacji tkanek i magnetycznego sortowania komórek. Oprócz zubożenia wszystkich komórek myszy, znacznie zmniejsza się również ilość martwych komórek i szczątków we frakcji komórek docelowych. Podsumowując, metoda ta znacznie usprawnia dalsze analizy molekularne i hodowlę ludzkich komórek nowotworowych.
W przeciwieństwie do metod alternatywnych, nie ma potrzeby posiadania wiedzy na temat markerów specyficznych dla komórek nowotworowych, dostosowywania się do różnych składów komórek myszy ani ustanawiania algorytmów. Przedstawiona metoda jest niezależna od szczepu myszy i typu nowotworu. W związku z tym unika się błędu systematycznego poprzez izolację ludzkich subpopulacji nowotworów na podstawie pojedynczych markerów specyficznych dla człowieka, które mogą różnić się ekspresją, jak pokazano w przypadku EpCAM11. Co więcej, nie ogranicza się do materiału nowotworowego, ale może być stosowany do każdego rodzaju ksenoprzeszczepionej tkanki, ponieważ celem są komórki myszy, a nie określone ludzkie subpopulacje nowotworowe (dane nie pokazane).
Kompleksowe usuwanie komórek myszy jest ułatwione dzięki celowaniu w epitopy powierzchniowe ulegające ekspresji wyłącznie na komórkach pochodzenia mysiego. Oprócz dobrze ugruntowanej metody dysocjacji guza, przedstawionej w tym badaniu, istnieje wiele procedur wykorzystujących różne rodzaje enzymów. Zachowanie epitopów na powierzchni komórek jest warunkiem wstępnym dla tej nowatorskiej metody, ale także dla dokładnych analiz populacji ludzkich komórek nowotworowych. Dlatego tak ważne jest, aby do trawienia tkanki nowotworowej używane były delikatne enzymy. W związku z tym zubożenie komórek myszy może być stosowane tylko w połączeniu z procedurami trawienia enzymatycznego, które ewidentnie nie wpływają na epitopy ukierunkowane podczas procedury zubożenia komórek myszy. W razie wątpliwości może to zostać zweryfikowane tylko przez odpowiedniego producenta.
Ta metoda działa również w przypadku ludzkich krążących komórek nowotworowych (CTC). Jednakże, ponieważ częstość komórek docelowych wynosi zwykle < 0,1% usunięcie komórek myszy dodatkowo wymaga lizy czerwonych krwinek i nie można oczekiwać czystości większej niż 50%. W takim przypadku zubożenie komórek myszy można zastosować jako wstępne wzbogacenie CTC, a następnie wzbogacenie za pomocą markerów dodatnich (dane nie pokazano).
Usunięcie komórek myszy znacznie poprawia hodowlę ludzkich komórek nowotworowych, zapobiegając przerostowi fibroblastów myszy w hodowli. Ponadto analiza ludzkich ksenoprzeszczepów nowotworowych za pomocą sekwencjonowania nowej generacji jest znacznie ulepszona i ustandaryzowana. Ponieważ efekt ten zaobserwowano, mimo że podczas wzbogacania egzomu przeprowadzono ukierunkowaną selekcję specyficzną dla sekwencji ludzkiej, oczekuje się, że wpływ na sekwencjonowanie całego genomu i całego transkryptomu będzie jeszcze bardziej widoczny.
Co więcej, przedstawiona metoda umożliwia dokładne badania molekularne subpopulacji nowotworowych w obrębie ksenotransplantowanych nowotworów ludzkich. Usunięcie komórek myszy z odpowiedniej próbki w pierwszym etapie, a następnie sortowanie ludzkich komórek nowotworowych w dwóch różnych subpopulacjach umożliwia bezpośrednie porównanie molekularne subpopulacji nowotworu będącej przedmiotem zainteresowania z ludzkimi komórkami nowotworowymi20. Różnicowa ekspresja genów między podtypami komórek nowotworowych może być bardziej wiarygodnie oceniona, ponieważ nie ma na nią wpływu hybrydyzacja krzyżowa cząsteczek pochodzących od myszy.
Oświadczenia
David Agorku, Stefan Tomiuk, Stefan Wild, Silvia Rüberg, Lisa Zatrieb, Andreas Bosio i Olaf Hardt są lub byli pracownikami Miltenyi Biotec GmbH, Niemcy. Kerstin Klingner i Julia Schüler są pracownikami firmy Oncotest GmbH z Niemiec.
Podziękowania
Jesteśmy wdzięczni Janinie Kuhl, Nadine Chelius, Petrze Kussmann, Lenie Willnow i Dorothee Lenhard za doskonałą pomoc techniczną.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Zestaw do dysocjacji nowotworów, człowiek | Miltenyi Biotec | 130-095-929 | zawiera enzymy H, R i A; instrukcję rekonstytucji można znaleźć w karcie katalogowej |
| RPMI 1640 | Biowest | L0501-500 | |
| gentleMACS C-Tubes | Miltenyi Biotec | 130-096-334 | |
| GentleMACS Octo Disocjator z grzałkami | Miltenyi Biotec | 130-096-427 | |
| Filtr siatkowy MACS SmartStrainer (70 & mikro; m) | Miltenyi Biotec | 130-098-462 | |
| szalka Petriego 100 mm | Różne | ||
| skalpele | Różne | ||
| zestawy do zmniejszania liczby komórek myszy | Miltenyi Biotec | 130-104-694 | |
| PBS | Różne | zastosowania 1x PBS do buforu PEB | |
| EDTA | Sigma-Aldrich | 3610 | użyj końcowego stężenia 2 mM w buforze PEB |
| BSA | Miltenyi Biotec | 130-091-376 | lub użyć 5 mg/L BSA w buforze PEB |
| MACS kolumny | MACS Miltenyi Biotec | 130-042-401 | |
| Separator QuadroMACS | Miltenyi Biotec | 130-090-976 | |
| MACS MultiStand | Miltenyi Biotec | 130-042-303 | |
| Filtry PreSep (70 µ m) | Miltenyi Biotec | 130-095-823 | |
| MACSmix Tube Rotator | Miltenyi Biotec | 130-090-753 | |
| CD326-FITC, człowiek | Miltenyi Biotec | 130-080-301 | zastosowanie 1:40 do barwienia immunofluorescencyjnego |
| anty-wimentynowe | abcam | ab92547 | |
| kozio-anty-mysie IgG-Alexa488 | Life Technologies | A11029 | |
| kozio-anty-królik IgG-Alexa594 | Life Technologies | A11012 | |
| DAPI | Sigma-Aldrich | D9542 | rozcieńczyć do końcowego stężenia 0,1 i mikro; g/ml w 0,1 M wodorowęglanu sodu |
| Zestaw do barwienia wewnętrznego | Miltenyi Biotec | 130-090-477 | InsideFix z tego zestawu może być używany do etapu utrwalania podczas barwienia immunofluorescencyjnego |
| FBS | Różne | ||
| Triton X-100 | Sigma-Aldrich | 93418 | |
| Odczynnik blokujący FcR, mysz | Miltenyi Biotec | 130-092-575 | |
| Żelatyna | Sigma-Aldrich | G2500-100g | |
| Nextera Zestaw do szybkiego wychwytywania | Illumina | FC-140-1000 | |
| Zestaw odczynników MiSeq v3 | Illumina | MS-102-3001 |
Bibliografia
- Daniel, V. C., et al. A primary xenograft model of small-cell lung cancer reveals irreversible changes in gene expression imposed by culture in vitro. Cancer Res. 69 (8), 3364-3373 (2009).
- Tentler, J. J., et al. Patient-derived tumour xenografts as models for oncology drug development. Nat Rev Clin Oncol. 9 (6), 338-350 (2012).
- DeRose, Y. S., et al. Tumor grafts derived from women with breast cancer authentically reflect tumor pathology, growth, metastasis and disease outcomes. Nat Med. 17 (11), 1514-1520 (2011).
- Siolas, D., Hannon, G. J. Patient-derived tumor xenografts: transforming clinical samples into mouse models. Cancer Res. 73 (17), 5315-5319 (2013).
- Wong, S. Q., et al. Targeted-capture massively-parallel sequencing enables robust detection of clinically informative mutations from formalin-fixed tumours. Sci Rep. 3, 3494(2013).
- Sausville, E. A., Burger, A. M. Contributions of human tumor xenografts to anticancer drug development. Cancer Res. 66 (7), 3351-3354 (2006).
- Rubio-Viqueira, B., Hidalgo, M. Direct in vivo xenograft tumor model for predicting chemotherapeutic drug response in cancer patients. Clin Pharmacol Ther. 85 (2), 217-221 (2009).
- Reubinoff, B. E., Pera, M. F., Fong, C. Y., Trounson, A., Bongso, A. Embryonic stem cell lines from human blastocysts: somatic differentiation in vitro. Nat Biotechnol. 18 (4), 399-404 (2000).
- Merk, J., Rolff, J., Becker, M., Leschber, G., Fichtner, I. Patient-derived xenografts of non-small-cell lung cancer: a pre-clinical model to evaluate adjuvant chemotherapy. Eur J Cardiothorac Surg. 36 (3), 454-459 (2009).
- Baiocchi, M., Biffoni, M., Ricci-Vitiani, L., Pilozzi, E., De Maria, R. New models for cancer research: human cancer stem cell xenografts. Curr Opin Pharmacol. 10 (4), 380-384 (2010).
- Gires, O., Stoecklein, N. H. Dynamic EpCAM expression on circulating and disseminating tumor cells: causes and consequences. Cell Mol Life Sci. 71 (22), 4393-4402 (2014).
- Zhang, C. C., et al. Synergistic effect of the gamma-secretase inhibitor PF-03084014 and docetaxel in breast cancer models. Stem Cells Transl Med. 2 (3), 233-242 (2013).
- Boven, E., et al. Phase II preclinical drug screening in human tumor xenografts: a first European multicenter collaborative study. Cancer Res. 52 (21), 5940-5947 (1992).
- Agorku, D., Hardt, O., Bosio, A. Depletion of mouse cells from human tumor xenografts significantly reduces bias in molecular analysis and improves culture of target cells. Abstract 95. , AACR. (2014).
- Agorku, D., et al. Next-generation sequencing of human tumor xenografts is significantly improved by prior depletion of mouse cells. Abstract 1455. , AACR. (2015).
- Bolger, A. M., Lohse, M., Usadel, B. Trimmomatic: a flexible trimmer for Illumina sequence data. Bioinformatics. 30 (15), 2114-2120 (2014).
- Li, H., Durbin, R. Fast and accurate short read alignment with Burrows-Wheeler transform. Bioinformatics. 25 (14), 1754-1760 (2009).
- Koboldt, D. C., Larson, D. E., Wilson, R. K. Using VarScan 2 for Germline Variant Calling and Somatic Mutation Detection. Curr Protoc Bioinformatics. 44, (2013).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Aloia, A., et al. The sialyl-glycolipid stage-specific embryonic antigen 4 marks a subpopulation of chemotherapy-resistant breast cancer cells with mesenchymal features. Breast Cancer Res. 17 (1), 146(2015).
Przedruki i uprawnienia
