Przedstawiamy wytyczne dotyczące rozwoju syntetycznych 'chemicznych przetworników', które mogą indukować komunikację między naturalnie niepowiązanymi białkami. Ponadto przedstawiono szczegółowe protokoły syntezy i testowania specyficznego "przetwornika", który umożliwia czynnikowi wzrostu aktywację enzymu detoksykacyjnego, a w konsekwencji regulację rozszczepienia proleku przeciwnowotworowego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Naśladowanie funkcji białek sygnałowych: w kierunku terapii sztucznej transdukcji sygnału
W tym artykule
Podsumowanie
Streszczenie
Szlaki transdukcji sygnału, które kontrolują reakcję komórek na różne sygnały środowiskowe, są pośredniczone przez funkcję białek sygnałowych, które oddziałują ze sobą i aktywują się nawzajem z dużą specyficznością. Syntetyczne środki, które naśladują funkcję tych białek, mogą być zatem wykorzystywane do generowania nienaturalnych etapów transdukcji sygnału, a w konsekwencji do zmiany funkcji komórki. Przedstawiamy wytyczne dotyczące projektowania "przetworników chemicznych", które mogą indukować sztuczną komunikację między białkami natywnymi. Ponadto przedstawiamy szczegółowe protokoły syntezy i testowania specyficznego "przetwornika", który może indukować komunikację między dwoma niepowiązanymi białkami: płytkowym czynnikiem wzrostu (PDGF) i s-transferazą glutationu (GST). Przedstawiono również sposób, w jaki ta nienaturalna komunikacja PDGF-GST może być wykorzystana do kontrolowania rozszczepienia proleku przeciwnowotworowego, co wskazuje na potencjał wykorzystania takich systemów w "terapii sztucznej transdukcji sygnału". Prace te mają na celu ułatwienie opracowania dodatkowych "przetworników" tej klasy, które mogą być wykorzystywane do pośredniczenia w wewnątrzkomórkowej komunikacji białko-białko, a w konsekwencji do indukowania sztucznych szlaków sygnalizacji komórkowej.
Wprowadzenie
Szlaki transdukcji sygnału odgrywają istotną rolę w niemal każdym procesie komórkowym i pozwalają komórce na szybką reakcję na sygnały środowiskowe.1 Szlaki te są często inicjowane przez wiązanie cząsteczki sygnałowej z receptorem zewnątrzkomórkowym, co prowadzi do aktywacji enzymów wewnątrzkomórkowych. Amplifikacja i propagacja tego sygnału wewnątrz komórki jest pośredniczona przez działanie białek sygnałowych, które tworzą sieć oddziaływań białko-białko, w której enzymy są aktywowane odwracalnie z wysoką specyficznością. Ponieważ dysregulacja tych sieci często prowadzi do rozwoju nowotworów, pojawiło się duże zainteresowanie ustanowieniem „terapii transdukcji sygnału w nowotworach”,2 w ramach której projektuje się leki mające na celu przerwanie złośliwych szlaków sygnalizacyjnych. Zaproponowaliśmy niedawno alternatywne podejście do terapii transdukcji sygnału, opierające się na zdolności leków do generowania nienaturalnych szlaków transdukcji sygnału.3 W szczególności uważamy, że poprzez projektowanie syntetycznych czynników naśladujących funkcję białek sygnałowych, możliwe byłoby pośrednie modulowanie funkcji komórki. Na przykład takie sztuczne sieci mogą umożliwić biomarkerom białkowym aktywację enzymów rozszczepiających proleki. Alternatywnie, te mimetyki białek sygnałowych mogłyby aktywować nienaturalne szlaki sygnalizacji komórkowej, wywołując efekty terapeutyczne.
Aby wykazać wykonalność tego podejścia, stworzyliśmy niedawno syntetyczny „przetwornik chemiczny”4, który umożliwia czynnikowi wzrostu płytkopochodnemu (PDGF) wywołanie rozszczepienia proleku przeciwnowotworowego poprzez aktywację transferazy S-glutationowej (GST), która nie jest jego naturalnym partnerem wiążącym. Struktura tego „przetwornika” składa się z aptameru DNA przeciwko PDGF, który został zmodyfikowany bivalentnym inhibitorem GST. Zatem ten syntetyczny czynnik należy do rodziny cząsteczek posiadających miejsca wiązania dla różnych białek,5-7 takich jak chemiczne induktory dimeryzacji (CIDs),8-10 a także do grupy białko-wiążących koniugatów oligonukleotydowo-syntetycznych.11-21
W niniejszym opracowaniu opisano ogólne zasady leżące u podstaw projektowania takich systemów oraz przedstawiono szczegółowe protokoły syntezy i testowania funkcji tego „przetwornika” za pomocą konwencjonalnych testów enzymatycznych. Praca ta ma na celu ułatwienie opracowania dodatkowych „przetworników” z tej klasy, które mogą być wykorzystywane do mediowania wewnątrzkomórkowej komunikacji białko-białko, a w konsekwencji do indukowania sztucznych szlaków sygnalizacji komórkowej.
Rycina 1 schematycznie przedstawia zasady działania syntetycznych „przetworników chemicznych”, które mogą pośredniczyć w nienaturalnych komunikacjach białko-białko. Na tej ilustracji „przetwornik chemiczny”, integrujący syntetyczne ligandy dla białek I i II (ligandy I i II), umożliwia białku II wywołanie aktywności katalitycznej białka I, które nie jest jego naturalnym partnerem wiążącym. Wobec braku białka II przetwornik wiąże się z centrum katalitycznym enzymu (białka I) i hamuje jego aktywność (Rycina 1, stan ii). Jednakże związanie „przetwornika” z białkiem II sprzyja oddziaływaniom między ligandem I a powierzchnią białka II (Rycina 1, stan iii), co zmniejsza jego powinowactwo do białka I. W rezultacie zmniejsza się efektywne stężenie „wolnego” przetwornika w roztworze, co prowadzi do dysocjacji kompleksu przetwornik-białko I i do reaktywacji białka I (Rycina 1, stan iv). Podsumowując, etapy te podkreślają trzy fundamentalne zasady leżące u podstaw projektowania wydajnych „przetworników”: (1) „przetwornik” powinien posiadać specyficzny ligand dla każdego z białek docelowych, (2) oddziaływanie między ligandem II a białkiem II powinno być silniejsze niż oddziaływanie między ligandem I a białkiem I oraz (3) ligand I musi być zdolny do oddziaływania z powierzchnią białka II. Ta ostatnia zasada nie wymaga koniecznie, aby sam ligand I wykazywał wysokie powinowactwo i selektywność wobec białka II. Opiera się ona raczej na naszych niedawnych badaniach, które wykazały, że zbliżenie syntetycznej cząsteczki do białka prawdopodobnie sprzyja oddziaływaniom między tą cząsteczką a powierzchnią białka.19,22,23
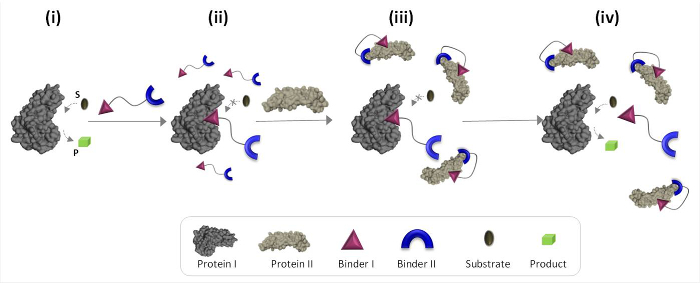
Rysunek 1: Zasady działania „przetworników chemicznych”. Kiedy „przetwornik chemiczny” zostanie dodany do aktywnego białka I (stan i), wiąże się on z jego centrum aktywnym poprzez ligand I i hamuje jego aktywność (stan ii). Jednak w obecności białka II, niezwiązany „przetwornik chemiczny” oddziałuje z białkiem II poprzez ligand II, co sprzyja oddziaływaniom między ligandem I a powierzchnią białka II. To indukowane oddziaływanie ligand I-białko II zmniejsza efektywne stężenie ligandu I, co prowadzi do dysocjacji kompleksu „przetwornik”-białko I i do reaktywacji białka I (stan iv). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Synteza 'Przetwornika Chemicznego'
- Przygotowania wstępne
- Przygotować 2 M bufor octanu trietyloamonu (TEAA), mieszając 278 ml trietyloaminy ze 114 ml kwasu octowego i 400 ml ultraczystej wody. Dostosuj pH do 7 i dodaj wodę do końcowej objętości 1 l. Przechowuj ją w ciemnej butelce.
Uwaga: To rozwiązanie jest stabilne przez lata. - Przygotować 5 mM roztwór kwasu askorbinowego, rozpuszczając 18 mg kwasu askorbinowego w 20 ml ultraczystej wody. Użyj świeżego roztworu; Roztwór jest stabilny przez jeden dzień.
- Przygotować 10 mM roztwór Cu(II)/tris(benzylotriazolylometylo)aminy (TBTA), rozpuszczając 25 mg pięciowodnego siarczanu miedzi(II) w 10 ml ultraczystej wody i 58 mg TBTA w 11 ml dimetylosulfotlenku (DMSO). Wymieszaj oba roztwory. Przechowuj go w temperaturze pokojowej i chroń przed światłem.
- Przygotować 2 M bufor octanu trietyloamonu (TEAA), mieszając 278 ml trietyloaminy ze 114 ml kwasu octowego i 400 ml ultraczystej wody. Dostosuj pH do 7 i dodaj wodę do końcowej objętości 1 l. Przechowuj ją w ciemnej butelce.
- Procedura koniugacji
- Rozpuścić 100 nmol zmodyfikowanego oligonukleotydu (ODN-1) w 80 μl świeżej ultraczystej wody. Dodać 20 μl 2 M TEAA, pH = 7. Dodać 80 μl świeżo przygotowanego roztworu kwasu askorbinowego (5 mM w wodzie).
- Rozpuścić 1,5 μmol (574,5 μg) azydomodyfikowanego kwasu etakrynowego w 180 μl DMSO i dodać go do roztworu. Odgazuj roztwór za pomocą argonu przez 60 sekund i szybko dodaj 40 μl z roztworu Cu(II)/TBTA (10 mM w 55% (v/v) DMSO/woda).
- Ponownie oczyść argonem, szczelnie zamknij i mieszaj przez noc.
- Monitorować postęp reakcji i oczyszczać koniugat za pomocą RP-HPLC (faza ruchoma: A) 5% acetonitrylu, 5% TEAA, 90% ultraczystej wody; B) 65% acetonitryl, 5% TEAA, 30% woda ultraczysta). 24
2. Kontrolowanie aktywności GST przez PDGF
- Przygotowania wstępne
- Przygotować 50 ml buforu do oznaczania, mieszając 33,9 ml soli fizjologicznej buforowanej fosforanami (PBSx1) z 16,1 ml ultraczystej wody, aby uzyskać końcowe stężenie fosforanów 8 mM i dodać 23,8 mg MgCl2 w celu uzyskania końcowego stężenia 5 mM.
- Przygotować roztwór podstawowy GST M1-1 rozpuszczając białko w buforze zawierającym 50 mM Tris pH 7,5, 50 mM NaCl, 1 mM ditiotreitol (DTT) i 5 mM kwas etylenodiaminotetraoctowy (EDTA) do końcowego stężenia 30 μM. Podzielić ten roztwór na małe porcje i przechowywać w temperaturze -80 °C. Rozcieńczyć na świeżo, zgodnie z ppkt 2.1.5.1, w buforze do oznaczania i przechowywać na lodzie.
Uwaga: Roztwór będzie stabilny przez około 5 godzin lub do momentu zmniejszenia aktywności enzymu. - Przygotuj podłoże zgodnie z poniższymi instrukcjami:
- Rozpuścić 10 mg zredukowanego glutationu (GSH) w 325 μl ultraczystej wody do końcowego stężenia 100 mM roztworu podstawowego. Rozcieńczyć 21 μl z tego roztworu podstawowego w 979 μl buforu do oznaczania, aby uzyskać końcowe stężenie 2,1 mM roztworu roboczego.
- Rozpuścić 10 mg 2,4-dinitrochlorobenzenu (CDNB) w 492 μl etanolu do końcowego stężenia 100 mM roztworu podstawowego. Rozcieńczyć 43,2 μl z roztworu podstawowego w 956,8 μl buforu do oznaczania dla końcowego stężenia 4,32 mM roztworu roboczego.
- Na 96-dołkowej płytce umieść każdy substrat w osobnej linii (12 dołków). Umieścić co najmniej 60 μl w każdym dołku, aby umożliwić szybkie i łatwe pobranie roztworu. Przykryj płytę blachą aluminiową, aby zapewnić ochronę przed światłem.
- Przygotować następujące roztwory podstawowe w buforze do oznaczania:
- Rozcieńczyć GST M1-1 przez 50 do końcowego stężenia 0,6 μM dimera.
- Rozcieńczyć 'przetwornik chemiczny' do roztworu podstawowego o stężeniu 30 μM.
- Rozcieńczyć PDGF do końcowego stężenia 40 μM.
- Rozcieńczyć aptamer PDGF do końcowego stężenia 250 μM.
- Zmierzyć aktywność GST w obecności "przetwornika chemicznego" i PDGF.
- Ustaw procedurę eksperymentalną w czytniku płytek do pomiaru kinetycznego.
- Utwórz nowy eksperyment jako "protokół standardowy".
- Naciśnij "procedura", aby otworzyć okno ustawień procedury.
- Z listy rozwijanej w górnej części okna wybierz typ "Tabliczka 384" zgodnie z producentem tablicy.
- Naciśnij "Czytaj" w menu po lewej stronie.
- Jeśli chodzi o metodę wykrywania, wybierz "Absorbancja".
- Jeśli chodzi o typ odczytu, wybierz "Punkt końcowy".
- Zapis 340 nm w oknie długości fali.
- Naciśnij przycisk "Pełna płytka" na dole w prawym górnym rogu i wybierz studnię, która ma być mierzona.
- Naciśnij "ok", aby zamknąć okno "Odczyt".
- Wybierz opcję "uruchom kinetykę" w menu po lewej stronie.
- Czas pracy wynosi 10 minut.
- Wybierz opcję minimalnych interwałów.
- Naciśnij "ok", aby zamknąć okno kinetyki.
- Przeciągnij linię "Odczyt" do pomiaru kinetycznego .
- Naciśnij przycisk "zatwierdź", a następnie przycisk "ok".
- Zapisz eksperyment.
- Naciśnij przycisk "odtwarzaj". Pojawi się okno dialogowe — naciśnij przycisk "ok" tylko wtedy, gdy pomiar powinien zostać rozpoczęty.
- W celu przeprowadzenia doświadczenia z potrójnymi powtórzeniami należy przygotować cztery próbki, z których każda zawiera 3,25 μl "przetwornika chemicznego" i 3,25 μl GST M1-1. Do każdej próbki dodać odpowiednio 0, 1,2, 2,4 lub 4,9 μl PDGF i 123,5, 122,3, 121,1 lub 118,6 μl buforu do oznaczania.
- Inkubować roztwór w temperaturze pokojowej przez 10 minut.
- Do przezroczystej płytki z 384 dołkiem umieścić 40 μl próbki do każdego dołka. Próbki należy umieszczać tylko w dołkach nieparzystych lub tylko w studzienkach parzystych w tej samej linii, aby umożliwić użycie wielopipetora do dodawania substratu.
- Używając 12-kanałowego pipetora wielopunktowego, szybko dodać 10 μl z każdego z substratów, które zostały wstępnie przygotowane na płytce 96-dołkowej (sekcja 2.1.4). Wymieszaj delikatnie i szybko, aby uniknąć bąbelków. Włóż płytkę do czytnika i rozpocznij pomiar kinetyczny. Ponieważ kinetyka GST jest dość szybka, staraj się zminimalizować czas między dodaniem substratu a rozpoczęciem pomiaru kinetycznego.
- Ustaw procedurę eksperymentalną w czytniku płytek do pomiaru kinetycznego.
- Cykle aktywacji/hamowania GST Za pośrednictwem "przetwornika chemicznego".
- W celu przeprowadzenia doświadczenia z potrójnymi próbkami należy przygotować 5 próbek, z których każda zawiera 84,5 μl buforu do oznaczania, 3,25 μl "przetwornika chemicznego" i 3,25 μl GST M1-1. Inkubować w temperaturze pokojowej przez 3 minuty.
- Dodać 3,65 μl buforu do oznaczania do próbki 1 i 3,65 μl PDGF do próbek 2-5. Inkubować w temperaturze pokojowej przez 3 minuty.
- Dodać 3,12 μl buforu do oznaczania próbek 1-2 i 3,12 μl aptameru PDGF do próbek 3-5. Inkubować w temperaturze pokojowej przez 3 minuty.
- Dodać 24,4 μl buforu do oznaczania próbek 1-3 i 24,4 μl PDGF do próbek 4-5. Inkubować w temperaturze pokojowej przez 3 minuty.
- Dodać 7,8 μl buforu do oznaczania próbek 1-4 i 7,8 μl aptameru PDGF do próbki 5. Inkubować w temperaturze pokojowej przez 5 minut.
- Do płytki z 384 otworami przezroczystymi umieścić 40 μl próbki do każdego dołka. Próbki należy wkładać tylko do dołków nieparzystych lub tylko do parzystych w tej samej linii.
- Za pomocą 12-kanałowego pipetatora wielokanałowego szybko dodaj 10 μl z każdego substratu (wstępnie przygotowanego na płytce 96-dołkowej). Wymieszaj delikatnie i szybko, aby uniknąć bąbelków. Włóż płytkę do czytnika i rozpocznij pomiar kinetyczny.
- Obliczyć V0 [mOD/min] w każdych warunkach, odejmując OD zmierzoną przy 340 nm przy t = 0,5 min od OD zmierzonej przy 340 nm przy t = 1,5 min, aby ocenić zdolność do recyklingu aktywacji/inhibicji. 25
- Oceń reakcję "przetwornika chemicznego" w czasie rzeczywistym na zmiany w środowisku.
- Efekt dodawania PDGF w czasie rzeczywistym
- Ustaw procedurę eksperymentalną w czytniku płytek do pomiaru kinetycznego.
- Powtórz kroki 2.2.1.1-2.2.1.10.
- Czas pracy wynosi 3,5 minuty.
- Wybierz opcję minimalnych interwałów.
- Naciśnij "ok", aby zamknąć okno kinetyki.
- Przeciągnij linię "Odczyt" do pomiaru kinetycznego .
- Wybierz opcję Plate Out/In (Wyjście płyty) w menu po lewej stronie.
- Wybierz opcję 'płyta wysunięta (bez okna dialogowego)'.
- Wybierz opcję "Opóźnienie" w menu po lewej stronie i wprowadź 30 sekund.
- Wybierz opcję Plate Out/In (Wyjście płyty) w menu po lewej stronie.
- Wybierz opcję 'płyta w (bez okna dialogowego)'.
- Utwórz drugi pomiar kinetyczny, powtarzając kroki 2.2.1.4 - 2.2.1.14, ale w sekcji 2.2.1.11 ustaw kinetykę na 25 minut zamiast 10 minut.
- Naciśnij przycisk "zatwierdź", a następnie przycisk "ok".
- Zapisz eksperyment.
- Naciśnij przycisk "odtwarzaj". Pojawi się okno dialogowe – przycisk "ok" należy wciskać tylko wtedy, gdy pomiar powinien zostać rozpoczęty.
- Przygotować dwie próbki, mieszając 1 μl GST M1-1 i 1 μl "przetwornika chemicznego" w 38 μl buforu do oznaczania. Umieścić próbki w dwóch dołkach na przezroczystej płytce studzienkowej o średnicy 384, pozostawiając pustą studzienkę między tymi dwoma studzienkami.
- Za pomocą 12-kanałowego pipetatora wielokanałowego szybko dodaj 10 μl z każdego podłoża, delikatnie i szybko wymieszaj, aby uniknąć pęcherzyków, włóż płytkę do czytnika i rozpocznij pomiar kinetyczny.
- Gdy płytka się otworzy (po 3,5 minuty), szybko dodaj 1,125 μl PDGF do jednego z dołków, delikatnie wymieszaj i pozwól płytce zamknąć się do pozostałych pomiarów kinetycznych.
- Efekt dodania aptameru PDGF w czasie rzeczywistym
- Powtórz kroki 2.4.1.1-2.4.1.15.
- Przygotować dwie próbki, mieszając 1 μl GST M1-1, 1 μl "przetwornika chemicznego" i 1,125 μl PDGF w 36,9 μl buforu do oznaczania. Umieścić próbki w dwóch dołkach na przezroczystej płytce studzienkowej o średnicy 384, pozostawiając pustą studzienkę między tymi dwoma studzienkami.
- Za pomocą 12-kanałowego pipetatora wielokanałowego szybko dodaj 10 μl z każdego substratu, delikatnie i szybko wymieszaj, aby uniknąć pęcherzyków, włóż płytkę do czytnika i rozpocznij pomiar kinetyczny.
- Gdy płytka się otworzy (po 1,5 min), szybko dodaj 1,2 μl aptameru PDGF do jednego z dołków, delikatnie wymieszaj i pozwól płytce zamknąć się do pozostałych pomiarów kinetycznych.
- Efekt dodawania PDGF w czasie rzeczywistym
- Zmierz aktywację proleku JS-K za pomocą GST w obecności "przetwornika chemicznego" i PDGF.
- Ustaw procedurę eksperymentalną w czytniku płytek do pomiaru kinetycznego.
- Utwórz nowy eksperyment jako "protokół standardowy".
- Naciśnij "procedura", aby otworzyć okno ustawień procedury.
- Z listy rozwijanej w górnej części okna wybierz typ "384 plate" w zależności od producenta tablicy.
- Naciśnij "Czytaj" w menu po lewej stronie.
- Jeśli chodzi o metodę wykrywania, wybierz "Absorbancję".
- Jeśli chodzi o typ odczytu, wybierz "Punkt końcowy".
- Zapis 305 nm w oknie długości fali.
- Naciśnij przycisk "Pełna płytka" w prawym górnym rogu i wybierz studzienkę, która ma być mierzona.
- Naciśnij "ok", aby zamknąć okno "Odczyt".
- Wybierz opcję "uruchom kinetykę" w menu po lewej stronie.
- Czas pracy wynosi 10 minut.
- Wybierz opcję minimalnych interwałów.
- Naciśnij "ok", aby zamknąć okno kinetyki.
- Przeciągnij linię "Odczyt" do pomiaru kinetycznego .
- Naciśnij przycisk "zatwierdź", a następnie przycisk "ok".
- Zapisz eksperyment.
- Naciśnij przycisk "odtwarzaj". Pojawi się okno dialogowe - naciśnij przycisk "ok" tylko wtedy, gdy pomiar powinien zostać rozpoczęty.
- Do pomiarów produkcji NO należy użyć zestawu kalorymetrycznego azotyny/azotany. Do 96-dołkowej płytki włożyć 50 μl buforu do oznaczania w jednym rzędzie, 70 μl odczynnika Griess I do drugiego rzędu i 70 μl odczynnika Griess II do trzeciego rzędu.
- W celu przeprowadzenia doświadczenia z potrójnymi powtórzeniami należy przygotować cztery próbki, z których każda zawiera 4,8 μl "przetwornika chemicznego". Do próbki 1 dodać 155,2 μl buforu do oznaczania; do próbki 2 dodać 3,2 μl GST-M1-1 i 152 μl buforu do oznaczania; do próbki 3 dodać 9,6 μl PDGF i 145,6 μl buforu do oznaczania; a do próbki 4 dodać 3,2 μl GST-M1-1, 9,6 μl PDGF i 142,4 μl buforu do oznaczania.
- Inkubować roztwór w temperaturze pokojowej przez 10 minut.
- Do przezroczystej płytki studzienkowej o pojemności 384 ml umieścić 50 μl próbki w każdym dołku. Próbki należy umieszczać tylko w dołkach nieparzystych lub tylko w parzystych w tej samej linii, aby umożliwić użycie wielopipetora do dodawania substratu.
- Dodaj 0,54 μl JS-K (5 mM w DMSO) do każdego dołka.
- Za pomocą 12-kanałowego pipetora wielokanałowego szybko dodaj 10 μl z roztworu GSH (wstępnie przygotowanego na płytce 96-dołkowej), delikatnie i szybko wymieszaj, aby uniknąć pęcherzyków. Włóż płytkę do czytnika i rozpocznij pomiar kinetyczny.
- Bezpośrednio po pomiarze kinetycznym, za pomocą 12-kanałowego pipettora wielopunktowego, należy pobrać 50 μl z każdej próbki do rzędu bufora testowego na wcześniej przygotowanej 96-dołkowej płytce i szybko dodać do niej 50 μl odczynnika Griess I i 50 μl odczynnika Griess II. Inkubować, chroniąc przed światłem przez 10 minut w temperaturze pokojowej i zmierzyć absorbancję przy 550 nm.
Uwaga: Objętość buforu testowego i odczynników zależy od protokołu zestawów.
- Ustaw procedurę eksperymentalną w czytniku płytek do pomiaru kinetycznego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Projekt, synteza oraz mechanizm działania „przetwornika chemicznego”, który może indukować sztuczną komunikację między PDGF a GST, przedstawiono na Rysunku 2. Struktura „przetwornika” integruje aptamer DNA do PDGF oraz bis-etakrynamid (bEA), który jest znanym inhibitorem GST (Rysunek 2a).19 Ligandy te umożliwiają „przetwornikowi” wiązanie zarówno PDGF, jak i GST z różnym powinowactwem, a mianowicie ze stałymi dysocjacji (kd) wynosząc...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiliśmy metodę projektowania i testowania "przetwornika chemicznego", który może indukować sztuczną komunikację między dwoma naturalnie niepowiązanymi białkami, GST i PDGF, bez modyfikowania białek natywnych. Nienaturalna komunikacja GST-PDGF może być wykrywana w czasie rzeczywistym za pomocą testów enzymatycznych, które śledzą zmiany w aktywności GST w obecności "przetwornika chemicznego" i zwiększają stężenia PDGF. Oprócz wykrywania aktywacji GST przez PDGF, testy te wykorzystano do śledzenia dezaktywacji GST p...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez Fundację Minerva, Organizację HFSP oraz Grant Europejskiej Rady ds. Badań Naukowych (Starting Grant 338265).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1-chloro-2,4-dinitrobenzen | Sigma-Aldrich | 237329 | |
| Kwas octowy | Bio Lab | 01070521 | |
| Acetnitryl | J.T.Baker | 9017-03 | |
| Kwas askorbinowy | Sigma-Aldrich | A4544 | |
| Siarczan miedzi(II) pentahydrat | Merck-Millipore | 102790 | |
| Dimetylosulfotlenek | Merck-Millipore | 802912 | |
| Sulbecco's Phosphate Buffered Saline | Biological Industries | 02-023-5A | |
| Kwas etakrylowy | Tokyo Chemical Industry Co. Ltd | E0526 | |
| S-transferaza glutationu M1-1 | Izraelskie Centrum Proteomiki Strukturalnej (Instytut Naukowy Weizmanna, Rehovot, Izrael) | ||
| JS-K | Sigma-Aldrich | J4137 | |
| o redukcji L-glutationu | Sigma-Aldrich | G4251 | |
| J.T.Baker | 0162 | ||
| zestaw do oznaczania kolorymetrycznego azotanów/azotynów | Cayman Chemical | 780001 | |
| Oligonukleotydy | Fundacja WM Keck na Uniwersytecie | na zamówienie niestandardowe | |
| PDGF-BB | Izraelskie Centrum Proteomiki Strukturalnej (Instytut Naukowy Weizmanna, Rehovot, Izrael) | ||
| TBTA | Sigma-Aldrich | 678937 | |
| Trietyloamina | Sigma-Aldrich | T0886 | |
| Kolumna odsalająca | GE Healthcare | ilustruje kolumny MicroSpin G-25 | |
| HPLC | Waters | separacji 2695 | |
| Kolumna HPLC | Waters | XBridgeTM OST C18 (2,5 μ M, 4,6 mm i razy; 50 mm) | |
| Kolumna HPLC | Waters | XBridgeTM OST C18 kolumna (2,5 μ M, 10 mm i razy; 50 mm) | |
| Czytnik płytek | BioTek | synergy H4 hybrid |
Bibliografia
- Hunter, T. Signaling—2000 and Beyond. Cell. 100, 113-127 (2000).
- Levitzki, A., Klein, S. Signal transduction therapy of cancer. Mol Aspects Med. 31, 287-329 (2010).
- Peri-Naor, R., Motiei, L., Margulies, D. Artificial signal transduction therapy: a futuristic approach to disease treatment. Future Med. Chem. 7, 2091-2093 (2015).
- Peri-Naor, R., Ilani, T., Motiei, L., Margulies, D. Protein-Protein Communication and Enzyme Activation Mediated by a Synthetic Chemical Transducer. J. Am. Chem. Soc. 137, 9507-9510 (2015).
- Corson, T. W., Aberle, N., Crews, C. M. Design and Applications of Bifunctional Small Molecules: Why Two Heads Are Better Than One. ACS Chem. Biol. 3, 677-692 (2008).
- Rutkowska, A., Schultz, C. Protein Tango: The Toolbox to Capture Interacting Partners. Angew. Chem. Int. Ed. 51, 8166-8176 (2012).
- Meyer, C., Köhn, M. A Molecular Tête-à-Tête Arranged by a Designed Adaptor Protein. Angew. Chem. Int. Ed. 51, 8160-8162 (2012).
- Klemm, J. D., Schreiber, S. L., Crabtree, G. R. Dimerization as a Regulatory Mechanism in Signal Transduction. Annu. Rev. Immunol. 16, 569-592 (1998).
- DeRose, R., Miyamoto, T., Inoue, T. Manipulating signaling at will: chemically-inducible dimerization (CID) techniques resolve problems in cell biology. Pflugers Arch. 465, 409-417 (2013).
- Gestwicki, J. E., Marinec, P. S. Chemical control over protein-protein interactions: beyond inhibitors. Comb. Chem. High Throughput. Screen. 10, 667-675 (2007).
- Battle, C., Chu, X., Jayawickramarajah, J. Oligonucleotide-based systems for input-controlled and non-covalently regulated protein binding. Supramol. Chem. 25, 848-862 (2013).
- Diezmann, F., Seitz, O. DNA-guided display of proteins and protein ligands for the interrogation of biology. Chem. Soc. Rev. 40, 5789-5801 (2011).
- Röglin, L., Ahmadian, M. R., Seitz, O. DNA-Controlled Reversible Switching of Peptide Conformation and Bioactivity. Angew. Chem. Int. Ed. 46, 2704-2707 (2007).
- Röglin, L., Altenbrunn, F., Seitz, O. DNA and RNA-Controlled Switching of Protein Kinase Activity. ChemBioChem. 10, 758-765 (2009).
- Harris, D. C., Chu, X., Jayawickramarajah, J. DNA-Small Molecule Chimera with Responsive Protein-Binding Ability. J. Am. Chem. Soc. 130, 14950-14951 (2008).
- Harris, D. C., Saks, B. R., Jayawickramarajah, J. Protein-Binding Molecular Switches via Host-Guest Stabilized DNA Hairpins. J. Am. Chem. Soc. 133, 7676-7679 (2011).
- Kim, Y., Cao, Z., Tan, W. Molecular assembly for high-performance bivalent nucleic acid inhibitor. Proc. Nat. Acad. Sci. U.S.A. 105, 5664-5669 (2008).
- Han, D., et al. A Logical Molecular Circuit for Programmable and Autonomous Regulation of Protein Activity Using DNA Aptamer-Protein Interactions. J. Am. Chem. Soc. 134, 20797-20804 (2012).
- Motiei, L., Pode, Z., Koganitsky, A., Margulies, D. Targeted Protein Surface Sensors as a Tool for Analyzing Small Populations of Proteins in Biological Mixtures. Angew. Chem. Int. Ed. 53, 9289-9293 (2014).
- Ranallo, S., Rossetti, M., Plaxco, K. W., Vallée-Bélisle, A., Ricci, F. A Modular, DNA-Based Beacon for Single-Step Fluorescence Detection of Antibodies and Other Proteins. Angew. Chem. Int. Ed. 54, 13214-13218 (2015).
- Franzini, R. M., et al. Identification of Structure-Activity Relationships from Screening a Structurally Compact DNA-Encoded Chemical Library. Angew. Chem. Int. Ed. 54, 3927-3931 (2015).
- Unger-Angel, L., et al. Protein recognition by bivalent, 'turn-on' fluorescent molecular probes. Chem. Sci. 6, 5419-5425 (2015).
- Nissinkorn, Y., et al. Sensing Protein Surfaces with Targeted Fluorescent Receptors. Chem. Eur. J. 21, 15981-15987 (2015).
- Huber, C. G., Oefner, P. J., Bonn, G. K. High-Resolution Liquid Chromatography of Oligonucleotides on Nonporous Alkylated Styrene-Divinylbenzene Copolymers. Anal. Biochem. 212, 351-358 (1993).
- Lyon, R. P., Hill, J. J., Atkins, W. M. Novel class of bivalent glutathione S-transferase inhibitors. Biochemistry. 42, 10418-10428 (2003).
- Battle, C., Chu, X., Jayawickramarajah, J. Oligonucleotide-based systems for input-controlled and non-covalently regulated protein binding. Supramol. Chem. , 1-16 (2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
