Starzenie się komórek jest kluczowym czynnikiem w rozwoju przewlekłych patologii związanych z wiekiem. Identyfikacja środków terapeutycznych ukierunkowanych na komórki starcze daje nadzieję na wydłużenie procesu starzenia się w dobrym zdrowiu. W tym miejscu przedstawiamy nowatorski test do badań przesiewowych w celu identyfikacji senoterapeutyków na podstawie pomiaru aktywności związanej ze starzeniem β-galaktozydazy w pojedynczych komórkach.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Test przesiewowy oparty na SA-β-galaktozydazie do identyfikacji leków senoterapeutycznych
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Starzenie się komórek jest jedną z cech charakterystycznych starzenia się, o której wiadomo, że negatywnie wpływa na długość życia w zdrowiu. Leki zdolne do zabijania komórek starczych w hodowli komórkowej, zwane senolitykami, mogą zmniejszyć obciążenie komórek starczych in vivo i wydłużyć okres zdrowia. Do tej pory zidentyfikowano wiele klas senolityków, w tym inhibitory HSP90, inhibitory z rodziny Bcl-2, pipelonguminę, peptyd hamujący FOXO4 oraz skojarzenie dazatynibu z kwercetyną. Wykrywanie SA-β-Gal przy podwyższonym pH lizosomalnym jest jednym z najlepiej scharakteryzowanych markerów wykrywania komórek starczych. Pomiary aktywności β-galaktozydazy (SA-β-Gal) związanej ze starzeniem się w żywych komórkach przy użyciu fluorescencyjnego substratu C12FDG w połączeniu z określeniem całkowitej liczby komórek przy użyciu barwnika Hoechsta interkalującego DNA otwierają możliwość badań przesiewowych w kierunku leków senoterapeutycznych, które albo zmniejszają ogólną aktywność SA-β-Gal poprzez zabijanie komórek starczych (senolityków), albo przez tłumienie SA-β-Gal i innych fenotypów komórek starczych (senomorfiki). Wykorzystanie platformy do akwizycji i analizy obrazów fluorescencyjnych o wysokiej zawartości pozwala na szybkie i wysokoprzepustowe badania przesiewowe bibliotek leków pod kątem wpływu na SA-β-Gal, morfologię komórek i liczbę komórek.
Wprowadzenie
Starzenie się komórek zostało po raz pierwszy opisane przez Leonarda Hayflicka i Paula Moorheada, którzy wykazali, że normalne komórki mają ograniczoną zdolność do namnażania się w hodowli1. Starzejące się komórki nie namnażają się pomimo obecności składników odżywczych, czynników wzrostu i braku hamowania kontaktu, ale pozostają aktywne metabolicznie2. Zjawisko to znane jest jako starzenie replikacyjne i przypisuje się je głównie skracaniu telomerów, przynajmniej w komórkach ludzkich3. Dalsze badania wykazały, że komórki mogą być również indukowane do starzenia się w odpowiedzi na inne bodźce, takie jak stres onkogenny (starzenie się wywołane onkogenem, OIS), uszkodzenie DNA, leki cytotoksyczne lub napromienianie (starzenie się wywołane stresem, SIS)4,5,6. W odpowiedzi na uszkodzenie DNA, w tym erozję telomerów, komórki albo starzeją się, rozpoczynają niekontrolowany wzrost komórek, albo ulegają apoptozie, jeśli uszkodzenia nie można naprawić. W tym przypadku starzenie się komórek wydaje się być korzystne, ponieważ działa w sposób hamujący nowotwór2. Natomiast starzenie się nasila się wraz z wiekiem z powodu nagromadzenia uszkodzeń komórek, w tym uszkodzenia DNA. Ponieważ komórki starcze mogą wydzielać cytokiny, metaloproteinazy i czynniki wzrostu, zwane fenotypem wydzielniczym związanym ze starzeniem się (SASP), ten zależny od wieku wzrost starzenia się komórek i SASP przyczynia się do zmniejszenia homeostazy tkanek, a następnie starzenia się. Wiadomo również, że ten zależny od wieku wzrost obciążenia związanego ze starzeniem się wywołuje choroby metaboliczne, wrażliwość na stres, zespoły progerii i zaburzenia gojenia7,8 i jest częściowo odpowiedzialny za liczne choroby związane z wiekiem, takie jak miażdżyca, choroba zwyrodnieniowa stawów, zwyrodnienie mięśni, powstawanie wrzodów i choroba Alzheimera9,10,11,12,13. Eliminacja komórek starczych może pomóc w zapobieganiu lub opóźnianiu dysfunkcji tkanek i przedłużeniu okresu zdrowia14. Zostało to wykazane w transgenicznych modelach myszy14,15,16, a także przy użyciu leków senolitycznych i kombinacji leków, które zostały odkryte zarówno dzięki badaniom przesiewowym leków, jak i analizie bioinformatycznej szlaków indukowanych specyficznie w komórkach starczych17,18,19,20,21,22. Zidentyfikowanie bardziej optymalnych leków senoterapeutycznych, zdolnych do skuteczniejszego zmniejszania obciążenia komórek starczych, jest ważnym kolejnym krokiem w rozwoju podejść terapeutycznych dla zdrowego starzenia się.
Starzejące się komórki wykazują charakterystyczne cechy fenotypowe i molekularne, zarówno w hodowli, jak i in vivo. Te markery starzenia mogą być przyczyną lub wynikiem indukcji starzenia się lub produktem ubocznym zmian molekularnych w tych komórkach. Jednak żaden pojedynczy marker nie znajduje się specyficznie w komórkach starczych. Obecnie wykrywanie β-galaktozydazy związanej ze starzeniem (SA-β-Gal) jest jedną z najlepiej scharakteryzowanych i uznanych metod pomiaru starzenia się in vitro i in vivo opartych na pojedynczych komórkach. SA-β-Gal jest hydrolazą lizosomalną o optymalnej aktywności enzymatycznej przy pH 4. Pomiar jego aktywności przy pH 6 jest możliwy, ponieważ komórki starcze wykazują zwiększoną aktywność lizosomalną23,24. W przypadku żywych komórek podwyższone pH lizosomalne uzyskuje się przez alkalizację lizosomalną wakuolarnym inhibitorem H+-ATPazy Bafilomycyną A1 lub inhibitorem kwasowości endosomalnej chlorochiną25,26. 5-dodekanylaminofluoresceina Di-β-D-galaktopyranozyd (C12FDG) jest stosowany jako substrat w żywych komórkach, ponieważ zatrzymuje rozszczepiony produkt w komórkach dzięki swojemu 12-węglowemu ugrupowaniu lipofilowe25. Co ważne, sama aktywność SA-β-Gal nie jest bezpośrednio związana z żadnym szlakiem zidentyfikowanym w komórkach starczych i nie jest niezbędna do wywołania starzenia. Dzięki temu testowi komórki starcze można zidentyfikować nawet w heterogenicznych populacjach komórek i starzejących się tkankach, takich jak biopsje skóry od osób starszych. Został również wykorzystany do pokazania korelacji między starzeniem się komórek a starzeniem się23, ponieważ jest to wiarygodny marker do wykrywania komórek starczych w kilku organizmach i warunkach27,28,29,30. W tym miejscu opisano wysokoprzepustowy test przesiewowy SA-β-Gal oparty na subsecie fluorescencyjnym C12FDG przy użyciu pierwotnych mysich fibroblastów embrionalnych (MEF) z silnym starzeniem się komórek wywołanym stresem oksydacyjnym oraz omówiono jego zalety i wady. Chociaż test ten można przeprowadzić na różnych typach komórek, zastosowanie MEF z niedoborem Ercc1 i upośledzoną naprawą DNA pozwala na szybszą indukcję starzenia się w warunkach stresu oksydacyjnego. U myszy zmniejszona ekspresja endonukleazy naprawy DNA ERCC1-XPF powoduje upośledzoną naprawę DNA, przyspieszoną akumulację endogennych uszkodzeń DNA, podwyższony ROS, dysfunkcję mitochondriów, zwiększone obciążenie komórkami starczymi, utratę funkcji komórek macierzystych i przedwczesne starzenie się, podobnie jak w naturalnym starzeniu się31,32. Podobnie, MEF-y z niedoborem Ercc1 starzeją się szybciej w culture17. Ważną cechą testu MEF w procesie starzenia się jest to, że każda studzienka zawiera mieszaninę komórek starczych i niestarzejących się, co pozwala na wyraźne wykazanie efektów specyficznych dla komórek starczych. Jednak chociaż uważamy, że zastosowanie stresu oksydacyjnego w komórkach pierwotnych w celu wywołania starzenia się jest bardziej fizjologiczne, test ten może być również stosowany w przypadku linii komórkowych, w których starzenie się jest indukowane przez czynniki uszkadzające DNA, takie jak etopozyd lub napromienianie.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wykorzystanie zwierząt zostało zatwierdzone przez Institutional Animal Care and Use Committee w Scripps Florida.
1. Generowanie starzejących się embrionalnych fibroblastów mysich (MEF) – 12-15 dni
- Izolować MEF typu dzikiego oraz Ercc1-/- z płodów samic myszy w 13. dniu embrionalnym (E13) zgodnie z wcześniejszym opisem33.
UWAGA: Wszystkie kolejne kroki są wykonywane w komorze z laminarnym przepływem powietrza w warunkach aseptycznych, przy użyciu sterylnych instrumentów. - Odciąć głowę zarodka powyżej oczu.
- Usunąć tkanki czerwone (serce i wątrobę) i wykorzystać je do genotypowania, jeśli jest to konieczne.
- Przygotować 500 mL mieszaniny (1:1) pożywki Dulbecco’s Modified Eagle’s Medium (DMEM) oraz Ham’s F10 z dodatkiem 10% płodowej surowicy bydlęcej, 1x nieessentialnych aminokwasów, penicyliny i streptomycyny jako pożywki wzrostowej; przed każdym użyciem podgrzać ją do 37 °C przez około 15 min. Pożywkę wzrostową przechowywać w temperaturze 4 °C.
- Inkubować pozostałą część zarodka w 0,25% trypsynie/EDTA przez 10 min.
- Posiekać zarodek na kawałki o wielkości 1 mm i kilkukrotnie pipetować tkankę w górę i w dół.
- Dodać 10 mL pożywki wzrostowej i wysiać tkanki z jednego zarodka na jedną płytkę hodowlaną o średnicy 10 cm (pasaż 0).
- Kultywować komórki w 37 °C, 3% O2, 5% CO2.
UWAGA: W tych warunkach do niepowlekanych płytek hodowlanych przywierają wyłącznie komórki MEF. - Wymieniać pożywkę codziennie w pasażu 0, aby usunąć nieprzytwierdzone fragmenty tkanek i komórek.
UWAGA: W zależności od wielkości zarodka i jakości izolacji, komórki zazwyczaj osiągają konfluencję po 2 do 3 dniach. - Trypsynizacja
- Ostrożnie usunąć pożywkę wzrostową i dwukrotnie przemyć komórki 10 mL 1x PBS.
- Dodać 2 mL 0,025% roztworu trypsyny/EDTA do komórek na płytkach o średnicy 10 cm i inkubować w 37 °C przez 2-3 min.
- Sprawdzić pod mikroskopem, czy komórki odłączyły się od powierzchni.
- Zatrzymać trawienie trypsyną, dodając taką samą ilość pożywki wzrostowej.
- Przenieść komórki do probówki stożkowej i odwirować przy 200 x g przez 3 min, a następnie odrzucić nadsącz.
- Ostrożnie resuspendować komórki w świeżej pożywce wzrostowej, policzyć je i wysiać na nowe płytki z zakładaną gęstością komórek.
- W przypadku subkultywacji komórek niesenescencyjnych, rozdzielić konfluentne komórki w stosunku 1:4 i prowadzić kolejny pasaż w 3% O2, 37 °C, aby uzyskać więcej komórek (pasaż 1).
UWAGA: Na tym etapie komórki można albo utrzymywać w kulturze, albo przechowywać do późniejszego użycia w ciekłym azocie w krio probówkach zawierających około 1 milion komórek każda. Krok ten umożliwia również utworzenie mieszanej partii komórek z różnych zwierząt w celu zmniejszenia zmienności wynikającej z analizy pojedynczego zwierzęcia. - Aby indukowć senescencję komórkową, wysiać rozdzielone konfluentne komórki z pasażu 1 w stosunku 1:4 i inkubować je w 20% O2, 37 °C, 5% CO2 przez 3 dni; warunki te odpowiadają atmosferycznemu stężeniu tlenu.
UWAGA: Kultywowanie komórek i blastocyst w otoczeniu tlenu o stężeniu atmosferycznym może podnieść poziom markerów senescencji komórkowej, szczególnie w przypadku upośledzonej naprawy uszkodzeń DNA34,35,36. - Powtórzyć tę procedurę przez kolejne 2 pasaże.
- W celu monitorowania senescencji komórkowej, mierzyć stopniowy wzrost średnicy i objętości komórek podczas każdego etapu trypsynizacji za pomocą zaawansowanego systemu licznika komórek Coulter.
- Ocenić redukcję proliferacji komórek poprzez wyznaczenie podwojenia populacji (PD) za pomocą równania
PDT = (t2-t1)/3.32 x (log n2 – log n1)
UWAGA: Czas podwojenia populacji był stosowany wyłącznie dla komórek niesenescencyjnych. - Użyć komórek MEF typu dzikiego lub Ercc1-/- z wczesnych pasaży, które były utrzymywane w 3% O2, 37 °C, 5% CO2, jako kontrolnych komórek niesenescencyjnych.
2. Test przesiewowy aktywności β-gal laktozowej związanej z procesem starzenia – 2-3 dni
- Przygotować 10 mM roztwory zapasowe wszystkich testowanych leków w DMSO i przechowywać alikwoty w temperaturze -80 °C. Nie rozmrażać i ponownie zamrażać roztworów zapasowych, ponieważ może to obniżyć aktywność leków.
UWAGA: W tej procedurze inhibitor HSP90, 17DMAG, został zastosowany jako lek senolityczny zdolny do selektywnego zabijania komórek senescentnych17. - W dniu eksperymentu rozmrozić alikwot, rozcieńczyć leki w świeżej pożywce hodowlanej i dodać do komórek znajdujących się w pożywce warunkowanej w stosunku 1:1, aby uzyskać końcowe stężenie w pożywce wzrostowej.
- Do rozcieńczeń seryjnych i kombinacji leków użyć płytek 96-dołkowych do wstępnego rozcieńczania.
UWAGA: W przypadku komórek MEF empirycznie ustalono, że stężenia DMSO nie powinny przekraczać 2%; w każdej serii należy uwzględnić komórki kontrolne traktowane najwyższymi zastosowanymi stężeniami DMSO. - Przed rozpoczęciem leczenia, co najmniej 6 h wcześniej, wysiać 5 x 10³ komórek senescentnych lub 3 x 10³ komórek niesenescentnych na dołek w płytkach 96-dołkowych w 100 µL pożywki wzrostowej i inkubować w warunkach 20% O2, 37 °C, 5% CO2.
UWAGA: Przed leczeniem komórki powinny osiągnąć około 80% konfluencji. - Aby zminimalizować przesłuchy sygnału fluorescencyjnego i tło, należy użyć modyfikowanych płytek 96-dołkowych do hodowli tkankowej z czarnymi ściankami i przezroczystym dnem.
UWAGA: Pomyślnie przetestowano jednak również płytki całkowicie przezroczyste. - Dodać rozcieńczenia leków do komórek MEF i inkubować przez 24 h do 48 h w warunkach 20% O2, 37 °C, 5% CO2.
- Komórki niesenescentne utrzymywać w warunkach 3% O2, 37 °C, 5% CO2.
- W celu przeprowadzenia alkalizacji lizosomów przygotować 10 mM roztwór bafilomycyny A1, podzielić na alikwoty i przechowywać w zamrożeniu w temperaturze -20 °C.
- Do analizy fluorescencyjnej aktywności SA-β-Gal przygotować 2 mM roztwór zapasowy C12FDG, przechowywać w temperaturze -20 °C i chronić przed światłem.
- Roztwór roboczy 100 µM C12FDG w pożywce wzrostowej przygotować w dniu eksperymentu.
UWAGA: Wszystkie etapy (inkubacje) z wykorzystaniem C12FDG powinny być przeprowadzane w ciemności. - Usunąć roztwór leku i przemyć komórki 1 raz przy użyciu 100 µL 1x PBS.
- Zindukować alkalizację lizosomów poprzez wstępne traktowanie komórek 90 µL roztworem 100 nM bafilomycyny A1 przygotowanym w świeżej pożywce do hodowli komórkowej przez 1 godzinę w warunkach 20% O2, 37 °C, 5% CO2.
- Dodać 10 µL roztworu roboczego 100 µM C12FDG do pożywki hodowlanej (stężenie końcowe 10 µM).
- Inkubować komórki przez 2 h.
- Dodać do hodowli 2 µL barwnika Hoechst 33342 o stężeniu 100 µg/mL (stężenie końcowe 2 µg/mL) i inkubować przez 20 min.
- Usunąć pożywkę i dodać 100 µL świeżej pożywki wzrostowej.
3. Ilościowa analiza obrazów fluorescencyjnych o wysokiej zawartości danych
- Należy wykorzystać platformę do wysokoprzepustowego obrazowania i analizy fluorescencyjnej w celu pozyskania obrazów fluorescencyjnych komórek w dwóch kanałach odpowiednich dla detekcji fluorescencji Hoechst oraz C12FDG (np. odpowiednio w ustawieniach wstępnych dla kanałów DAPI i FITC).
UWAGA: Protokoły akwizycji wymagają zdefiniowania kilku zmiennych specyficznych dla danego badania. Celem protokołu akwizycji jest zarejestrowanie odpowiedniej liczby ostrych obrazów fluorescencyjnych dla dostatecznej liczby komórek, aby umożliwić późniejszą analizę ilościową. - Opracuj odpowiedni protokół analizy, wybierając każdy kanał i definiując – poprzez dostosowanie jednego lub więcej kryteriów selektywnych – co kwalifikuje się jako cecha interesująca w każdym kanale.
- W przypadku jądra należy zastosować predefiniowane ustawienia segmentacji (np. segmentację jądrową, segmentację pęcherzykową, segmentację cytoplazmatyczną), które umożliwią identyfikację organelli komórkowych na podstawie wielu kryteriów, w tym morfologii, rozmiaru i intensywności sygnału. Należy dostosować te kryteria tak, aby uwzględnić jądra, wykluczając jednocześnie fragmenty jądrowe i debris, które mogą wykazywać sygnał, ale są na przykład zbyt duże lub zbyt małe, aby być uznane za jądra.
- Sprawdź sygnał w kanale FITC, który stanowi fluorescencję pochodzącą z odszczepionego C12FDG i reprezentuje poziom aktywności β-galaktozydazy związanej z senescencją w komórkach.
UWAGA: Komórki senescentne wykazują wyższą aktywność β-galaktozydazy związanej z senescencją niż komórki niesenescentne; jednakże, C12Fluorescencja FDG nie będzie dyskretna, lecz ciągła, co wymusza ustanowienie progu odróżniającego to, co uznaje się za C12dodatni w badaniu FDG oraz C12komórka FDG-ujemna - Przy użyciu komercyjnie dostępnego oprogramowania analitycznego należy wygenerować liczbę przypadków, w których zdefiniowany obszar wokół jądra (domniemana komórka) nałożył się przynajmniej raz na sygnał C powyżej progu.12FDG.
UWAGA: Oprogramowanie analityczne automatycznie generuje liczbę komórek przy użyciu łączenia celów (target linking). Jest to praktyczna definicja komórki senescencyjnej w tym teście, C12Komórka FDG-dodatnia.
- Wszystkie próbki należy przeanalizować w trzech powtórzeniach, badając od 3 do 5 pól w każdej studience, a następnie odpowiednio obliczyć wartości średnie i odchylenia standardowe.
- Oblicz procent komórek senescencyjnych, korzystając z następującego wzoru:
Komórki senescentne (%) =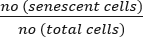 x 100
4. Parametry walidacji metody
- Dla wszystkich próbek obliczono wewnątrz- i międzyseryjne współczynniki zmienności (%CVs), korzystając z następującego wzoru:
CV wewnątrzseriejne (n = 10 powtórzeń wykonanych w jednym eksperymencie) = x 100 (%)
CV międzyseryjne (n = 5 niezależnych eksperymentów) = x 100 (%) - W celach przesiewowych wyznacz wartość Z’, będącą parametrem statystycznym służącym do oceny jakości testu, na podstawie komórek traktowanych 200 nM rapamycyną przez 24 h przy 20% O2, 37 °C, 5% CO2 (kontrolka pozytywna dla leków senoterapeutycznych) oraz nie traktowanych senescencyjnych komórek (kontrolka negatywna).
UWAGA: Wartość Z’ obliczono zgodnie z metodą Zhang i wsp.37. Wartości Z’ pomiędzy 0,5 a 1 wskazują, że test może być wykorzystany do przesiewu leków.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Aktywność SA-β-Gal można wykryć w komórkach, których starzenie zostało indukowane na różne sposoby: od wyczerpania replikacyjnego, stresu genotoksycznego i oksydacyjnego, po aktywację onkogenów23,25,38. W obecnym modelu z wykorzystaniem fibroblastów zarodkowych myszy pozbawionych genu Ercc1, warunki wzrostu w normoksji (20% O2) były wystarczające do indukcji starzenia się komó...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
SA-β-Gal jest dobrze zdefiniowanym biomarkerem starzenia się komórek, pierwotnie odkrytym przez Dimri i in. (1995), wykazującym, że starzejące się ludzkie fibroblasty mają zwiększoną aktywność SA-β-Gal podczas oznaczania przy pH 6,23 w porównaniu z komórkami proliferującymi. Tymczasem testy in vitro i in vivo na obecność SA-β-Gal ustalono dla różnych typów komórek i tkanek 25,39,40. Oparta na flu...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez NIH Grants AG043376 (Projekt 2 i Core A, PDR; Projekt 1 i Core B, LJN) i AG056278 (Projekt 3 i Core A, PDR; oraz Projekt 2, LJN) oraz grant z Glenn Foundation (LJN).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DMEM | Corning | 10-013-CV | medium |
| Ham's F10 | Gibco | 12390-035 | średnia |
| płodowa surowica bydlęca | Tissue Culture Biologics | 101 | surowica |
| 1x aminokwasy endogenne | Corning | 25-025-Cl | aminokwasy |
| bafilomycyna A1 | Sigma | B1793 | inhibitor lizosomalny |
| C12FDG | Setareh Biotech | 7188 | substrat b-Gal |
| Hoechst 33342 | Life Technologies | H1399 | Środek interkalacyjny DNA |
| 17DMAG | Selleck Chemical LLC | 50843 | Inhibitor HSP90 |
| System obrazowania komórek InCell6000 | obrazowania o wysokiej zawartości | Healthcare |
Bibliografia
- Hayflick, L., Moorhead, P. S. The serial cultivation of human diploid cell strains. Experimental Cell Research. 25, 585-621 (1961).
- Campisi, J., di Fagagna, F. D. Cellular senescence: when bad things happen to good cells. Nature Reviews Molecular Cell Biology. 8 (9), 729-740 (2007).
- Harley, C. B., Futcher, A. B., Greider, C. W. Telomeres shorten during ageing of human fibroblasts. Nature. 345 (6274), 458-460 (1990).
- Zhu, J., Woods, D., McMahon, M., Bishop, J. M. Senescence of human fibroblasts induced by oncogenic Raf. Genes and Development. 12 (19), 2997-3007 (1998).
- Dimri, G. P., Itahana, K., Acosta, M., Campisi, J. Regulation of a senescence checkpoint response by the E2F1 transcription factor and p14(ARF) tumor suppressor. Molecular and Cellular Biology. 20 (1), 273-285 (2000).
- Michaloglou, C., et al. BRAFE600-associated senescence-like cell cycle arrest of human naevi. Nature. 436 (7051), 720-724 (2005).
- Niedernhofer, L. J. Tissue-specific accelerated aging in nucleotide excision repair deficiency. Mechanisms of Ageing and Development. 129 (78), 408-415 (2008).
- Gitenay, D., et al. Glucose metabolism and hexosamine pathway regulate oncogene-induced senescence. Cell Death & Disease. 5, e1089(2014).
- Erusalimsky, J. D., Kurz, D. J. Cellular senescence in vivo: its relevance in ageing and cardiovascular disease. Experimental Gerontology. 40 (8-9), 634-642 (2005).
- Kassem, M., Marie, P. J. Senescence-associated intrinsic mechanisms of osteoblast dysfunctions. Aging Cell. 10 (2), 191-197 (2011).
- Campisi, J., Andersen, J. K., Kapahi, P., Melov, S. Cellular senescence: A link between cancer and age-related degenerative disease. Seminars in Cancer Biology. 21 (6), 354-359 (2011).
- Golde, T. E., Miller, V. M. Proteinopathy-induced neuronal senescence: a hypothesis for brain failure in Alzheimer's and other neurodegenerative diseases. Alzheimers Research & Therapy. 1 (2), 5(2009).
- Telgenhoff, D., Shroot, B. Cellular senescence mechanisms in chronic wound healing. Cell Death & Differentiation. 12 (7), 695-698 (2005).
- Baker, D. J., et al. Clearance of p16Ink4a-positive senescent cells delays ageing-associated disorders. Nature. 479 (7372), 232-236 (2011).
- Baker, D. J., et al. Naturally occurring p16-positive cells shorten healthy lifespan. Nature. , (2016).
- Childs, B. G., et al. Senescent intimal foam cells are deleterious at all stages of atherosclerosis. Science. 354 (6311), 472-477 (2016).
- Fuhrmann-Stroissnigg, H., et al. Identification of HSP90 inhibitors as a novel class of senolytics. Nature Communications. 8 (1), 422(2017).
- Zhu, Y., et al. New agents that target senescent cells: the flavone, fisetin, and the BCL-XL inhibitors, A1331852 and A1155463. Aging. 9 (3), Albany NY. 955-963 (2017).
- Zhu, Y., et al. Identification of a Novel Senolytic Agent, Navitoclax, Targeting the Bcl-2 Family of Anti-Apoptotic Factors. Aging Cell. , (2015).
- Zhu, Y., et al. The Achilles' heel of senescent cells: from transcriptome to senolytic drugs. Aging Cell. , (2015).
- Baar, M. P., et al. Targeted Apoptosis of Senescent Cells Restores Tissue Homeostasis in Response to Chemotoxicity and Aging. Cell. 169 (1), 132-147 (2017).
- Jeon, O. H., et al. Local clearance of senescent cells attenuates the development of post-traumatic osteoarthritis and creates a pro-regenerative environment. Nature. , (2017).
- Dimri, G. P., et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proceedings of the National Academy of Sciences USA. 92 (20), 9363-9367 (1995).
- Itahana, K., Campisi, J., Dimri, G. P. Methods to detect biomarkers of cellular senescence: the senescence-associated beta-galactosidase assay. Methods in Molecular Biology. 371, 21-31 (2007).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-[beta]gal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Cahu, J., Sola, B. A sensitive method to quantify senescent cancer cells. Journal of Visualized Experiments. 78 (78), (2013).
- Collado, M., et al. Tumour biology: Senescence in premalignant tumours. Nature. 436 (7051), 642(2005).
- Krishnamurthy, J., et al. Ink4a/Arf expression is a biomarker of aging. The Journal of Clinical Investigation. 114 (9), 1299-1307 (2004).
- Mishima, K., et al. Senescence-associated beta-galactosidase histochemistry for the primate eye. Investigative Ophthalmology, Visual Science. 40 (7), 1590-1593 (1999).
- Melk, A., et al. Expression of p16INK4a and other cell cycle regulator and senescence associated genes in aging human kidney. Kidney International. 65 (2), 510-520 (2004).
- Niedernhofer, L. J., et al. A new progeroid syndrome reveals that genotoxic stress suppresses the somatotroph axis. Nature. 444 (7122), 1038-1043 (2006).
- Wang, J., Clauson, C. L., Robbins, P. D., Niedernhofer, L. J., Wang, Y. The oxidative DNA lesions 8,5′-cyclopurines accumulate with aging in a tissue-specific manner. Aging Cell. 11 (4), 714-716 (2012).
- Jozefczuk, J., Drews, K., Adjaye, J. Preparation of mouse embryonic fibroblast cells suitable for culturing human embryonic and induced pluripotent stem cells. Journal of Visualized Experiments. (64), (2012).
- Jagannathan, L., Cuddapah, S., Costa, M. Oxidative stress under ambient and physiological oxygen tension in tissue culture. Current Pharmacology Reports. 2 (2), 64-72 (2016).
- Meuter, A., et al. Markers of cellular senescence are elevated in murine blastocysts cultured in vitro: molecular consequences of culture in atmospheric oxygen. J Assist Reprod Genet. 31 (10), 1259-1267 (2014).
- Robinson, A. R., et al. Spontaneous DNA damage to the nuclear genome promotes senescence, redox imbalance and aging. Redox Biology. 17, 259-273 (2018).
- Zhang, J. H., Chung, T. D., Oldenburg, K. R. A Simple Statistical Parameter for Use in Evaluation and Validation of High Throughput Screening Assays. Journal Of Biomolecular Screening. 4 (2), 67-73 (1999).
- Zhao, H., Darzynkiewicz, Z. Biomarkers of cell senescence assessed by imaging cytometry. Methods in Molecular Biology. 965, 83-92 (2013).
- Yang, N. -C., Hu, M. -L. A fluorimetric method using fluorescein di-β-d-galactopyranoside for quantifying the senescence-associated β-galactosidase activity in human foreskin fibroblast Hs68 cells. Analytical Biochemistry. 325 (2), 337-343 (2004).
- Zhao, J., et al. Quantitative Analysis of Cellular Senescence in Culture and In Vivo. Current Protocols in Cytometry. 79, (2017).
- Capparelli, C., et al. CDK inhibitors (p16/p19/p21) induce senescence and autophagy in cancer-associated fibroblasts, "fueling" tumor growth via paracrine interactions, without an increase in neo-angiogenesis. Cell Cycle. 11 (19), 3599-3610 (2012).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Pathology. 5, 99-118 (2010).
- Mah, L. J., El-Osta, A., Karagiannis, T. C. GammaH2AX as a molecular marker of aging and disease. Epigenetics. 5 (2), 129-136 (2010).
- Hewitt, G., et al. Telomeres are favoured targets of a persistent DNA damage response in ageing and stress-induced senescence. Nature Communications. 3, 708(2012).
- Narita, M., et al. Rb-mediated heterochromatin formation and silencing of E2F target genes during cellular senescence. Cell. 113 (6), 703-716 (2003).
- Georgakopoulou, E. A., et al. Specific lipofuscin staining as a novel biomarker to detect replicative and stress-induced senescence. A method applicable in cryo-preserved and archival tissues. Aging-Us. 5 (1), 37-50 (2013).
- Severino, J., Allen, R. G., Balin, S., Balin, A., Cristofalo, V. J. Is β-Galactosidase Staining a Marker of Senescence in Vitro and in Vivo? Experimental Cell Research. 257 (1), 162-171 (2000).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Tagi
Analiza aktywności beta-galaktozydazy związanej z starzeniemprzesiewowe badanie leków senolitycznychdetekcja komórek starzejących sięobrazowanie wysokotreściowefluorescencja C12FDGbarwienie Hoechst 33342traktowanie bafilomycyną A1zarodkowe fibroblasty mysieprzesiewowa analiza biblioteki lekówidentyfikacja związków senoterapeutycznych
