Przedstawiamy trójwymiarowy model migracji glejaka glejaka wykorzystującego magnetyczne gliomasfery pochodzące od pacjentów, generowane z nowo zdiagnozowanych i nawracających guzów. Platforma ta umożliwia wizualizację specyficznych dla pacjenta dynamiki migracji oraz ocenę skuteczności terapeutycznej. Test może być multipleksowany po migracji, aby ocenić lokalizację i wzorce ekspresji białek.
Artykuł metodologiczny
Powtarzalny 3D test migracji glejaka z magnetyczną lokalizacją sferoidów za pośrednictwem nanocząstek magnetycznych w warunkach hipoksycznych
W tym artykule
Podsumowanie
Streszczenie
Opisujemy powtarzalny 3D test migracji, mający na celu modelowanie migracyjnego i inwazyjnego potencjału glejaka glejaka pochodzącego od pacjenta z nowo zdiagnozowanych i nawracających guzów w klinicznie istotnych warunkach hipoksycznych. Gliomasphere o jednolitej wielkości są przenoszone na cienką warstwę macierzy zewnątrzkomórkowej i współhodowane z magnetycznymi nanocząstkami tlenku żelaza, co umożliwia ich centralną lokalizację w studniach hodowlanych poprzez umieszczenie na osłonie magnetycznej. Zastosowanie magnetycznych nanocząstek tlenku żelaza do zasiewów ułatwia precyzyjne, lokalizowane obrazowanie pojedynczych glejowaków pochodzących od pacjenta za pomocą delikatnej siły magnetycznej oraz optymalizuje zautomatyzowane procesy przetwarzania obrazów poprzez redukcję zmienności pozycji. Test ten wspiera szczegółowe badania zachowań migracyjnych glejaka w fizjologicznie istotnym mikrośrodowisku oraz umożliwia bezpośrednie porównanie potencjału inwazyjnego i zachowań migracyjnych między nowo zdiagnozowanymi a nawracającymi glejakami pochodzącymi od pacjenta. Metoda ta jest kompatybilna z obrazowaniem żywych komórek oraz analizą multipleksowaną, oferując skalowalną platformę do przedklinicznych badań migracji glejaka blaskowego, potencjału inwazyjnego oraz odpowiedzi terapeutycznej.
Wprowadzenie
Glejak pozostaje jednym z najważniejszych wyzwań w onkologii neurochirurgicznej. Choroba ta jest napędzana przez rozległą heterogeniczność między i wewnątrz pacjenta, silne unikanie odpowiedzi na standardy opieki, odporność na indukcję apoptotyczną oraz niezwykłą plastyczność w odpowiedzi na warunki środowiskowe1. W ostatnich latach złożoność mikrośrodowiska nowotworowego (TME) zyskała znaczną uwagę, szczególnie dynamiczny charakter komórek macierzystych podobnych do glejaka (GSC), które mogą zmieniać fenotyp i stan komórkowy w odpowiedzi na zmiany mikrośrodowiskowe 2,3. Ta fenotypowa plastyczność sprzyja postępowi guza i przyczynia się do nieuniknionego nawrotu mimo agresywnego, standardowego leczenia na pierwszej linii. Resekcja chirurgiczna pozostaje najskuteczniejszą interwencją poprawiającą rokowanie pacjenta, jednak ze względu na wysoce infiltracyjny i mikroskopijny charakter glejaka blastasta, całkowite usunięcie guza nie jest możliwedo osiągnięcia 4. Modelowanie inwazyjnej dynamiki próbek pacjentów w różnych stadiach choroby oraz w specyficznych stanach guzowych ułatwi głębsze zrozumienie dynamicznej i plastycznej zdolności migracji glejaka i tym samym pomoże zidentyfikować skuteczne, nowatorskie podejścia terapeutyczne5. Dlatego opracowanie fizjologicznie istotnych modeli, które uwzględniają specyficzną dla pacjenta dynamikę inwazji i migracji, jest niezbędne dla rozwoju badań przedklinicznych i realizacji tych celów. Ponadto takie modele są kluczowe dla oceny skuteczności nowych terapii przeciwnowotworowych, które teoretycznie mogłyby być opracowane do stosowania w połączeniu z operacją, aby zapobiec resztkowej inwazji mikroskopowej i ostatecznie zmniejszyć ryzyko nawrotu. Złożoność glejaka usprawiedliwia potrzebę zaawansowanych, złożonych modeli przedklinicznych, które mogą odtworzyć kluczowe cechy architektoniczne guza. Modele trójwymiarowe pochodzące od pacjentów zyskały większą uwagę ze względu na zdolność do zachowania interakcji między komórkami, utrzymania gradientów składników odżywczych, tlenu i środków terapeutycznych oraz replikowania integralności strukturalnej rodzimych guzów 6,7. Jednak wizualizacja tych modeli 3D wiąże się z wyzwaniami technicznymi, w tym pozycjonowaniem sferoidów, zmiennością obrazowania oraz powtarzalnością testów.
Tutaj opisujemy specyficzny dla pacjenta model migracji glejaka 3D wykonany w warunkach hipoksycznych, umożliwiający badanie dynamiki migracyjnej w próbkach pochodzących z różnych podtypów i stadij chorobowych pacjentów, w tym próbek guzów nieleczonych i nawracających nowotworów. Platforma ta umożliwia ocenę różnicowych odpowiedzi na czynniki terapeutyczne i wspiera multipleksową analizę po migracji poprzez segmentację obrazów, umożliwiając ilościową ocenę dynamiki migracji, wzrostu sferoidów i ekspresji białek. Wprowadzenie magnetycznych nanocząstek tlenku żelaza pozwala na spójną centralizację sferoidów w każdej studni poprzez zastosowanie delikatnej siły magnetycznej8. Sferoidy hodowane na standardowych płytach wielodołowych często wykazują tendencję do dryfowania w kierunku krawędzi odwiertów, co uważa się za wpływ tworzenia łąkotki cieczy i odparowywania obwodowego, zwłaszcza w odwiertach na obwodzie płyty 9,10,11. Zjawiska te wprowadzają artefakty obrazowe i szum tła, szczególnie podczas mikroskopii światła transmisyjnego, co może utrudniać obrazowanie poklatkowe dynamiki inwazji. W przeciwieństwie do dwuwymiarowych hodowli monowarstwowych, gdzie do obrazowania można wybrać obszary o jednolitej gęstości komórek, testy inwazji pojedynczej sferoidy wymagają precyzyjnego i spójnego umiejscowienia całego obszaru sferoidalnego i migracyjnego w polu obrazowania. To stanowi dodatkowe wyzwanie, ponieważ dryf lub nieregularne położenie w odwiercie może obniżyć jakość danych i powtarzalność. Dlatego konsekwentne centralizowanie sferoidów w płytach wielodołkowych minimalizuje te wyzwania i poprawia nie tylko jakość obrazowania, ale także spójność eksperymentów, procesy przetwarzania obrazów oraz analizy po migracji. Dodatkowo, inicjowanie hodowli sferoidów przy jednolitej gęstości komórek w tych wyspecjalizowanych płytach sferoidalnych sprzyja powtarzalnemu powstawaniu sferoidów, zmniejszając zmienność morfologii, tempa wzrostu i integralności strukturalnej10,11. W praktyce typowe glejosfery używane w tych testach mają średnicę od 150 do 300 μm, formując się powtarzalnie przy ustandaryzowanych gęstościach komórek. Posiewy są utrzymywane w warunkach hipoksycznych (1%–2%O2).
Opisana tutaj platforma obsługuje formaty o umiarkowanej do wysokiej przepustowości, takie jak płytki 96-dołkowe, umożliwiające wielokrotne replikacje na próbkę pacjenta, i jest skalowalna do badań przesiewowych leków lub testów wieloschorzeniowych12 . Optymalizacja pozycji sferoidów i warunków hodowli jest zatem niezbędna dla zwiększenia odporności i znaczenia klinicznego 3D modeli przedklinicznych wykorzystywanych do badania potencjału inwazyjnego glejaka oraz innych dynamicznych procesów komórkowych.
Protokół
Komórki glejaka pochodzącego od pacjentów zostały dostarczone przez Erasmus MC w Rotterdamie, Holandia oraz Szpital dla Chorych Dzieci (Toronto, Kanada). Pierwotne próbki pacjentów dla tych linii zostały pobrane w ramach rutynowych resekcji od pacjentów objętych ich świadomą zgodą (etyczne numery zatwierdzenia, MEC-2013-090, 0020010404).
1. Przygotowanie magnetycznych gliomasphere pochodzących od pacjentów (Rysunek 1)
- Co najmniej 30 minut przed dysocjacją glejaka należy zachować odpowiednią ilość enzymu odłączającego komórki i medium gliomasphere do eksperymentu (zazwyczaj 1 mL na kolbę T75) i doprowadzić oba do temperatury pokojowej.
- W warunkach sterylnych należy pobrać gliomasfery z kolby hodowli poprzez delikatne aspiracje za pomocą 10 mL serologicznej pipety i pomocy pipetowej i przenieść je do stożkowej probówki o pojemności 15 mL. Wiruj w 300 x g przez 3 minuty. Ostrożnie odrzucaj supernatant, nie naruszając granulki komórkowej.
- Ponownie zawiesij pellet w 1 mL enzymu odłączającego komórki w temperaturze pokojowej i inkubuj przez 10–15 minut, delikatnie mieszając co 2-3 minuty przez pipetowanie pipetą P1000, aby ułatwić dysocjację do zawiesiny pojedynczej.
- Dodaj równą objętość ośrodka gliomasphere, aby dezaktywować enzym. Wirówka zawiesiny jednokomórkowej w 300 x g przez 3 minuty w 37 °C, a następnie delikatnie ponownie zawiesowana w 3–5 mL kompletnego medium gliomasphere, w zależności od wielkości pelletu komórkowego, notując dokładną objętość użytą do kolejnego liczenia komórek.
UWAGA: Czas inkubacji podłoża enzymatycznego w dużej mierze zależy od wielkości glejaków w hodowli – zawsze należy wizualnie obejrzeć przed użyciem i odpowiednio je dostosować. - Weź reprezentatywną ilość 10 μL zawiesiny jednokomórkowej i delikatnie wymieszaj z 10 μL Trypan Blue w rurce mikrowirówki o pojemności 1,5 mL. Załaduj 10 μL tej mieszaniny do hematometru lub automatycznego licznika komórek, aby określić żywotne komórki.
- Zasiać 500 pojedynczych komórek glejaka na dołek w mikropłytkę sferoidalną o ultra-niskim przyczepieniu 96 dołków. Optymalna gęstość zasiewów może się różnić w zależności od próbek pacjentów.
- Dodaj 1 μg/mL jodku propidium (PI) oraz 0,05 μL nanocząstek tlenku żelaza na odwór (na przykład użyj 1,5 μL magnetycznych nanocząstek dla 20 sferoidów, co odpowiada około 10 000 pojedynczych komórek). Upewnij się, że nanocząstki tlenku żelaza są ujednoliczone przed dodawaniem, pipetując w górę i w dół z P100 ustawionym na 100 μL.
UWAGA: Objętość stosowanych nanocząstek tlenku żelaza można optymalizować w zależności od użytej linii komórkowej, jednak w tym przypadku 1,5 μL na 10 000 komórek wystarczało do centralnej lokalizacji sferoidów. Takie rozwiązanie zapewnia jednolity rozmiar sferoidów na wszystkich próbkach pacjentów, umożliwiając bezpośrednie porównanie dynamiki inwazji i wzrostu podczas testu inwazyjnego. - Inkubuj płytki przez 48 godzin w nawilżonym inkubatorze do hodowli komórkowych w temperaturze 37 °C, 5%CO2 i 21%O2 , aby umożliwić powstanie gliomasphere.
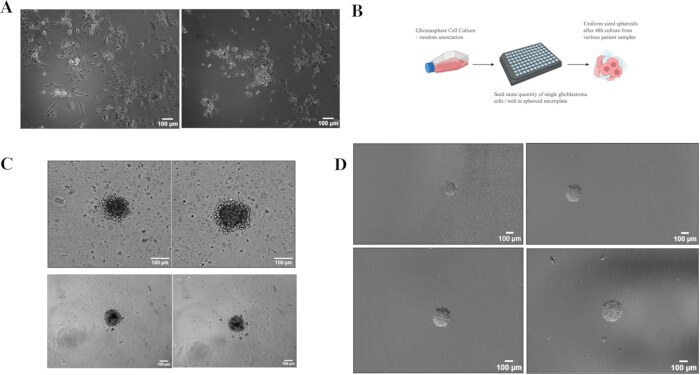
Rysunek 1: Gliomasphere o jednolistej wielkości i położeniu współhodowane z nanocząstkami tlenku żelaza. (A) Gleje pochodzące z nowo zdiagnozowanych i nawracających guzów u pacjentów wykazują podwójne fenotypy oraz losowe powiązania komórka z komórką. (B) Schematyczne przedstawienie formowania sferoidów o jednolitym rozmiarze w ciągu 48 godzin od zasiewu. (C) Obrazy glejowafer przepuszczanego światłem hodowane przez 48 godzin w mikropłycie sferoidalnej o okrągłym dnie, bez (górny panel) i z (dolnym panelem) nanocząsteczkami tlenku żelaza. Zwróć uwagę na ciemny, nakrapiany wygląd gliomafer zawierających nanocząstki tlenku żelaza. (D) Pozycjonowanie glejaka pokazujące losową lokalizację glejowaków hodowanych bez nanocząstek (góra) w porównaniu do stałej centralnej lokalizacji tych hodowanych nanocząstkami (na dole), co skutkuje redukcją szumu tła i poprawą jakości obrazu. Pasek skali = 100 μm. Schemat wykonany przy użyciu Biorender.com. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
2. Przygotowanie wielodołowych płytek pokrytych macierzą zewnątrzkomórkową (ECM) (1 godzinę przed testem migracyjnym)
- Zachowaj i przechowuj ECM zgodnie z instrukcjami producenta. Rozmrażaj 1 mL aliquot ECM (rozcieńczenie 1:10) powoli na lodzie przez noc w temperaturze 4 °C. Bezpośrednio przed pokryciem przygotuj ostateczny roztwór roboczy w 1:100 (v/v), wykonując kolejne rozcieńczenie 1:10 zapasu 1:10 w lodowatym ośrodku neurosfery. Utrzymuj rozcieńczone ECM na lodzie przez cały czas, aby zapobiec przedwczesnej polimeryzacji. Zawsze utrzymuj to rozcieńczenie na lodzie, ponieważ ECM szybko polimeryzuje się w temperaturze pokojowej.
- Do każdego dołku płyty o płaskim dnie z 96 dołków, przezroczystym, płaskim dnem lub μClear bottom, należy wydać 50 μL roztworu roboczego ECM 1:100. Inkubuj płytkę w temperaturze 37 °C przez co najmniej 1 godzinę, aby ECM mogło się utrwalić i utworzyć cienką matrycę w każdej studni.
- Po inkubacji ostrożnie usuń 30 μL z każdego dołku, pozostawiając 20 μL polimeryzowanego ECM (końcowe stężenie 1:100 v/v) pokrywające dno każdego otworu. ECM musi być utrzymywane w jak najniższej temperaturze w tym czasie, ponieważ szybko polimeryzuje w temperaturze pokojowej. Podczas tego procesu płytka obrazowa może być również wcześniej schłodzona i przechowywana na lodzie.
3. Ustawienie płytek obrazujących i obrazowanie komórek żywych
- W dniu badania (48 godzin po zasiewaniu gliomasphere) umieść mikropłytę pokrytą ECM na magnetycznym napędzie płytowym z 96 dołkami, jak pokazano na rysunku 2B,C. Sterylizuj magnetyczną płytkę, spryskując 70% etanolem i wytrzyj do sucha, nie mocz.
- Wizualnie sprawdź sferoidy pod kątem jakości i jednolitości. Za pomocą pipety przenieś 80 μL medium zawierającego pojedynczą glejakową z każdego dołka i delikatnie pipetuj na płytkę z powierzchnią ECM.
UWAGA: Dla szczególnie dużych sferoidów należy zminimalizować naprężenia ścinające podczas przenoszenia; można to osiągnąć, odcinając 1-2 mm od końcówki pipety P100 nożyczkami, aby poszerzyć otwór i zmniejszyć uszkodzenia mechaniczne. Upewnij się, że nożyczki zostały wysterylizowane pod wpływem UV przed użyciem. Najważniejsze jest ograniczenie dodawania pęcherzyków powietrza, ponieważ ma to duży wpływ na obrazowanie. - Leczy sferoidy zgodnie z projektem eksperymentalnym. Przygotuj roztwory lecznicze w pożądanych stężeniach w objętościach 20 μL, a następnie dodaj te 20 μL do każdego otworu zawierającego sferoidy, aby uzyskać końcową objętość 100 μL.
UWAGA: Takie traktowanie glejaków zmniejsza pipetowanie i minimalizuje ryzyko usunięcia sferoidów z odwiertu. - Przenieś płytę, pozostając na napędzie magnetycznym, do systemu obrazowania do obrazowania na żywo. Zachowaj ostrożność przy zdejmowaniu płytki z magnetycznego uchwytu i utrzymuj się jak najbardziej prosto, aby zminimalizować ruch sferoidów od środka otworu.
- Wykonuj obrazowanie na żywo za pomocą programowalnego mikroskopu z odwróconymi komórkami na żywo wyposażonego w obiektyw Plan-Apochromat 5x/0.35 NA, soczewkę rurkową 0.5x, kamerę Axiocam 506 (binning =2) oraz oprogramowanie Zen 3.1 (Blue Edition). Kalibracja piksel-mikron jest wbudowana w system obrazowania i automatycznie obsługiwana przez oprogramowanie, dlatego nie jest wymagana ręczna kalibracja. W takim przypadku wykonaj obrazowanie z powiększeniem 2,5x (obiektyw 5x z obiektywem rurowym 0,5x), z kamerą przypisaną do 2 x 2, co daje kalibrację 1 piksel = 3,645 μm.
- Reguluj sterowanie środowiskowe tak, aby było 1% tlenu i 5%CO2 , przy bardzo wolnym przepływie powietrza z mieszacza gazowego. Pomaga to zapobiegać niepożądanemu parowaniu podczas przepuszczania powietrza przez butelkę nawilżającą.
- Aby zapobiec przesunięciu glejowaków podczas początkowego okresu obrazowania, należy zmniejszyć przyspieszenie i prędkość stopnia mikroskopu do 10%, minimalizując ruch na powierzchni ECM przed przyleganiem sferoidalnym.
- Delikatnie załaduj płytkę wielowarstwową bez napędu magnetycznego do mikroskopu. Jeśli to możliwe, upewnij się, że materiał płyty jest wybrany w oprogramowaniu, aby optyka była dostosowana do odpowiedniego dopasowania.
- Stosuj odpowiednie powiększenie, które obejmie całe inwazyjne pole widzenia. Na przykład w Cell Discoverer 7 wybrano obiektyw 5x i soczewkę rurkową 0,5x, aby uzyskać powiększenie 2,5x.
- Zlokalizuj każdą glejowasferę, skup się i przypisz pozycję zawierającą współrzędne x-y-z. Sprzętowe autofokusowanie, jeśli jest dostępne, powinno być stosowane do zapewnienia spójnego obrazowania tej samej płaszczyzny ogniskowej przez cały eksperyment.
- Sprawdź zarówno kontrast gradientu fazowego (światło przepuszczone), jak i kanały fluorescencji, a także dostosuj czas naświetlania i natężenie światła, aby upewnić się, że nie doszło do nadmiernej ekspozycji. Wzbudz jodek propidiu (barwienie martwych komórek) za pomocą diody LED o średnicy 590 nm. Zbieraj emisję za pomocą filtra czteropasmowego (quad band), rejestrując pasmo długości fal 618–756 nm. Może się to różnić w zależności od innych mikroskopów, w zależności od filtrów i obecnego źródła światła.
- Ustaw tak, aby robić zdjęcia co godzinę przez pożądaną liczbę dni.
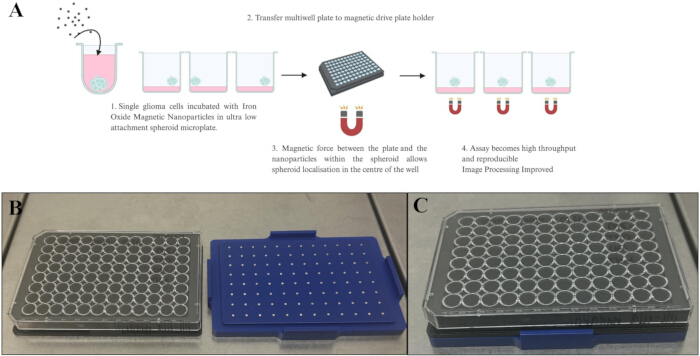
Rysunek 2: Opis ustawienia płyty obrazującej. (A) Schemat przedstawiający opisany protokół. (B) Obraz płyty wielowarstwowej obok napędu płyty magnetycznej oraz proste zamontowanie płytki wielowarstwowej na górze napędu magnetycznego, z każdym pojedynczym magnesem zlokalizowanym w centrum każdego dołka, co ułatwia lokalizację gliomasphere. Schemat wykonany przy użyciu Biorender.com. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
4. Utrwalanie sferoidów po teście inwazyjnym do analizy białek multipleksowanych (Rysunek 3)
- Po zakończeniu testu inwazyjnego przepłucz każdą studnię 100 μL PBS. To pozwoli zwiększyć objętość do 200 μL/studnia. Powtórz ten krok, usuwając następnie 100 μL PBS i zastępując go dodatkowymi 100 μL PBS.
- Ostrożnie usuń 200 μL medium, następnie dodaj 100 μL 4% paraformaldehydu (PFA) do każdej studni i inkubuj przez 10 minut w temperaturze pokojowej pod okapem oparowym.
UWAGA: Paraformaldehyd to toksyczny związek chemiczny, dlatego należy zachować ostrożność, aby zminimalizować ryzyko lub narażenie. - Po utrwaleniu usuń PFA z każdego dołka i przemyj 3 razy PBS, usuwając PFA i dodając za każdym razem 100 mL PBS.
- Dodaj barwienie immunologiczne zgodnie z instrukcjami producenta. Alternatywnie, do długotrwałego przechowywania, dodaj do PBS azyk sodu (0,02%), aby zachować sterylność i uszczelnić płytkę przezroczystą folią. Przechowuj w temperaturze 4 °C do czasu potrzeby.
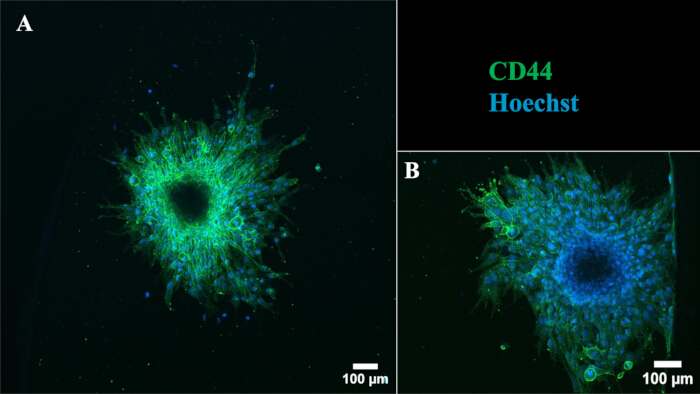
Rysunek 3: Reprezentatywna analiza białek po analizie migracji glejowaków znajdujących się w centrum versus na krawędzi studni. Laserowa mikroskopia konfokalna nawracających gliomasphere immunobarwiona przeciwciałem skierowanym do markera komórek macierzystych glejaka CD44 po migracji. CD44-FITC (zielony) oraz Hoechst (jądra, niebieski). Pasek skali = 100 μm. Groty strzał wskazują krawędź studni. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
5. Potok przetwarzania obrazów dotyczący dynamiki migracji pochodzącej z pacjenta
UWAGA: Z doświadczenia z naszym zbiorem danych zalecamy, aby komputer przetwarzający miał procesor wielordzeniowy o wysokiej bazowej częstotliwości rdzeni i znacznej ilości pamięci, ponieważ przetwarzanie WEKA doskonale odpowiada dużej liczbie rdzeni i będzie wykorzystywać dostępną pamięć w zależności od wielkości zbioru danych. Specyfikacja użyta i zalecana zgodnie z poniższymi. Należy zauważyć, że przetwarzanie GPU nie jest wykorzystywane w tym procesie.
CPU: >= 6 rdzeni | >= 2 GHz (zalecane); 32 rdzenie | 2,1 GHz (używane)
Pamięć: > 32 GB (zalecane); 192 GB (używane)
- Open Fiji13 [obecnie do analizy służy dołączony plik wykonywalny ImageJ-win64.exe]. Otwórz obraz, przechodząc do – File > Open Select Multi-channel, multiscen time-lapse picture file (.czi) otwiera się na interfejsie Fiji (jeśli używasz skryptu, jest to plik uzupełniający 1).
- Wybierz wymagane obrazy w interfejsie graficznym. Najlepiej działa, jeśli najbardziej inwazyjne glejaki w eksperymencie początkowo wytrenują klasyfikator (czyli dobrze kontrolują – DMSO), ponieważ ten obraz przedstawi szczegóły dotyczące każdego segmentu obrazu, tj. wygląd najeżdżających lub migrujących komórek vs sferoidów czy tła.
- Następnie przejdź do Obraz > kolor > rozdzielone kanały – to rozdziela obraz na dwa kanały – jeden w tym przypadku z barwieniem jodku propidium, a drugi z przepuszczonym światłem.
- Wybierz kanał do segmentacji – w tym przypadku kanał światła transmitowany, który reprezentuje dynamikę migracji. Przejdź do Plugins > Segmentation > Trenowalna segmentacja WEKA14.
- Zmień nazwy tych dwóch domyślnych klas na: Klasa 1: Gliomasphere; Klasa 2: Inwazja/Migracja. Dodaj trzecią klasę o nazwie Tło (opcjonalne, ale zalecane), przechodząc do Ustawień > Nowa klasa > Tło.
- Używając narzędzia Freeline, annotuj obszary treningowe w obrębie każdego stosu obrazu i klasy, rysując na reprezentatywnych obszarach, czyli narysuj zawijas w sferoidzie i kliknij Dodaj do Spheroida , powtarzając to dla obszaru inwazji i tła, aż wszystkie regiony będą reprezentowane w każdej klasie. Wytrenuj klasyfikator, klikając Train Classifier. Dodatkowe obrazy można dodać, aby dodatkowo trenować klasyfikator i poprawić dokładność, jeśli jest to konieczne.
- Gdy jest spełniony, zapisz wytrenowany model klasyfikatora pod nazwą pliku CellLine_Treatment_Classifier.model. Zamknij okno segmentacji po zakończeniu pracy.
- Aby uzyskać nowe obrazy z tym zapisanym klasyfikatorem, przejdź do Plugins > Segmentation > Trainable WEKA segmentation >Load Classifier> Open Saved Classifier CellLine_Treatment_Classifier (to zapisuje plik .model - . Jednym z wymogów dla Pliku Uzupełniającego 2 jest przygotowanie tego pliku przed uruchomieniem scenariusza. Po inicjacji skryptu należy wybrać odpowiedni plik próbny).
- Nawiguj do uzyskania prawdopodobieństwa na interfejsie segmentacji WEKA Trainable – Generuje on mapy prawdopodobieństwa dla każdej wybranej klasy, tj. Gliomasphere, Invasion/Migration, Background, wskazując prawdopodobieństwo, że każda wartość piksela przypisana obrazowi należy do konkretnej klasy lub regionu obrazu. Wygeneruje to plik z 3 oddzielnymi obrazami map prawdopodobieństwa (Gliomasphere, Invasion, Background) z 32-bitowym zakresem dynamicznym dla każdego obrazu.
- Wybierz mapę prawdopodobieństwa odpowiadającą Inwazji/Migracji. Przejdź do Image > hyperstacks > zmniejszyć wymiarowość. Wybierz Zachowaj źródło.
- Odznacz kanały , ale zachowaj ramki – to z czasem redukuje mapę do jednego kanału – w tym przypadku mapy prawdopodobieństwa inwazji. Wybierz mapę prawdopodobieństwa odpowiadającą gliomasphere.
- Powtórz kroki 5.10-5.11. Teraz będą dwie mapy prawdopodobieństwa odpowiadające oryginalnemu obrazu czasoposkokowego światła dla jednej sceny migracji oraz obszaru sferoidalnego. Zapisz oba z następującą konwencją nazw plików: ImageName_Scene_Gliomasphere_ProbabilityMap oraz ImageName_Scene_Invasion_Probability Map w folderze odpowiadającym wybranemu eksperymentowi, tj. CellLine_Treatment.
- Ustaw próg, aby utworzyć maskę binarną: przejdź do Obraz > Dostosuj > próg. Wybierz metodę progową (np. Yen, Otsu). Zachowaj taką samą metodę wyboru we wszystkich przetworzonych obrazach.
- Przejdź do analizy > ustalania pomiarów. Wybierz pożądane wymiary; Kliknij obszar, gęstość zintegrowana i średnia, a następnie naciśnij OK. Nawiguj do analizy > analizy cząstek. Dla Inwazji/Migracji rozmiar zestawu: 0 – nieskończoność; cyrkularność: 0,00 – 1,00. W przypadku glejaków rozmiar zestawu: zazwyczaj 1500 – nieskończoność (dostosowywanie w zależności od rozmiaru sferoidów w linii komórkowej/leczeniu – sfery kontrolne naturalnie rosną); Cyrkularność: 0,05 – 1,00. Wybierz jednostki pikselowe dla wszystkich.
- Przejdź, aby analizować>Analizować piksele> Pokaż: Wybierz maski. Po wygenerowaniu masek zwerfikuj segmentowany obszar zainteresowania na całym stosie timelapse, aby zapewnić dokładne śledzenie. Zastosowanie operacji binarnych za pomocą Procesu > binarnego > ... (np. wybieranie Wypełnienia Dziur podczas dopracowywania maski sferoidnej), a następnie przejdź do Analizuj > Analizuj Cząstki > Pokaż > Wybierz Nic i wybierz Podsumowanie. To dostarczy podsumowania wybranych pomiarów.
- Zapisz wyniki, klikając Plikuj > Zapisz jako > Rezultaty. Zapisz jako plik .csv. Otwórz w arkuszu kalkulacyjnym lub innym oprogramowaniu do analizy.
- Powtórz analizę progową i cząstek dla wszystkich segmentowanych klas (np. gliomasfery, inwazja), aby wyodrębnić odpowiednie pomiary w czasie. Wyjście .csv zapewnia powierzchnię (w pikselach lub mikronach w zależności od kalibracji) w czasie.
- Wybierz kanał fluorescencyjny reprezentujący barwienie PI (np. kanał 2). Zastosuj analizę progową i cząstek jak powyżej, aby zidentyfikować martwe komórki. Użyj wtyczki Calculator Plus, aby pomnożyć maski komórek PI-dodatnich z maską gliomasphere oraz osobno z maskami inwazyjnymi, aby ilościowo określić martwe komórki dla konkretnych regionów.
- Eksportuj maski, mapy prawdopodobieństwa i tabele podsumowujące jako pliki TIFF i CSV z jasnymi, opisowymi nazwami plików do dokumentacji i analizy dalszej. Korzystając ze skryptu podanego w dodatku, można znaleźć następującą konwencję nazewnictwa: np. FileName_Scene#_(PI-)Invasion_Summary.csv (dane dla obiektów w czasie), FileName_Scene#_(PI-)Invasion.zip (obszary zdefiniowane za pomocą cząstek analizy).
UWAGA: Plik uzupełniający 1 wygeneruje pojedyncze pliki tif z obrazami timelapse dla każdej sceny. Plik uzupełniający 2 przeprowadzi klasyfikację pikseli WEKA na podstawie zdefiniowanego pliku modelu klasyfikacji wszystkich scen i wszystkich obrazów w każdym poskoku czasowym, dostarczając mapy prawdopodobieństwa dla Gliomasphere oraz inwazyjnych komórek. Plik uzupełniający 3 podzieli wszystkie obrazy na gliomafery i komórki inwazyjne oraz określi obszary objęte powierzchnią oraz podział obszarów pokrytych martwymi (PI-dodatnimi) komórkami. Plik uzupełniający 4 zakłada konkretną metodę progową oraz określony obszar do analizy, podczas gdy plik dodatkowy 3 pozwala użytkownikowi ustawić próg i dostosować region dla każdej sceny. Prog nie powinien być zmieniany na różne metody dla każdej sceny, lecz można go ustawić na różne metody dla każdego obiektu.
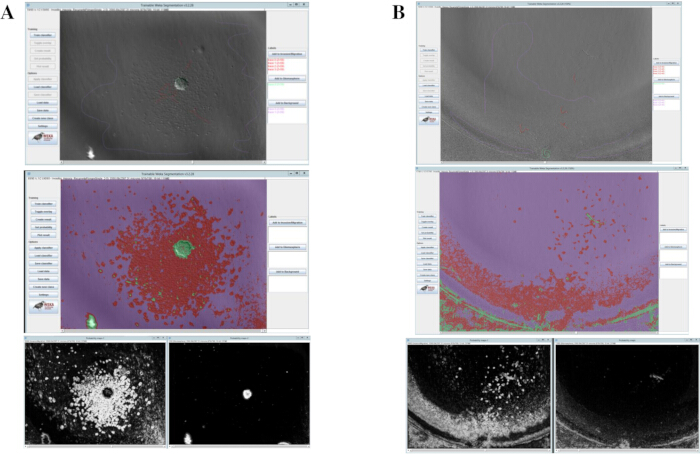
Rysunek 4: Wyzwanie powtarzalnego przetwarzania obrazu spowodowane słabą segmentacją glejowaku. Potok przetwarzania obrazów z użyciem trenowalnej wtyczki segmentacyjnej WEKA na Fidżi, pokazujący (A) centralnie zlokalizowaną glejakasferę z większą segmentacją obszaru migracji względem tła w porównaniu do ( B) glejowakularza zlokalizowanej na krawędzi, skutkuje słabą segmentacją obrazu i nieużyteczną replikacją. Dzięki zapewnieniu spójności lokalizacji glejowaków, przetwarzanie obrazów w biologicznych replikatach pojawia się zgodnie z (A), co znacznie poprawia powtarzalność i automatyzację testów. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
Wyniki
Korzystając z opisanego testu 3D migracyjnego w warunkach hipoksycznych, glejowaki z guzów nawracających pacjentów były leczone pojazdem lub lekiem X, a dynamika inwazji monitorowano co godzinę przez 72 godziny. Rysunek 5 opisuje analizę segmentacji WEKA dynamiki inwazji, ujawniając, że lek X znacząco zmniejsza potencjał inwazyjny nawracających gliomafer w porównaniu z kontrolą pojazdu w klinicznie istotnych warunkach hipoksycznych.
Aby dalej ocenić wpływ Leku X na cechy komórek macierzystych po migracji, glejaki zostały zdefiniowane i immunobarwione pod kątem ekspresji i lokalizacji markera komórek macierzystych glejaka CD44, jak pokazano na Rysunku 6. Ta analiza multipleksowana ułatwia wizualizację dynamiki migracji i ekspresji markerów komórek macierzystych, dostarczając wglądu w to, jak Lek X moduluje zarówno potencjał inwazyjny, jak i właściwości macierzyste modeli glejaka nawracającego w warunkach klinicznie istotnych w warunkach hipoksyjnych.
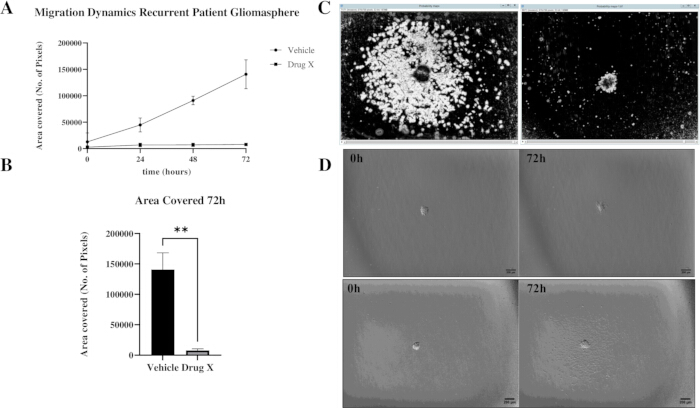
Rysunek 5: Zoptymalizowany test migracji podkreśla skuteczność nowego Leku X w zapobieganiu nawracającej migracji gliomasphere. Gleiaki pobierane przez pacjenta były leczone vehicle'em lub lekiem X przez 72 godziny w warunkach hipoksycznych. Dynamika inwazji była rejestrowana co godzinę przez 72 godziny. (A) Reprezentatywne obrazy światła transmitowanego na 0 godzin i 72 godzin w górnym panelu - Pojazd leczony i dolny panel - Lek X leczony. (B) Reprezentatywne mapy prawdopodobieństwa obszaru inwazji wykorzystywane w analizie segmentacji. (C) Gleiasfery rekurencyjne leczone lekiem X wykazywały znacznie mniejszy potencjał inwazyjny w porównaniu z gliomasphere leczonymi przez pojazd. Ilościowa identyfikacja obszaru inwazyjnego po 72 godzinach wykazała istotnie zmniejszoną inwazję gliomafer leczonych lekiem X, co zostało przedstawione jako całkowita powierzchnia pokryta w chwili fiksacji. Dane reprezentują obszar inwazji w czasie od n=3 niezależnych replikacji. Istotność statystyczna oceniono za pomocą niesparowanego testu T; p < 0,005 oznaczany jest przez **. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
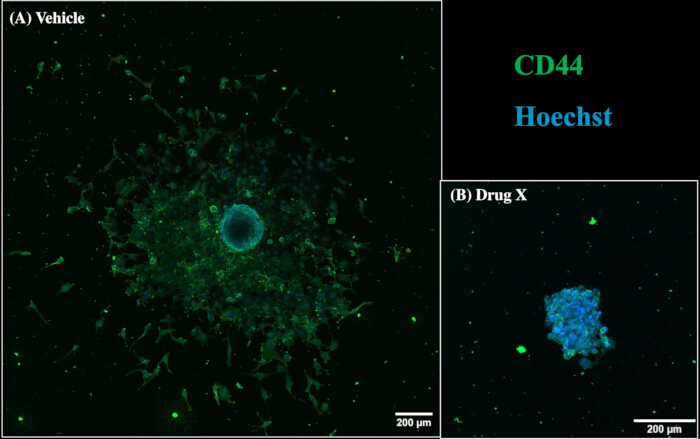
Rysunek 6: Migracja i ekspresja markerów komórek macierzystych po leczeniu. Glejaki opisane na Rysunku 5 zostały unieruchomione po migracji i immunobarwione za pomocą przeciwciała skierowanego do markera komórek macierzystych glejaka CD44 po leczeniu pojazdem lub lekiem X. Ten rysunek pokazuje, jaki rodzaj multipleksowanej analizy po migracji można przeprowadzić przy użyciu standardowych technik immunodowaniowania. Zdjęcia pokazują CD44-FITC (zielony) oraz Hoechst (jądra, niebieski). Pasek skali = 200 μm. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figury.
Plik uzupełniający 1: Ponowne zapisywanie plików CZI z mikroskopu z wieloma scenami jako pojedynczych scen jako pliki TIF.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Generowanie map prawdopodobieństwa przy użyciu modelu Weki.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 3: Analiza segmentacji bez progu. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 4: Analiza segmentacji z progiem. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Modelowanie inwazyjnej dynamiki wysoce agresywnych guzów, takich jak glejak, jest kluczowe dla lepszego zrozumienia procesów chorobowych i identyfikacji skuteczniejszych strategii leczenia. Złożony, adaptacyjny i plastyczny charakter migracji komórek glejaka wymaga modeli przedklinicznych, które potrafią dokładnie uchwycić dynamiczne zachowania poszczególnych komórek glejaka podczas migracji z masy guza centralnego. Co ważne, modelowanie tych procesów na próbkach pochodzących od pacjentów z różnych stadiów choroby pozwala naukowcom lepiej radzić sobie z problemem heterogeniczności guzów oraz identyfikować wszelkie zmiany w dynamice inwazji specyficznych dla określonych stadiów.
Biorąc pod uwagę tę złożoność, rozsądnie jest założyć, że modele przedkliniczne powinny posiadać równy poziom zaawansowania. Tutaj opisujemy udoskonaloną metodę generowania jednolicie wielkości glejowaków pochodzących od pacjenta, współhodowanych z nanocząstkami tlenku żelaza. Takie podejście umożliwia kontrolowaną lokalizację glejowaków w centrum każdego dołu, umożliwiając automatyczne obrazowanie dynamiki inwazji na żywych komórkach. Kilka badań podkreśliło istotną zmienność rozmiaru, kształtu i kinetyki wzrostu sferoidów przy użyciu konwencjonalnych metod hodowli 3D. Sayde i współpracownicy wykazali, że sferoidy mogą wykazywać szerokie rozkłady średnic między tymi pochodzącymi z populacji komórek macierzystych niesortowanych a sortowanymi, co odzwierciedla wrodzoną zmienność w formowaniu sferoidów15,16. Ta heterogeniczność została również zidentyfikowana jako główne źródło problemów z powtarzalnością w testach przesiewowych na obecność leków opartych na sferoidach, co dodatkowo podkreśla znaczenie generowania jednorodnych populacji sferoidów12. Wyniki te podkreślają konieczność standaryzacji warunków formowania się sferoidów przed przeprowadzeniem analiz funkcjonalnych, co jest wyzwaniami, które ta metoda bezpośrednio rozwiązuje. Poprzez standaryzację zarówno rozmiaru i położenia sferoidów, metoda ta znacząco zwiększa powtarzalność i minimalizuje zmienność typową dla systemów hodowli komórek 3D, gdzie nierównomierne tworzenie sferoidów może wpływać na dalszą analizę.
Podczas początkowego opracowania tego testu zaobserwowaliśmy znaczną zmienność lokalizacji sferoidów pomiędzy replikacjami, wymagającą użycia dużej liczby studni na eksperyment, ale także wielu biologicznych replikacji, aby uzyskać statystycznie istotne wyniki. To nie tylko znacznie zwiększyło obciążenie pracą, ale także generowało znaczną ilość nieużytecznych danych, zmniejszało efektywność testów i powtarzalność. Powstała zmienność odzwierciedlała więc utratę danych mierzalnych, a nie różnice w zachowaniu inwazyjnym. Centralizując gliomasphere w każdej studni, lokalizacja magnetyczna zapewnia, że obrazy ze wszystkich replik mogą być konsekwentnie segmentowane i analizowane, nawet tam, gdzie obserwuje się różnice biologiczne w dynamice inwazji między próbkami.
Wprowadzenie nanocząstek tlenku żelaza wprowadza delikatną siłę magnetyczną, która konsekwentnie centralizuje gliomasphere we wszystkich studniach, znacznie poprawiając wydajność pipeline'u przetwarzania obrazów, przetwarzania danych oraz analiz po migracji, nie wpływając przy tym na biologię gliomasphere ani żywotność8. Kluczową zaletą tego systemu jest jego kompatybilność z analizą multipleksacji po migracji; na przykład Rysunek 6 przedstawia analizę wizualizacji markera komórek macierzystych glejaka CD44, co umożliwia ocenę ekspresji komórek macierzystych podobnych po migracji i leczeniu między próbkami pacjentów. Ta zdolność podkreśla potencjał platform dla badań integracyjnych łączących fenotypy inwazyjne z cechami molekularnymi, co jest istotne ze względu na fenotypową plastyczność komórek macierzystych przypominających glejaka w odpowiedzi na sygnały mikrośrodowiskowe oraz ich zdolność do unikania leczenia, co sprzyja nieuchronnemu nawrotowi guza.
Chociaż ten test znacznie poprawia powtarzalność wizualizacji dynamiki inwazji pojedynczych sferoidów, istnieją pewne kluczowe ograniczenia, które należy wziąć pod uwagę przy przyszłej optymalizacji testu. Matrigel jest szeroko stosowanym modelem błony podstawnej, jednak jest złożonym, nieokreślonym substytutem macierzy zewnątrzkomórkowej (ECM) pochodzącym z mięśniaków myszy, który nie oddaje w pełni mikrośrodowiska ludzkiego mózgu17. Przyszła optymalizacja testu może uwzględnić specyficzne dla mózgu modele ECM, aby lepiej naśladować mikrośrodowisko guza mózgu, co uważamy za kluczowy krok optymalizacji modeli inwazji mózgu in vitro18,19. Chociaż Matrigel pozostaje szeroko stosowanym modelem ECM, reprezentuje niespecyficzną dla mózgu macierz zewnątrzkomórkową, pochodzącą z mięsaka mysiego. W związku z tym nie oddaje w pełni biochemicznych i mechanicznych właściwości mikrośrodowiska ludzkiego mózgu. Co ważne, opisana tutaj strategia lokalizacji magnetycznej jest niezależna od macierzy i może być łatwo adaptowana do specyficznych dla mózgu systemów ECM w przyszłych badaniach, aby dodatkowo zwiększyć istotność fizjologiczną.
Inne kwestie testu to potencjalne wymagania dotyczące trenowania nowego modelu segmentacji WEKA dla każdej linii komórkowej ze względu na heterogeniczność próbki oraz zmienność morfologii inwazji. Dodatkowo, zarówno gęstość zasiew, jak i stężenie nanocząsteczek powinny być zoptymalizowane dla każdej linii komórkowej i typu sferoidy, aby zachować jednolitość i żywotność przed przeprowadzeniem testów migracji o wysokiej przepustowości. Niezależnie od tych ograniczeń, platforma ta zapewnia skalowalne i elastyczne ramy do badania specyficznej inwazji glejaka i reakcji na leczenie. Jego kompatybilność z obrazowaniem żywych komórek, zautomatyzowanymi potokami segmentacyjnymi oraz multipleksowaną analizą po testach otwiera możliwości do badań przesiewowych o wysokiej treści nowych terapii, terapii skojarzonych oraz mechanistycznych badań inwazji z wysoce zróżnicowanych próbek guzów pacjentów. Ponadto, rozszerzenie tego testu na systemy kohodowlane, takie jak komórki mózgowe rezydentów, takie jak astrocyty, neurony i mikrogleje, czy modele interakcji bariery krew-mózg, dostarcza dodatkowych informacji na temat interakcji z gróżdżkami nowotworowymi, które napędzają postęp i nawrót glejaka mózgowego.
Podczas opracowywania testu zidentyfikowano kilka kroków technicznych jako kluczowe determinanty powtarzalności i ogólnej wydajności testu. Standaryzacja gęstości zasiewów linii komórkowych przed testem zapewnia spójność początkowego rozmiaru glejowaku, co umożliwia porównywalność dynamiki wzrostu sferoidów między liniami komórkowymi, leczeniem i warunkami. Bez tego etapu standaryzacji początkowe rozmiary sferoidów dodają znaczący poziom zmienności, który może odzwierciedlać zmienne reakcje glejaków na warunki eksperymentalne. Precyzyjna centralna lokalizacja glejaków w każdej studni jest kluczowym wymogiem dla precyzyjnego, automatycznego akwizycji obrazu i segmentacji w dalszej fazie. Nieobecne sferoidy powodowały znaczny szum obrazujący i uniemożliwiały wykorzystanie segmentacji WEKA jako sposobu segmentacji obrazów na wyraźnie określone obszary. Dzięki zapewnieniu, że wszystkie gliomafery są zlokalizowane w centrum, ten sam klasyfikator WEKA może być używany wielokrotnie, ponieważ szum jest znacznie osłabiony, a jakość obrazu dramatycznie się poprawia. Przedstawienie tego pokazano na rysunku 1. Wprowadzenie magnetycznych nanocząstek tlenku żelaza jest zatem metodą zapewnienia centralnego położenia gliomafer, minimalizując zmienność pozycji oraz znacząco poprawiając przetwarzanie obrazów i porównywalność między replikacjami. Na koniec, trening modelu segmentacji w ramach pipeline'u WEKA stanowi dodatkowy kluczowy krok standaryzacyjny. Ze względu na heterogeniczność między pacjentami oraz różnice w morfologii inwazji, pojedynczy model segmentacji może nie uogólniać się na wszystkie próbki. Przeszkolenie lub doprecyzowanie parametrów klasyfikacji dla każdej linii komórkowej zapewnia dokładne mapy prawdopodobieństwa obszarów inwazyjnych i zapobiega błędom ilościfikacyjnym.
Ogólnie rzecz biorąc, ten test stanowi powtarzalną i skalowalną platformę do badania dynamicznych, inwazyjnych zachowań próbek glejaka pochodzących od pacjentów w czasie rzeczywistym. Jego kompatybilność z multipleksowanym obrazowaniem oraz analizami molekularnymi w dalszej fazie czyni ją potężnym i wszechstronnym narzędziem zarówno do badań podstawowych, jak i translacyjnych glejaków, co znacznie zwiększy znaczenie translacyjne modeli glejaka przedklinicznego.
Oświadczenia
Nie ma nic do ujawnienia
Podziękowania
Prace te były wspierane przez Research Ireland (Science Foundation Ireland) na podstawie kodu grantowego 20391A01 oraz Health Research Board na podstawie kodu grantowego ERA-TRANSCAN-2022-002. Komórki zostały uprzejmie udostępnione przez naszych współpracowników z laboratorium Dirksa, SickKids w Toronto oraz Erasmus Medical Center (EMC) w Rotterdamie.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| ZESTAW BIODRUKUJĄCY 96 DOŁKÓW, PRZEZROCZYSTY | Greiner | 655840 | |
| Accutase | Invitrogen | 00-4555-56 | Nie ma |
| Suplement B-27 (50X), surowica i suplement; wolne bez witaminy A | Gibco | 12587010 | 10% |
| Podstawowy czynnik wzrostu fibroblastów, człowiek (bFGF) | PeproTech | 100-18B | 20 ng/ml |
| Celldiscoverer 7 | Zeiss | - | |
| Mikropłyty sferoidalne Corninga | Corning | CLS4515 | |
| Macierz Corninga Matrigela | Corning | 354234 | Ostateczne rozcieńczenie 1:100 |
| Countess Automatyczny Licznik Komórek | Invitrogen | - | |
| DMEM-F12 (500ml) | Thermofischer | 11320-074 | Nie ma |
| Czynnik wzrostu naskórka ludzki (EGF) | PeproTech | AF-100-15 | 20 ng/ml |
| FITC Mysz anty-ludzki CD44 | BD Pharmingen | 555478 | 1:100 |
| Greiner CELLSTAR 96-dołkowa mikropłyta do hodowli polistyrenowych z F-dnem/kominową studnią i mikro; Przezroczysty,, TC, sterylny, z pokrywką | Greiner | 655090 | |
| Heparyna | Thermofischer | A16198 | 5&mikro; g/ml |
| Hoechst 33258 | Sigma Aldrich (Merck) | 861405 | 1&mikro; g/ml |
| NanoShuttle-PL | Greiner | 657841 | 1,5 &mikro; L/10 000 komórek |
| Penicylina - Streptomycyna | Merck | P4333 | 1% |
Bibliografia
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
Przedruki i uprawnienia
