O padrão de glicosylation de um anticorpo determina seu desempenho clínico, assim persistem os esforços industriais e acadêmicos para controlar a glicosylation. Uma vez que as campanhas típicas de glicoengenia são tempo e trabalhoso, a geração de um protocolo rápido para caracterizar o impacto dos genes de glicosylação usando silenciamento transitório seria útil.
Artigo de método
Glicoengenia de anticorpos rápidos em células de ovário de hamster chinês
* These authors contributed equally
Neste artigo
Resumo
Resumo
Anticorpos monoclonais recombinantes ligam alvos moleculares específicos e, posteriormente, induzem uma resposta imune ou inibem a ligação de outros ligantes. No entanto, a funcionalidade de anticorpos monoclonais e a meia-vida podem ser reduzidas pelo tipo e distribuição da glicosylation específica do hospedeiro. Tentativas de produzir anticorpos superiores inspiraram o desenvolvimento de células produtoras geneticamente modificadas que sintetizam anticorpos otimizados por glico. A glicoengenia normalmente requer a geração de uma linha celular de nocaute ou knockin estável usando métodos como repetições palindrômicas curtas interespaçadas regularmente (CRISPR) associadas à proteína 9. Anticorpos monoclonais produzidos por células projetadas são então caracterizados usando métodos espectrométricos de massa para determinar se o glicópto desejado foi obtido. Essa estratégia é demorada, tecnicamente desafiadora, e requer especialistas. Portanto, uma estratégia alternativa que utilize protocolos simplificados para a detecção de glicoengenharia genética e glycan pode auxiliar esforços em direção a anticorpos ideais. Neste estudo de prova de conceito, uma célula de ovário chinês produtora de IgG serviu como um hospedeiro ideal para otimizar a glicoengenharia. O RNA de interferência curta direcionado ao gene Fut8 foi entregue às células de ovário de hamster chinês, e as mudanças resultantes na expressão proteica FUT8 foram quantificadas. Os resultados indicam que o knockdown por este método foi eficiente, levando a uma redução de ~60% no FUT8. A análise complementar do glicoprofile de anticorpos foi realizada utilizando-se uma técnica rápida, porém altamente sensível: eletroforese de gel capilar e detecção de fluorescência induzida por laser. Todos os experimentos de knockdown mostraram um aumento nos glucas afucosilados; no entanto, a maior mudança alcançada neste estudo foi de ~20%. Este protocolo simplifica os esforços de glicoengenharia, aproveitando-se em ferramentas de design de silico , reagentes de genes sintetizados comercialmente e ensaios de quantificação rápida que não requerem ampla experiência prévia. Como tal, a eficiência de tempo oferecida por este protocolo pode auxiliar as investigações sobre novos alvos genéticos.
Introdução
A glicossylação n-ligada é um processo enzimático pelo qual os moieties oligossacarídeos estão ligados a resíduos de Asn. Ao contrário da síntese de proteínas de novo, a síntese glican é uma reação não modelado que resulta em glicosylation heterogênea de proteínas. A estrutura, a composição e a distribuição dos glicos podem afetar a conformação e a função da proteína. De fato, a n-glicosylaation na região do fragmento cristalino (Fc) da imunoglobulina G (IgG) regula a eficácia terapêutica, a imunogenicidade e a meia-vida do anticorpo1. Como tal, o paradigma de qualidade por design (QbD) para o desenvolvimento de produtos de proteína bioterapêutica recombinantes identifica naturalmente a glicosylation como um atributo crítico de qualidade (CQA)2,3. As células mamíferas são frequentemente os sistemas de expressão preferidos, pois produzem inerentemente padrões de glicoseção semelhantes ao homem mais de perto do que bactérias, leveduras, insetos ou células vegetais. Além disso, as células de ovário de hamster chinês (CHO) são selecionadas em outras linhas de células de mamíferos porque são resistentes à infecção por vírus humanos, secretam produtos em títulos altos, e podem ser cultivadas em cultura de suspensão para altas densidades celulares viáveis4. Com relação à formação glican, as células de produção de murina não-CHO geram glicocanos imunogênicos (α(1-3)-ligados à galactose [α(1-3)-Gal] e ácido nglicolneuraminico [NeuGc]) que impingem o uso seguro de anticorpos monoclonais (mAbs)5. Esses benefícios fazem das células CHO o principal sistema de expressão, responsável pela produção de mais de 80% das novas bioterapêuticas entre 2014 e 20186. No entanto, a glicosylation independente de modelo é um mecanismo conservado que leva à bioterapêutica derivada do CHO com uma matriz de glicoforms.
As estratégias de desenvolvimento bioterapêutico visam controlar a heterogeneidade nas células CHO por engenharia genética. Alguns exemplos de literatura incluem o knockdown de sialidases (Neu1, Neu3)7, GDP-mannose 4,6-dehydratase (GMD) knockout8, e superexpressão de glicosyltransferases (GnTIII)9. Avanços na glicoengenaria são possíveis devido a uma combinação de recursos disponíveis publicamente, como o genoma CHO10, e o desenvolvimento contínuo de ferramentas de engenharia genética, como núcleos de efeitos semelhantes ao ativador de transcrição (TALENs), núcleos de dedo de zinco (ZFNs) e repetições palindrômicas curtas interespaçadas regularmente (CRISPR) (CRISPR-Cas9)11,12,13,14 . Essas ferramentas são tipicamente entregues às células CHO como DNA plasmídeo ou como complexos purificados de ribonucleoproteína (RNP). Por outro lado, a interferência de RNA (RNAi) é uma tecnologia de engenharia genética que, em sua forma mais simples, requer apenas a entrega de oligonucleotídeos de RNA (siRNA) de curto e curto purificado. Proteínas endógenas processam siRNA de dupla regência em fios únicos, e o complexo de silenciamento induzido por RNA (RISC), forma um complexo com siRNA para cortar sequências demRNA-alvo 15,16,17. O silenciamento genético através deste método é transitório devido à instabilidade do RNA, mas a investigação aqui em seu relatório aproveita esse recurso para auxiliar a triagem rápida.
A enzima modelo selecionada para o presente estudo, α1,6-fucosyltransferase (FUT8), produz N-glicanos com L-fucose α-1,6 núcleos ligados ao núcleo (Fuc). Esta modificação é um determinante primário da atividade de citotoxicidade celular dependente de anticorpos (ADCC), como evidenciado por estudos de anticorpos comerciais. Na ausência de fucosylation núcleo, Rituximab (anti-CD20 IgG1) aumenta o ADCC 50 vezes e aumenta o ADCC em Trastuzumab (anti-Her2 IgG1) melhorando a vinculação fcgRIIIa18,19. A fucosylação do núcleo é, portanto, considerada uma característica indesejável dos mAbs que justifica esforços para reverter esse fenótipo. Há exemplos de segmentação genética Fut8 bem sucedida usando siRNA com aumentos concomitantes no ADCC 20,21,22, embora esses exemplos ofereçam Fut8 siRNA codificado em DNA plasmídeo. Tais experimentos geram silenciamento genético estável, pois o DNA plasmídeo serve como modelo para a síntese de siRNA. Isso permite que as células reponham moléculas de siRNA que são degradadas por RNases intracelulares e fosfattases. Por outro lado, a entrega de siRNA sintético exógeno só permite o silenciamento de genes transitórios, pois o siRNA não pode ser reabastecido devido à falta de um modelo intracelular. Assim, os usuários devem considerar se os projetos experimentais são compatíveis com siRNA derivado ou sintético. Por exemplo, estudos focados na produção de pico de mAb, tipicamente o sexto dia da cultura23,24, podem optar por siRNA sintético que pode ser entregue às células poucos dias antes do pico de expressão. Os benefícios de uma abordagem transitória usando siRNA sintético incluem a capacidade de terceirizar a produção e o fato de que construções múltiplas de siRNA podem ser geradas em uma fração do tempo gasto para gerar construções em plasmídeos. Além disso, o siRNA sintético é eficaz, como evidenciado por exemplos de literatura de silenciamento genético Fut8 que são suficientes para reduzir a expressão proteica FUT825 e produzir IgGs afucosilados com maior ligação FCgRIIIa e ADCC26.
O sucesso deste protocolo de glicoengenia foi determinado pelo grau de glicosylation fc. Espectrometria de massa é normalmente o método de escolha para análises glicêmicas; no entanto, a eletroforese de gel capilar e a detecção de fluorescência induzida pelo laser (CGE-LIF) é perfeitamente agradável para resolver o glicófilo de IgGs purificados e tem a vantagem de maior rapidez e simplicidade. Os protocolos de espectrometria de massa devem combinar os métodos cromatográficos e de derivatização adequados, fontes de ionização e analisadores em massa 27,28,29. Além de exigir um especialista treinado, os protocolos de espectrometria de massa são longos, e a diversidade de métodos dificulta a comparação dos dados entre laboratórios com diferentes configurações. No contexto da biofarmacêutica, o CGE-LIF é um método sensível que pode fornecer detalhes suficientes de um glicoprofile de anticorpos e é facilmente escalável para métodos de alta produtividade. Para baixa abundância, misturas altamente complexas com glicoproteínas mal caracterizadas, as vantagens da espectrometria de massa podem permanecer. No entanto, as análises mAb de alta resolução e alta sensibilidade fornecidas pela análise N-glycan baseada em CGE-LIF servem como uma justificativa para testar esse método. Além disso, a preparação e análise da amostra estão completas em apenas algumas horase 30. Estudos recentes mostraram que cge-LIF pode ser usado para monitorar glicocanos derivados do plasma humano31, mouse32 e CHO IgGs33. Estes estudos destacam o uso de CGE-LIF para análise de amostras de alto rendimento e pequenos volumes amostrais.
O método CGE-LIF tem limitações que devem ser levadas em consideração. O custo é uma barreira significativa para o uso deste e de outros dispositivos para análise glican. No entanto, esses custos são típicos dentro do campo, e acredita-se que o CGE-LIF seja uma opção econômica34. Laboratórios com orçamentos menores podem achar mais prático alugar máquinas ou terceirizar análises de amostras. Outra consideração de qualquer método analítico é a repetibilidade. A avaliação da CGE-LIF foi realizada utilizando-se 48 réplicas da mesma amostra que foram avaliadas em dias diferentes. O desvio padrão relativo por capilar foi determinado para repetibilidade intrabatch e interbatch. Verificou-se que a comparação intrabatch das réplicas teve um desvio padrão relativo de 6,2%, indicando que o desempenho capilar não é uniforme. Além disso, uma comparação dos dados de entrelaçamento mostrou um desvio padrão relativo de 15,8%31, indicando que o desempenho capilar muda ao longo do tempo. As deficiências operacionais identificadas não podem ser aplicadas no presente estudo, que utiliza diferentes máquinas e reagentes proprietários. Se os usuários pretendem desenvolver um protocolo interno, valeria a pena considerar o estudo de Ruhaak et al. 31, que avaliou cuidadosamente os reagentes para CGE-LIF. Como tal, os reagentes para injeção amostral (Hi-Di Formamide e DMSO), rotulagem glica (NaBH3CN ou 2-picolina borane)31, e outros foram otimizados.
Este estudo apresenta um protocolo de glicoengenia eficiente que combina a rapidez do RNAi direto com a análise glicêmica a jusante. A metodologia é ilustrada usando o gene Fut8 como alvo pelas razões descritas acima.
Protocolo
1. Design e reconstituição do DsiRNA
- Use Safari, Firefox ou Microsoft Edge para acessar o site do IDT (https://eu.idtdna.com). Na página inicial, selecione a guia Produtos e Serviços seguido de interferência do RNA. Para gerar construções personalizadas de dicer-substratos (DsiRNA) visando o gene Fut8 , selecione a ferramenta Design seguida pela guia Gerar DsiRNA personalizado .
- Digite o Número de Adesão Fut8 ou digite manualmente a sequência genética para começar. Neste estudo, as sequências propostas de Fut8 de entradas "CHO-K1" e "Hamster Chinês" foram obtidas de https://chogenome.org e utilizadas para gerar DsiRNA. A maioria dos genes tem várias variantes de transcrição, e é importante verificar se o DsiRNA estaria ativo em todas as variantes relatadas no conjunto atual.
- Selecione a opção de realizar uma pesquisa "Manual BLAST", pois o genoma da célula CHO não está disponível atualmente como um "genoma de referência" no site do IDT. Esta etapa busca correspondências entre sequências personalizadas de DsiRNA e o genoma de interesse.
- Clique em Pesquisar para gerar sequências de DsiRNA.
- Por sua vez, avalie a especificidade de cada DsiRNA usando a função "Manual BLAST" com o id fiscal:10029 (linhas de células CHO e hamster chinês). Os resultados de cobertura de consulta indicam que as construções de DsiRNA correspondem ao Fut8 (incluindo variantes de transcrição fut8 ) a 100%, enquanto a complementaridade contra alvos não intencionais é ≤76%35.
- Verifique se o DsiRNA tem como alvo especificamente o Fut8 para garantir que o conteúdo gc esteja entre 30%-50%. Um baixo teor de GC está associado a uma ligação fraca e inespecífica, enquanto um alto teor de GC inibe o desenrolar e o carregamento do siRNA no complexo RISC36.
- Selecione três DsiRNA para uso em estudos de transfecção (Tabela 1), cada um visando uma localização diferente do gene Fut8 . Compre um DsiRNA não direcionado pré-direcionado ou mexido do IDT para experimentos de controle.
- Ao chegar, centrifugar o DsiRNA a 13.300 x g por 1 min para pelota antes de abrir o tubo. Reconstitua cada DsiRNA liofilizado no buffer duplex sem nuclease (fornecido pelo IDT) para uma solução de estoque de 100 μM. Por exemplo, adicione 20 μL de buffer a 2 nmol de DsiRNA para obter um estoque de 100 μM.
- Para garantir a mistura suficiente, incubar as soluções de estoque à temperatura ambiente por 30 minutos enquanto treme suavemente em um agitador orbital (órbita de 50 rpm, 16 mm).
- Crie uma mistura mestre combinando 20 μL de cada construção de DsiRNA que tem como alvo Fut8 (100 μM de cada DsiRNA). Prepare as alíquotas e armazene a −20 °C.
| Alvo do DsiRNA | Seqüenciar | GC (%) | ||
| Estrutura A | 5' GAGAAGAUAGAAACAGUCAAAUACC 3' | 36% | ||
| 5' GGUAUUUGACUGUUUCUAUUCUCUCUC 3' | ||||
| Estrutura B | 5' AGAAUGAGAAUGGAUUUUUUCCTT 3' | 32% | ||
| 5' AAGGAAAAAACAUCCAUUCUCAUUCUGA 3' | ||||
| Estrutura C | 5' AGAAGAUAGAAACAGUCAAAUAC 3' | 32% | ||
| 5' GUAUUUGACUGUUUCUAUCUUCUCUCG 3' | ||||
Mesa 1. Sequências de DsiRNA usadas para knockdown fut8. Sequências geradas pelo IDT que visam Fut8 em hamster chinês e genomas celulares CHO K1. As sequências de sentido e antissamo para cada construção são mostradas (respectivamente), e o conteúdo GC de cada estrutura é exibido. Reimpresso de Kotidis et al. 52.
2. Transfecção de DsiRNA
- Reviva células CHO expressando um anticorpo monoclonal IgG37 usando condições de cultura adequadas para a linha de interesse celular.
NOTA: As células utilizadas neste estudo foram geradas utilizando-se o sistema de sitese glutamina (GS), onde o GS endógeno é inibido por sulfoximina de L-methionina (MSX) para melhorar a seleção de raros clones de alta produção. Portanto, use somente MSX se necessário pela linha de celular escolhida.- Descongele um frasco de células por 2-3 minutos em um banho de água definido para 37 °C. Limpe o exterior do frasco com 70% (v/v) de etanol e continue todo o trabalho em um armário de biossegurança classe II.
- Transfira a suspensão celular para um tubo centrífuga de 15 mL contendo 9 mL de meio pré-armado apropriado para a linha celular de escolha. Pelota as células por centrifugação a 100 x g por 5 min.
- Remova e descarte cuidadosamente o meio sem perturbar a pelota celular. Em seguida, resuspenque a pelota de célula em 10 mL de meio pré-armado e tome uma alíquota para contar.
- Colora as células com azul Trypan se contar com um hemótmetro ou uma mancha apropriada para distinguir células vivas/mortas ao usar um contador automático de células.
- Seguindo qualquer método de enumeração, transfira um volume apropriado de suspensão celular para um frasco de shake Erlenmeyer de 125 mL a uma densidade celular viável de 3 x 10⁵ células·mL-1 em 30 mL de médio (com suplementação opcional de 50 μM MSX).
- Transfira as células para uma incubadora a 36,5 °C, 5% de CO2 e coloque em uma plataforma de agitação a 150 rpm (órbita de 16 mm).
- Células de passagem a cada 3-4 dias a uma densidade de semeadura de 2 x 10⁵ células·mL-1 e um volume de trabalho de 50 mL em um frasco de 250 mL Erlenmeyer shake. Se estiver usando MSX, interrompa a suplementação após a primeira passagem.
- Células de passagem 2x além de descongelamento.
- Transfecção
- Avalie a densidade celular e garanta que a viabilidade celular seja superior a 90%.
- Limpe cuidadosamente o armário de biossegurança e todos os equipamentos com 70% (v/v) etanol e uma solução inibidora RNase para evitar contaminação.
- Células de pelota a 100 x g por 5 min e resuspend em médio pré-warmed para uma densidade celular viável de 5 x 10⁶ células·mL-1.
- Transfira 8 μL (equivalente a 1 μM) da mistura mestre dsiRNA ou controle para um cuvette de eletroporação estéril (0,4 cm). Em seguida, transfira 800 μL da suspensão celular (equivalente a 4 x 10⁶ células) para o mesmo cuvette e certifique-se de que ambos os componentes estejam misturados.
- Entregar as seguintes condições de pulso: 1200 V, 0,1 ms, forma de onda quadrada.
- Transfira a suspensão celular do cuvette para um poço de uma placa de 6 poços, tomando cuidado para evitar material semelhante à espuma. Recupere as células da incubadora (36,5 °C, 5% DE CO2) sem tremer por 10 minutos.
- Adicione 800 μL de mídia pré-armada para fazer um volume final de 1,6 mL por poço e retornar as células transfeinadas à incubadora para crescimento (36,5 °C, 5% DE CO2) enquanto treme a 150 rpm (órbita de 16 mm).
- Colher os sobrenantes e células a 48 h após a transfecção.
Ponto de parada: A cultura celular supernante pode ser mantida a -20 °C; no entanto, é aconselhável que a lise celular seja realizada imediatamente após a coleta de pelotas celulares para evitar a degradação da proteína. Supernantes são usados no Passo 3, Passo 4 e Passo 5, enquanto as pelotas de célula são usadas no Passo 6.
3. Quantificação e purificação do IgG
- Meça a concentração de IgG usando interferometria biocamjadora ou outro método de escolha.
- Proteína hidratante Um biosensor pontas em diluente amostra por 10-30 min. Enquanto isso, transfira as suspensões celulares para tubos de centrífugas de 15 mL e células de pelota a 100 x g por 5 min ou remova as células por filtragem através de um filtro de nitrocelulose de 0,45 μm.
- Sem perturbar a pelota, transfira cuidadosamente o supernanato isolado contendo IgG em um tubo de centrífuga limpo.
- Use as seguintes configurações para interferometria biocameira: velocidade do agitador, 2200 rpm; tempo de execução, 60 s. Esses parâmetros serão utilizados para medir todas as amostras e controles.
- Uma vez hidratadas as pontas do biosensor, crie uma curva padrão usando um padrão IgG (4 μL de cada concentração).
- Quantitate concentrações amostrais carregando 4 μL do supernatante celular. Limpe o aparelho com lenços sem fiapos entre cada amostra.
- Ligue a curva padrão às amostras desconhecidas para interpolar a taxa de ligação das amostras desconhecidas. Salve os dados e exporte como um arquivo csv ou PDF.
- Purificação do IgG
- Prepare o tampão de elução contendo 0,2 M de gliccina (pH 2.5) e esterilize passando por um filtro de 0,22 μm.
- Filtrar 1 mL do supernanato isolado à temperatura ambiente usando tubos de filtro de microcentrifuuagem de 0,22 μm até que todo o supernante flua.
- Pelota 150-200 μL de proteína Agarose contas em tubos de centrífugas de 1,5 mL a 100 x g por 3 min e descartar o supernante. Em seguida, lave a proteína As contas A com 150-200 μL de cultura celular média e reincidente centrifugação. Descarte o supernatante.
- Resuspenque a proteína equilibrada Contas A com 1 mL dos supernantes preparados a partir do Passo 3.2.3. e carregar em um tubo de polipropileno de 1 mL. Fixar o tubo de polipropileno a uma batedeira rotativa (órbita de 15 mm) e gire a 30 rpm por 60-90 min em temperatura ambiente ou durante a noite a 4 °C.
- Após a incubação ser concluída, colete o fluxo e lave as contas com 1 mL de PBS 1x para remover quaisquer proteínas não ligadas. Recolhe a fração de lavagem também.
- Elute IgG da proteína A contas adicionando 3 mL de tampão de eluição à coluna de polipropileno. Colete frações sequenciais que drenam da coluna (500 μL cada) em tubos rotulados.
- Opcional: Se o anticorpo purificado for armazenado, neutralize o tampão de elução adicionando 25 μL de 1 M Tris pH 9.5. Pule esta etapa se o anticorpo for processado imediatamente via troca de buffer, etc.
NOTA: Todas as partes da purificação (fluxo, lavagens e todas as frações de eluição) devem ser mantidas garantindo que a proteína alvo não seja perdida. Essas amostras também podem ajudar durante a solução de problemas se a purificação não for bem sucedida. - Use a primeira elução (elução A) para processamento a jusante, mas mantenha todas as outras frações caso sejam necessárias no futuro.
4. Troca de tampão e concentração de amostras
- Troque o buffer de elução IgG com 1x PBS.
- Elução de carga A em um concentrador centrífugo de corte de peso molecular de 3 kDa. Consulte o guia do fabricante ao selecionar uma coluna MWCO apropriada. Neste experimento, um tamanho menor de poros garante a retenção máxima de proteína secretada, mas também aumenta o tempo de centrifugação.
- Centrifugar a 13.300 x g para 40-50 min a 4 °C. A centrifugação é completa uma vez que o volume residual é igual ou inferior a 50 μL.
- Descarte o fluxo e adicione 500 μL de PBS pré-1x para diluir o sobrenante residual. Centrifugar a amostra novamente usando as mesmas condições (13.300 x g para 40-50 min a 4 °C) até 50 μL de restos residuais sobrenantes.
- Adicione 500 μL de pbs pré-1x para diluir o sobrenante residual e repetir novamente o processo de centrifugação para obter uma diluição de 100x do sobrenante.
- Concentre o supernatante a uma concentração final de ~2,5 g· L-1 em 40 μL ou menos para garantir compatibilidade com o método de análise glicano.
NOTA: 100 μg precisa ser carregado para análise glican.
Ponto de parada: O IgG concentrado (em 1x PBS) pode ser armazenado a −20 °C e descongelado antes da análise glican.
5. Análise glycan
- Realize a análise glican usando eletroforese capilar de gel de acordo com as instruções do fabricante.
- Transfira 200 μL da solução de contas magnéticas para um tubo PCR de 0,2 mL e coloque no suporte magnético para separar as contas do supernante.
- Remova cuidadosamente o supernatante e remova os tubos do suporte magnético. Adicione a amostra de proteína purificada e o vórtice para garantir a mistura completa.
- Adicione o tampão de desnaturação (fornecido) ao tubo de amostra e incubar por 8 min a 60 °C. Mantenha os tubos de amostra abertos para um desempenho de reação ideal.
- Adicione PNGase F (500 unidades por amostra) e incubar por 20 min a 60 °C para cortar glycans dos anticorpos purificados.
- Após a liberação de N-glicanos, feche o tubo de amostra e o vórtice. Adicione acetonitrilo, vórtice e incubar à temperatura ambiente por 1 min.
- Coloque os tubos de amostra no suporte magnético para separar as contas da solução. Use uma pipeta para remover cuidadosamente o supernatante sem tocar nas contas.
- Em um capô de fumaça, adicione a solução de rotulagem glicano contendo um fluoróforo à amostra. Vórtice para garantir mistura suficiente e incubação a 60 °C por 20 min (tampas abertas).
- Lave a amostra 3x em acetonitrila para remover o excesso de corante. Em seguida, elute os glicocanos rotulados em água DDI (fornecido).
- Coloque o tubo de amostra no suporte magnético para separar as contas do supernatante contendo glícanos purificados e rotulados.
- Prepare e carregue o padrão da escada de glicose, os padrões de suporte e amostras nas posições da bandeja designadas. Execute o protocolo de análise glicano.
- Use o software apropriado para analisar e identificar os glicanos presentes na amostra.
NOTA: Certifique-se de que a temperatura no bloco de calor é precisa para uma incubação eficiente.
6. Mancha ocidental
- Quantifique a eficiência de knockdown usando a análise de manchas ocidentais com um anticorpo anti-α-1,6-fucosyltransferase. Gels de poliacrilamida e receitas tampão estão disponíveis em fornecedores comerciais38,39.
- A 48 h pós transfecção, conte as células usando um hemótmetro ou um contador celular automatizado e determine o volume de suspensão celular equivalente a 5 x 10⁶ células.
- Transfira o volume adequado de suspensão celular de cada condição experimental para um tubo de centrífuga estéril de 1,5 mL e pelota a 13.200 x g por 10 min a 4 °C. Descarte o supernatante.
- Lise as células com 200 μL de tampão de lise (adequado para a extração de proteínas de células mamíferas) contendo coquetel inibidor de 1% v/v protease à temperatura ambiente por 10 minutos. Agite a mistura suavemente durante a incubação (50 rpm, órbita de 16 mm).
- Para remover os detritos celulares, centrifugar o lysate a 13.200 x g por 10 min e, em seguida, transferir o lysate limpo para um tubo estéril de 1,5 mL.
- Meça a concentração proteica de cada liseto usando um espectotômetro a 280 nm. Posteriormente, prepare alíquotas de cada amostra ajustada para ter a mesma concentração proteica.
- Desnaturar as amostras de proteína por incubação a 100 °C por 10-15 min em corante de carga de amostra DTT-SDS; a concentração de corante final é 1x.
- Carregue 15 μL das amostras desnaturadas e 5 μL de escada de proteína presuníada em um gel SDS-PAGE com 12,5% de resolução de gel para separação eficiente. Execute as amostras a 25 mA por gel por 90 min ou até que a frente de corante atinja a extremidade do gel.
- Remova cuidadosamente o gel do e incubar em 1x tampão de transferência contendo metanol.
- Prepare o sistema de transferência molhada e ative uma membrana PVDF com metanol. Monte a membrana gel e PVDF para transferência molhada, coloque um bloco de gelo no tanque de transferência e submerse todo o tanque em gelo para garantir que as condições de transferência permaneçam frias. Corra a 350 mA/100 V por 60 min.
- Bloqueie a membrana incubando em uma solução de bloqueio por 30 minutos à temperatura ambiente enquanto treme suavemente em um agitador orbital a 50 rpm (órbita de 16 mm).
- Enxágüe a membrana com água estéril por 5 minutos e repita. Em seguida, use um bisturi limpo para cortar cuidadosamente a membrana horizontalmente em ~50 kDa, usando a escada de proteína visível como guia.
- Incubar a membrana que abriga proteínas superiores a 50 kDa com anticorpo anti-α-1,6-fucosyltransferase às 1:1000 em um tampão diluente de anticorpos. Incubar a membrana com proteínas imobilizadas inferiores a 50 kDa com anti-GAPDH a 1:10.000 em tampão diluído. As membranas podem ser incubadas por 1h à temperatura ambiente ou durante a noite a 4 °C.
- Lave as membranas por 5 minutos (x3) e, em seguida, incubar com um anticorpo secundário apropriado por pelo menos 30 minutos à temperatura ambiente.
- Faça lavagens 3x com um tampão de lavagem por 5 minutos, seguido de lavagens 3x com água. Em seguida, desenvolva a membrana com um substrato cromogênico (ou reagente de detecção apropriado) até que as bandas apareçam (1-60 min).
- Enxágüe a membrana 2x com água e deixe secar. Capture uma imagem da membrana e realize a análise densitométrica40.
- Para calcular a expressão relativa da proteína em cada amostra, calcule primeiro a razão do sinal GAPDH em amostras. Este é o fator de normalização de cada amostra que corrige para discrepâncias no carregamento amostral.
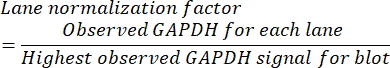
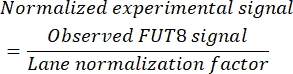
- Divida a intensidade do sinal FUT8 (para cada faixa) pelo fator de normalização da pista correspondente para obter a expressão relativa da proteína FUT8.
Resultados
A análise da mancha ocidental mostrou redução da expressão proteica FUT8 em células transfectadas com uma mistura de três construções de DsiRNA Fut8 . Em amostras de controle transfectadas com DsiRNA não direcionado, FUT8 apareceu como uma banda dupla a ~65 e 70 kDa. Uma vez que o peso molecular previsto de FUT8 é de 66 kDa, uma redução na intensidade do sinal da faixa de menor peso molecular é indicativa de silenciamento genético. Para confirmar e quantificar o silenciamento genético, o nível de proteína FUT8 foi normalizado para o nível relativo de proteína GAPDH. A análise da mancha ocidental detectou duas bandas para GAPDH a ~37 e 35 kDa. A faixa de peso molecular mais elevada corresponde ao tamanho da proteína prevista e é, portanto, usada em cálculos de normalização. Quando normalizada em relação aos níveis de proteína GAPDH, a expressão proteica FUT8 foi reduzida em até 60% (Figura 1).
De acordo com a observação do knockdown genético a 48 h pós transfecção, amostras de mAb correspondentes foram processadas para análise pela CGE-LIF. As estruturas glican de células derrubadas mostraram uma diminuição na fucosylation. Essa tendência foi mais acentuada em estruturas agalactosylated (G0F) e observada em menor grau nas estruturas galactosylated (G1F, G1F' e G2F). A partir deste conjunto de dados, a fucosylation total do núcleo IgG diminuiu para ~75%, abaixo da fucosylation núcleo de ~95% observada para a condição de controle negativo (Figura 2). Uma maior redução na fucosylation do núcleo foi antecipada dada a redução de ~60% nos níveis de proteína FUT8. Após a reflexão, destaca-se que o glicoprofile representa mAbs glicosylated que se acumularam ao longo de um período de 48 h desde a transfecção, enquanto o silenciamento genético representa níveis de proteína presentes apenas no momento da colheita.
Um novo escrutínio deste método de knockdown envolveu a variação da concentração de DsiRNA, tempo de colheita e condições de eletroporação. Cada fator foi sondado individualmente para determinar sua relevância. O impacto das condições de pulso de eletroporação na fucosylation do núcleo e na viabilidade celular é capturado nos experimentos B, C, D e E. Esses resultados demonstram uma redução dupla na fucosylação do núcleo por eletroporação usando dois pulsos de onda quadrada (Experimento C) em comparação com um único pulso de onda quadrada (Experimento B), sem diferenças significativas na viabilidade celular (Tabela 2). A condição de eletroporação e3 (Experimento D) levou à menor viabilidade celular (~90%) e rendimento de IgG neste ponto de tempo. No entanto, as células que sobreviveram ao evento de eletroporação foram moderadamente transfetídicas, como evidenciado pela redução de ~10% na fucosylation do núcleo (Tabela 2). Curiosamente, o Experimento D utilizou condições de eletroporação que proporcionavam a maior redução na fucosylation do núcleo (14,7%), mas que eram evidentemente prejudiciais à viabilidade celular (91%-93% de viabilidade). Este conjunto limitado de experimentos ilustra a necessidade de determinar configurações de eletroporação que permitem a permeabilização suficiente da membrana celular sem causar danos irrevogáveis. Também é interessante notar o papel da concentração de siRNA e do tempo de colheita na fucosylation do núcleo. No geral, o aumento da concentração de siRNA tem maior influência na fucosylation do núcleo do que o aumento do tempo de colheita (Experimentos B, F, G versus Experimentos A, B, H). Em experimentos futuros, seria interessante titular as concentrações de siRNA entregues pelo método de eletroporação e2.
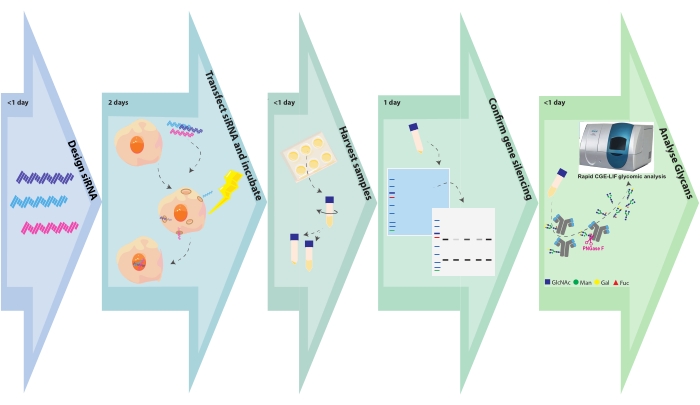
Figura 1. Fluxo experimental. As etapas de glicoengenia e análise de amostras são retratadas com o tempo associado necessário para cada etapa. O projeto siRNA leva algumas horas, dependendo do número de alvos genéticos ou construções por alvo genético. A transfecção celular CHO com siRNA é completa em poucas horas, e as células transformadas são deixadas para crescer por 48 h. Pelotas de células e supernacantes são colhidas em poucas horas. As pelotas celulares são liseadas, e as proteínas intracelulares são separadas em uma PÁGINA SDS e, posteriormente, borradas e sondadas com anticorpos contra o gene alvo. Os glicanos são cortados de anticorpos purificados e analisados pela CGE-LIF. Esses ensaios podem exigir 1 dia cada. Clique aqui para ver uma versão maior desta figura.
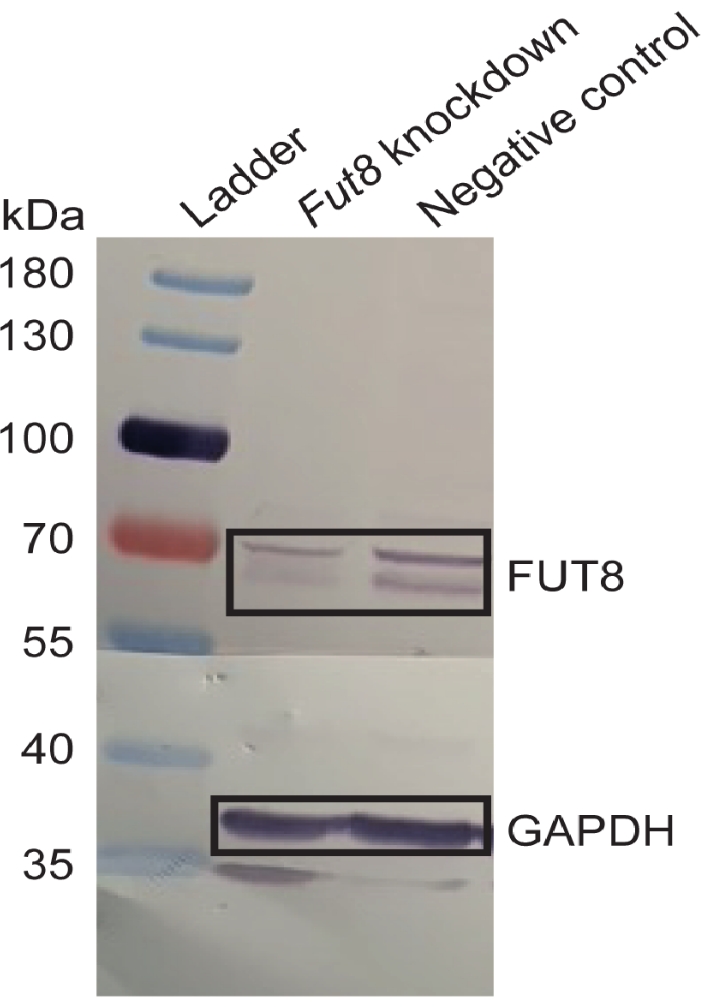
Figura 2. Confirmação da interferência do RNA. Detecção de manchas ocidentais de níveis de proteína de α-1,6-fucosyltransferase (FUT8) em amostras tratadas com Fut8 ou controle não-direcionado DsiRNA. Bandas correspondentes ao FUT8 são mais intensas no controle do que as amostras de knockdown fut8. O nível de proteína GAPDH também foi avaliado para normalizar a expressão genética alvo. Todas as amostras foram colhidas do Experimento G (ver Tabela 2). Reimpresso de Kotidis et al. 52. Clique aqui para ver uma versão maior desta figura.
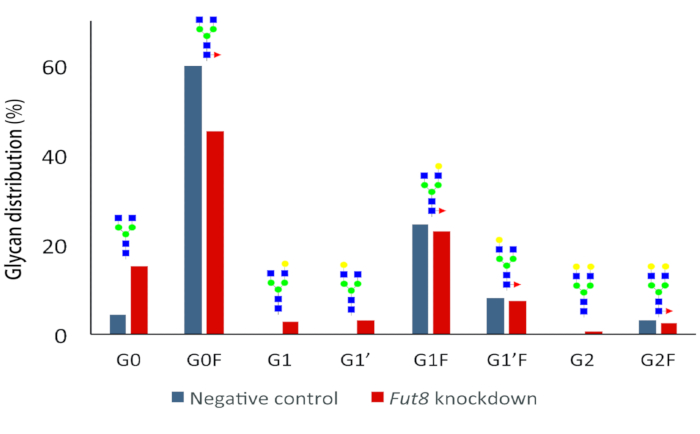
Figura 3. Efeito de knockdown Fut8 na glicosylation IgG cumulativa em 48 h. Uma mudança na distribuição de glycan é detectada em amostras de knockdown. Em particular, a abundância relativa das principais estruturas de fucosilto de núcleo (G0F) é reduzida enquanto as espécies afucosylated são aumentadas no experimento knockdown. As medições foram realizadas a partir de amostras do Experimento G (ver Tabela 2). Os triplicados biológicos realizados para cada experimento foram misturados após a colheita para reduzir a carga de análise a jusante. Reimpresso de Kotidis et al. 52. Clique aqui para ver uma versão maior desta figura.
| Nome do experimento | Método de eletroporação | Concentração de DsiRNA (nΜ) | Tempo de colheita (h) | Viabilidade (%) | XV (106 células·mL-1) | Título de IgG (mg· L-1) | Diferença na fucosylation do núcleo (%) | ||||||
| ExpA_Negative | e1 | 500 | 24 | 98.3 | 4.71 | 122.5 | - | ||||||
| ExpA_Knockdown | e1 | 500 | 24 | 98.3 | 4.9 | 110.3 | 4.08 | ||||||
| ExpB_Negative | e1 | 500 | 48 | 95.6 | 9.55 | 453.3 | - | ||||||
| ExpB_Knockdown | e1 | 500 | 48 | 96.7 | 9.61 | 469 | 5.38 | ||||||
| ExpC_Negative | e2 | 500 | 48 | 96.3 | 9.91 | 449.3 | - | ||||||
| ExpC_Knockdown | e2 | 500 | 48 | 96.7 | 11 | 454.6 | 11.42 | ||||||
| ExpD_Negative | e3 | 500 | 48 | 90.6 | 6.25 | 318.5 | - | ||||||
| ExpD_Knockdown | e3 | 500 | 48 | 89.1 | 6.09 | 311.85 | 9.71 | ||||||
| ExpE_Negative | e4 | 500 | 48 | 91.1 | 7.2 | 380.3 | - | ||||||
| ExpE_Knockdown | e4 | 500 | 48 | 93.3 | 7.79 | 422.8 | 14.7 | ||||||
| ExpF_Negative | e1 | 750 | 48 | 96.2 | 9.7 | 501 | - | ||||||
| ExpF_Knockdown | e1 | 750 | 48 | 95.7 | 9.76 | 504.6 | 9.9 | ||||||
| ExpG_Negative | e1 | 1000 | 48 | 96.1 | 11.1 | 422.6 | - | ||||||
| ExpG_Knockdown | e1 | 1000 | 48 | 95.9 | 9.73 | 499.3 | 17.26 | ||||||
| ExpH_Negative | e1 | 500 | 72 | 94.4 | 14.3 | 925.8 | - | ||||||
| ExpH_Knockdown | e1 | 500 | 72 | 95 | 13.5 | 1018.4 | 7.37 | ||||||
Mesa 2. Otimização de transfecção. Modificações iterativas do método de eletroporação, concentração de DsiRNA e tempo de colheita levaram a mudanças na viabilidade celular, densidade celular viável, títulor IgG na época da colheita e diferenças na fucosylation do núcleo. Cada experimento comparou o knockdown e o respectivo controle negativo para determinar se a modificação produz o efeito desejado (ou seja, uma diminuição na fucosylation). As configurações de eletroporação foram as seguintes: e1: 1200 V, 0,1 ms, forma de onda quadrada; e2: 1200 V, 2x 0.1 ms, 5 s entre pulsos, forma de onda quadrada; e3: 150 V, 20 ms, forma de onda quadrada; e4: 250 V, 500 μF, decadência exponencial. Reimpresso de Kotidis et al. 52.
Discussão
As vias de glicoseção envolvem uma complexa rede metabólica de enzimas e proteínas acessórias. Dissecar a função dos constituintes da via é assustador se depender apenas de estratégias convencionais de engenharia genética. Uma abordagem alternativa é selecionar preliminarmente os membros de uma via usando um ensaio transitório de perda de função. Para isso, foram combinados dois protocolos rápidos, rnai e detecção de CGE-LIF, para criar uma maneira mais eficiente de caracterizar genes de glicossylation. O método descrito requer 5-7 dias para ser concluído em comparação com métodos convencionais que potencialmente levam várias semanas para serem concluídos. Além disso, ambientes de pesquisa com recursos de automação poderiam explorar esse método para selecionar mais candidatos a genes do que viáveis com o manuseio manual.
O sucesso de uma campanha transitória de glicoengenia depende em grande parte do design do siRNA. Os designs personalizados de DsiRNA devem seguir as regras previamente descritas ou, para facilitar, os usuários podem optar por sequências pré-assinadas disponíveis comercialmente. Como outras estratégias de modificação genética, a RNAi tem potencial para efeitos fora do alvo. Portanto, os usuários são encorajados a avaliar a segmentação genética não intencional por meio de métodos computacionais41. Escolhas experimentais de design também podem ajudar a limitar os efeitos fora do alvo. Kittler et al. mostraram que a entrega multiplexada do siRNA levou a uma redução nos efeitos fora da meta42. Embora isso pareça contra-intuitivo, sugere-se que uma mistura mestra reduza a concentração de cada construção de siRNA, limitando assim a oportunidade de silenciamento genético fora do alvo. Outro benefício é que a transfecção simultânea de estruturas de siRNA que visam o mesmo gene aumenta a probabilidade de sucesso rnAi. O uso de uma mistura mestra também garante consistência entre amostras e réplicas e acelera o processo de transfecção. Seguindo uma tela inicial de construções de siRNA mistas, outro experimento pode ser realizado usando construções individuais para verificar a eficiência rnAi de cada sequência. Neste e em outros estudos de knockdown, até três siRNA foram agrupados e entregues às células 43,44,45. No entanto, pode ser desejável testar mais de três siRNA simultaneamente para atingir eficientemente um único gene ou para atingir vários genes. De fato, um estudo demonstrou silenciamento mediado por siRNA multiplexado de até seis genes em níveis comparáveis ao silenciamento de genes individuais46. No entanto, mais estudos são necessários para determinar o número máximo de construções de siRNA que podem ser usados em um pool sem comprometer a eficiência de silenciamento. A estratégia multiplex foi proposta por Martin et al. para melhorar o ritmo dos experimentos de triagem da biblioteca RNAi46, e um conceito semelhante pode ser útil para exibir genes de glicoslação.
O protocolo aqui descrito serve como uma prova de conceito com a expectativa de que experimentos subsequentes serão realizados para validar outros genes de glicosylation. Novos genes de interesse podem ser descaracterizados ou menos populares que o Fut8, e anticorpos primários para detectar silenciamento genético podem ser pobres ou indisponíveis. Neste cenário, métodos alternativos como o RT-PCR podem ser usados para quantificar o silenciamento genético47, mas deve-se notar que o RT-PCR detecta mRNA em vez de proteína. Quando anticorpos para manchas ocidentais estão disponíveis, um problema comum é a má detecção ou a presença de bandas não específicas. Guias de solução de problemas para ajudar os usuários a resolver problemas comuns estão disponíveis, e estes tendem a incluir uma série de soluções, como titulação primária de anticorpos, bloqueio alternativo e condições de detecção48,49. Neste estudo, FUT8 apareceu inesperadamente como uma banda dupla a ~65 e ~70 kDa. É possível que a banda ~70 kDa represente glicosylated FUT8. Evidências de literatura de linhas celulares humanas descrevem glicosylation ligado a O em Thr 564 50,51, um local que é conservado em hamster chinês, e sequências CHO K1 FUT8.
Como mencionado anteriormente, as vias de glicosylation muitas vezes envolvem uma complexa variedade de enzimas. O protocolo atual foi desenvolvido, otimizado e demonstrado usando uma reação de glicossylation monogênica controlada pelo Fut8. Portanto, estudos adicionais são necessários para confirmar a robustez deste método quando o gene alvo codifica uma enzima com cinética e níveis de expressão alternativos ou uma via regulada por isoenzymes com funções redundantes.
Tomada em conjunto, a capacidade de silenciar rapidamente genes e detectar glicoprofiles IgG modificados é uma ferramenta útil no esforço para anticorpos glicomotores personalizados. Insights de estudos similares de curto prazo podem ser aplicados para gerar células glicosenhinaveis estáveis para uso em ensaios de longo prazo, como cultura em lote alimentado. Fora do contexto farmacêutico, esse método contribui para o estudo da biologia glican e destaca a importante função dos glicanos no desenvolvimento, saúde e doenças.
Divulgações
Os autores não têm nada a revelar.
Agradecimentos
PK agradece ao Departamento de Engenharia Química, Imperial College London, por sua bolsa de estudos. RD agradece ao Conselho de Pesquisa em Biotecnologia e Ciências Biológicas do Reino Unido por sua adufação. O MM é financiado pelo Conselho de Pesquisa em Biotecnologia e Ciências Biológicas do Reino Unido (Referência de concessão: BB/S006206/1). A IAG agradece ao Conselho de Pesquisa Irlandês (Bolsa Nº. GOIPG/2017/1049) e CONACyT (Bolsa nº 438330).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Software de 32 quilates | SCIEX | entre em contato com o fabricante | Software para aquisição e análise de dados de glicanos usando o protocolo de análise Fast Glycan e método de separação. |
| Acetonitrila, HPLC grau | Sigma Aldrich | 34851 | Solvente. |
| Anticorpo anti-FUT8 | AbCam | ab198741 | Coelho policlonal para Fut8. Use este anticorpo para quantificar a expressão da proteína Fut8; substitua este anticorpo se estiver usando siRNA direcionado a um gene diferente. |
| Anticorpo anti-GAPDH | AbCam | ab181602 | Coelho monoclonal para GAPDH. Existem genes alternativos de limpeza e podem ser preferidos pelo usuário. |
| Espectrofotômetro BioDrop | Biochrom | 80 3006 55 | Instrumento usado para quantificar a concentração de proteínas. |
| BLItz | ForteBio | 45 5000 | Instrumento. Sistema de Análise de Proteínas Sem Marcador. |
| MARCA Hemocitômetro | Sigma Alrich | BR717810 | Dispositivo de câmara de contagem |
| Cartucho capilar | SCIEX | A55625 | Cartucho capilar pré-montado com janela (30 cm de comprimento total, 375 µ m diâmetro externo (OD), x 50 µ m diâmetro interno (i.d). |
| Análise de glicanos C100HT— eletroforese capilar | SCIEX | contato fabricante | Instrumento de eletroforese em gel capilar, o instrumento CESI 8000 Plus agora é usado. |
| CD CHO Medium | Thermo Fisher Scientific | 10743029 | Substitua-o por um meio de cultura apropriado para a linha celular de sua escolha. |
| Tubos de centrífuga, 15 mL | Greiner Bio | 188261 | Tubo de polipropileno estéril. |
| Tubos de centrífuga, 50 mL | Greiner Bio | 227270 | Tubo de polipropileno estéril. |
| CHO IgG | MedImmune | Gift | Células de ovário de hamster chinês expressando um anticorpo monoclonal IgG (CHO T127). Criado usando o sistema GS. |
| A solução salina tamponada com fosfato de Dulbecco (DPBS) | Gibco | 14190144 | 1x PBS, sem cálcio ou magnésio. |
| Frascos Erlenmeyer com tampa de ventilação, 125 mL | Corning | 431143 | Substitua-o por um recipiente de cultura adequado para o cultivo da linhagem celular de sua escolha. |
| Frascos Erlenmeyer com tampa de ventilação, 250 mL | Corning | 431144 | Substitua-o por um recipiente de cultura adequado para o cultivo da linhagem celular de sua escolha. |
| Kit de Rotulagem e Análise Rápida de Glicanos | SCIEX | B94499PTO | Rotula N-glicanos com APTS e, em seguida, usa um sistema de limpeza baseado em esferas magnéticas para remover o excesso de APTS. |
| Fut8 DsiRNA | IDT | Personalizado | DsiRNA personalizado visando Fut8. |
| Cuvetes Gene Pulsser, 0,4 cm | Bio-Rad | 1652088 | Cubeta de eletroporação. |
| Gene Pulser Xcell Sistema Eucariótico | Bio-Rad | 165 2661 | Instrumento. Unidade principal Xcell com Extensor de Capacitância (CE) Mocdule e ShockPod. |
| Membrana Immobilon-FL PVDF Membrana | de transferência Merck-Millipore | IPFL00010 | Immunoblot, fundo baixo. |
| L-Metionina sulfoximina (MSX) | Sigma Aldrich | M5379 | Necessário apenas para linhagens celulares CHO usando o sistema de seleção glutamina sintetase (GS). |
| Kimwipes | Thermo Fisher Scientific | 10623111 | Toalhetes de baixa fiapos, alta absorção e quimicamente inertes. |
| 78505 | Thermo Fisher do | reagente mamífero da extração da proteína de M-PER | Os tampões alternativos da lise tais como RIPA são igualmente apropriados. |
| Metanol, | Fisher Scientific | 10365710 | Solvente |
| Tubos de microcentrífuga, tubos | Eppendorf | 616201 | autoclaváveis |
| Sistema de célula de eletroforese vertical Mini-PROTEAN Tetra | Bio-Rad | 1658035FC | . Capacidade de 4 gels, para géis fundidos à mão de 1,0 mm de espessura, com módulo Mini Trans-Blot e fonte de alimentação PowerPac HC. |
| NC-Slide A8 | ChemoMetec | 942 0003 | Corrediça de 8 câmaras para uso com NucleoCounter NC 250. |
| DsiRNA de controle negativo, 5 nmol | IDT | 51 01 14 04 | DsiRNA não direcionado. |
| Tampão duplex livre de nuclease | IDT | 11-01-03-01 | Tampão de reconstituição para DsiRNA. |
| NucleoCounter NC-250 | Chemometec | entre em contato com o fabricante | Instrumento. Analisador Automatizado |
| de Células Page-Régua ladder, 10 a 180 | kDa Thermo Fisher Scientific | 26616 | Padrões mistos de proteína azul, laranja e verde para SDS PAGE e western blotting. |
| Tubos de PCR | Greiner Bio | 608281 | Tubos autoclaváveis para aliqouts de DsiRNA e preparação de glicanos. |
| Ponteiras de filtro de pipeta esterilizadas (10, 200, 1000 µ L) | estéreis Gibson | F171203, F171503 F171703 | para evitar contaminação por RNA. |
| Enzima PNGase F | New England Biolabs | P0704S | Clivagem enzimática de glicanos de glicoproteínas. |
| Colunas de polipropileno, 1 mL | Qiagen | 34924 | Colunas para cromatografia de fluxo por gravidade. |
| Coquetel de Inibidor de Protease | Sigma Aldrich | P8340 | Inibição de serina, cisteína, proteases aspárticas e aminopeptidases |
| Grânulos de Agarose Proteína-A | Merck-Millipore | 16 125 | Para purificação de imunoglobulinas humanas, de camundongos e coelhos. |
| Biossensor de proteína A | ForteBio | 18 5010 | Pontas funcionalizadas com proteína A para rápida quantificação de anticorpos. |
| RNaseZap | Invitrogen | AM9780 | Remove a contaminação por RNAse. |
| Diluente de amostra | ForteBio | 18 1104 | Activate Protein A tips. |
| Pipetas sorológicas (5, 10, 25 mL) | Corning | 4487, 4488, 4489 | Usado para técnicas de cultura de células estéreis. |
| Solução de cianoborohidreto de sódio 1 M em THF | Sigma Aldrich | 296813 | Agente redutor. |
| Solução 18 | ChemoMetec | 910-3018 | Reagente de coloração contendo laranja de acridina (AO) e 4',6-diamidino-2-fenilindol (DAPI) |
| Spin-X Filtros de Tubo de Centrífuga | Corning | 8161 | 0,22 µ m poro, membrana de acetato de celulose. |
| Placa de suspensão com tampa, 6 poços | Greiner Bio | 657 185 | Placa de cultura hidrofóbica para crescimento de culturas em suspensão. |
| Filtros de seringa, 0,22 μ m | Sartorius | 514 7011 | Acetato de celulose sem surfactante (SFCA) |
| Seringas com ponta Luer lock, 20 mL | Fisher Scientific | 10569215 | Para conexão segura com filtro de seringa. |
| Solução de Trypan Blue | Gibco | 15250061 | Cora células mortas e moribundas. |
| Vivaspin 500, 3.000 MWCO | Sartorius | VS0191 | Polietersulfona |
| WesternBreeze Kit Cromogênico, anti-coelho | Thermo Fisher Scientific | WB7105 | Kit de detecção de Western blot, tampões de bloqueio alternativos e diluentes de anticorpos podem ser feitos pelo usuário usando receitas disponíveis online. |
Referências
- Jefferis, R. Glycosylation as a strategy to improve antibody-based therapeutics. Nature Reviews Drug Discovery. 8 (3), 226-234 (2009).
- Rathore, A. S., Winkle, H. Quality by design for biopharmaceuticals. Nature Biotechnology. 27 (1), 26-34 (2009).
- Eon-Duval, A., Broly, H., Gleixner, R. Quality attributes of recombinant therapeutic proteins: An assessment of impact on safety and efficacy as part of a quality by design development approach. Biotechnology Progress. 28 (3), 608-622 (2012).
- Lalonde, M. -E., Durocher, Y. Therapeutic glycoprotein production in mammalian cells. Journal of Biotechnology. 251, 128-140 (2017).
- Mimura, Y., et al. Glycosylation engineering of therapeutic IgG antibodies: challenges for the safety, functionality and efficacy. Protein & Cell. 9 (1), 47-62 (2018).
- Walsh, G. Biopharmaceutical benchmarks 2018. Nature Biotechnology. 36 (12), 1136-1145 (2018).
- Zhang, M., Koskie, K., Ross, J. S., Kayser, K. J., Caple, M. V. Enhancing glycoprotein sialylation by targeted gene silencing in mammalian cells. Biotechnology and Bioengineering. , (2010).
- Kanda, Y., et al. et al. of a GDP-mannose 4,6-dehydratase (GMD) knockout host cell line: a new strategy for generating completely non-fucosylated recombinant therapeutics. Journal of Biotechnology. 130 (3), 300-310 (2007).
- Umaña, P., Jean-Mairet, J., Moudry, R., Amstutz, H., Bailey, J. E. Engineered glycoforms of an antineuroblastoma IgG1 with optimized antibody-dependent cellular cytotoxic activity. Nature Biotechnology. 17 (2), 176-180 (1999).
- Xu, X., et al. et al. genomic sequence of the Chinese hamster ovary (CHO)-K1 cell line. Nature Biotechnology. 29 (8), 735-741 (2011).
- Chan, K. F., et al. et al. of GDP-fucose transporter gene (Slc35c1) in CHO cells by ZFNs, TALENs and CRISPR-Cas9 for production of fucose-free antibodies. Biotechnology Journal. 11 (3), 399-414 (2016).
- Zhang, P., et al. Identification of functional elements of the GDP-fucose transporter SLC35C1 using a novel Chinese hamster ovary mutant. Glycobiology. 22 (7), 897-911 (2012).
- Amann, T., et al. Genetic engineering approaches to improve posttranslational modification of biopharmaceuticals in different production platforms. Biotechnology and Bioengineering. 116 (10), 2778-2796 (2019).
- Karottki, K. J., et al. Awakening dormant glycosyltransferases in CHO cells with CRISPRa. Biotechnology and Bioengineering. 117 (2), 593-598 (2020).
- Fire, A., et al. Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans. Nature. 391 (6669), 806-811 (1998).
- Hammond, S. M., Bernstein, E., Beach, D., Hannon, G. J. An RNA-directed nuclease mediates post-transcriptional gene silencing in Drosophila cells. Nature. 404 (6775), 293-296 (2000).
- Bernstein, E., Caudy, A. A., Hammond, S. M., Hannon, G. J. Role for a bidentate ribonuclease in the initiation step of RNA interference. Nature. 409 (6818), 363-366 (2001).
- Shields, R. L., et al. et al. of fucose on human IgG1 N-linked oligosaccharide improves binding to human FcγRIII and antibody-dependent cellular toxicity. Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. et al. Absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Mori, K., et al. Engineering Chinese hamster ovary cells to maximize effector function of produced antibodies using FUT8 siRNA. Biotechnology and Bioengineering. 88 (7), 901-908 (2004).
- Imai-Nishiya, H., et al. Double knockdown of alpha1,6-fucosyltransferase (FUT8) and GDP-mannose 4,6-dehydratase (GMD) in antibody-producing cells: a new strategy for generating fully non-fucosylated therapeutic antibodies with enhanced ADCC. BMC Biotechnology. 7, 84(2007).
- Beuger, V., et al. et al. silencing of fucosyltransferase 8 in Chinese-hamster ovary cells for the production of antibodies with enhanced antibody immune effector function. Biotechnology and Applied Biochemistry. 53 (1), 31(2009).
- Templeton, N., Dean, J., Reddy, P., Young, J. D. Peak antibody production is associated with increased oxidative metabolism in an industrially relevant fed-batch CHO cell culture. Biotechnology and Bioengineering. 110 (7), 2013-2024 (2013).
- Hussain, H., et al. A comparative analysis of recombinant Fab and full-length antibody production in Chinese hamster ovary cells. Biotechnology and Bioengineering. 118 (12), 4815-4828 (2021).
- Shimoyama, H., et al. Partial silencing of fucosyltransferase 8 gene expression inhibits proliferation of Ishikawa cells, a cell line of endometrial cancer. Biochemistry and Biophysics Reports. 22, 100740(2020).
- Tummala, S., et al. Evaluation of exogenous siRNA addition as a metabolic engineering tool for modifying biopharmaceuticals. Biotechnology Progress. 29 (2), 415-424 (2013).
- Carillo, S., et al. Comparing different domains of analysis for the characterisation of N-glycans on monoclonal antibodies. Journal of Pharmaceutical Analysis. 10 (1), 23-34 (2020).
- Reusch, D., et al. Comparison of methods for the analysis of therapeutic immunoglobulin G Fc-glycosylation profiles-Part 2: Mass spectrometric methods. mAbs. 7 (4), 732-742 (2015).
- Donini, R., Haslam, S. M., Kontoravdi, C. Glycoengineering Chinese hamster ovary cells: a short history. Biochemical Society Transactions. 49 (2), 915-931 (2021).
- Szigeti, M., Chapman, J., Borza, B., Guttman, A. Quantitative assessment of mAb Fc glycosylation of CQA importance by capillary electrophoresis. ELECTROPHORESIS. 39 (18), 2340-2343 (2018).
- Ruhaak, L. R., et al. Optimized workflow for preparation of APTS-labeled N-glycans allowing high-throughput analysis of human plasma glycomes using 48-channel multiplexed CGE-LIF. Journal of Proteome Research. 9 (12), 6655-6664 (2010).
- Patenaude, A. -M., et al. N-glycosylation analysis of mouse immunoglobulin G isolated from dried blood spots. Electrophoresis. 42 (24), 2615-2618 (2021).
- Karst, D. J., et al. Modulation and modeling of monoclonal antibody N-linked glycosylation in mammalian cell perfusion reactors. Biotechnology and Bioengineering. 114 (9), 1978-1990 (2017).
- Dadouch, M., Ladner, Y., Perrin, C. Analysis of monoclonal antibodies by capillary electrophoresis: sample preparation, separation, and detection. Separations. 8 (1), 4(2021).
- Fakhr, E., Zare, F., Teimoori-Toolabi, L. Precise and efficient siRNA design: a key point in competent gene silencing. Cancer Gene Therapy. 23 (4), 73-82 (2016).
- Birmingham, A., et al. A protocol for designing siRNAs with high functionality and specificity. Nature Protocols. 2 (9), 2068-2078 (2007).
- Makrydaki, E., et al. Immobilised enzyme cascade for targeted glycosylation. , (2022).
- Bulletin_6201.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6201.pdf (2022).
- Bulletin_6376.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6376.pdf (2022).
- Dot Blot Analysis. , Available from: https://imagej.nih.gov/ij/docs/examples/dot-blot/index.html (2022).
- Yilmazel, B., et al. Online GESS: prediction of miRNA-like off-target effects in large-scale RNAi screen data by seed region analysis. BMC Bioinformatics. 15 (1), 192(2014).
- Kittler, R., et al. Genome-wide resources of endoribonuclease-prepared short interfering RNAs for specific loss-of-function studies. Nature Methods. 4 (4), 337-344 (2007).
- Stec, E., et al. A multiplexed siRNA screening strategy to identify genes in the PARP pathway. Journal of Biomolecular Screening. 17 (10), 1316-1328 (2012).
- Brown, J. M., et al. Ligand conjugated multimeric siRNAs enable enhanced uptake and multiplexed gene silencing. Nucleic Acid Therapeutics. 29 (5), 231-244 (2019).
- Parsons, B. D., Schindler, A., Evans, D. H., Foley, E. A direct phenotypic comparison of siRNA pools and multiple individual duplexes in a functional assay. PLoS One. 4 (12), 8471(2009).
- Martin, S. E., et al. Multiplexing siRNAs to compress RNAi-based screen size in human cells. Nucleic Acids Research. 35 (8), 57(2007).
- Popp, O., Moser, S., Zielonka, J., Rüger, P., Hansen, S., Plöttner, O. Development of a pre-glycoengineered CHO-K1 host cell line for the expression of antibodies with enhanced Fc mediated effector function. mAbs. 10 (2), 290-303 (2018).
- Yang, P. -C., Mahmood, T. Western blot: Technique, theory, and trouble shooting. North American Journal of Medical Sciences. 4 (9), 429(2012).
- Troubleshooting Western Blots with the Western Blot Doctor. Bio-Rad Laboratories. , Available from: https://www.bio-rad.com/en-uk/applications-technologies/troubleshooting-western-blots-with-western-blot-doctor?ID=MIW4HR15 (2022).
- Steentoft, C., et al. Precision mapping of the human O-GalNAc glycoproteome through SimpleCell technology. EMBO. 32 (10), 1478-1488 (2013).
- FUT8 - Alpha-(1,6)-fucosyltransferase - Proteomics. , Available from: https://www.nextprot.org/entry/NX_Q9BYC5/proteomics (2022).
- Kotidis, P., et al. Rapid antibody glycoengineering in CHO cells via RNA interference and CGE-LIF N-glycomics. Methods in Molecular Biology. 2370, 147-167 (2022).
Reimpressões e permissões
