Паттерн гликозилирования антитела определяет его клиническую эффективность, поэтому продолжаются промышленные и академические усилия по контролю гликозилирования. Поскольку типичные гликоинженерные кампании являются трудоемкими и трудоемкими, создание быстрого протокола для характеристики воздействия генов гликозилирования с использованием переходного глушения окажется полезным.
Методическая статья
Быстрая гликоинженерия антител в клетках яичников китайского хомяка
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Рекомбинантные моноклональные антитела связывают специфические молекулярные мишени и, впоследствии, индуцируют иммунный ответ или ингибируют связывание других лигандов. Однако функциональность моноклональных антител и период полувыведения могут быть снижены типом и распределением специфического для хозяина гликозилирования. Попытки вырабатывать превосходные антитела вдохновили на разработку генетически модифицированных клеток-продуцентов, которые синтезируют гликооптимизированные антитела. Гликоинженерия обычно требует генерации стабильной нокаутной или нокаутной клеточной линии с использованием таких методов, как кластеризованный регулярно чередующийся короткий палиндромный повтор (CRISPR), ассоциированный белок 9. Моноклональные антитела, продуцируемые инженерными клетками, затем характеризуются с использованием масс-спектрометрических методов, чтобы определить, был ли получен желаемый гликопрофиль. Эта стратегия отнимает много времени, технически сложна и требует специалистов. Таким образом, альтернативная стратегия, которая использует оптимизированные протоколы для генетической гликоинженерии и обнаружения гликанов, может помочь усилиям по достижению оптимальных антител. В этом экспериментальном исследовании клетка яичника китайского хомяка, продуцирующая IgG, служила идеальным хозяином для оптимизации гликоинженерии. Короткая интерферирующая РНК, нацеленная на ген Fut8 , была доставлена в клетки яичников китайского хомяка, и в результате изменения в экспрессии белка FUT8 были количественно определены. Результаты показывают, что нокдаун этим методом был эффективным, что привело к снижению FUT8 на ~ 60%. Комплементарный анализ гликопроли антител проводили с использованием быстрой, но высокочувствительной методики: капиллярного гелевого электрофореза и лазерно-индуцированного флуоресцентного обнаружения. Все эксперименты с нокдауном показали увеличение афукозилированных гликанов; однако наибольший сдвиг, достигнутый в этом исследовании, составил ~ 20%. Этот протокол упрощает усилия по гликоинженерии, используя инструменты проектирования silico , коммерчески синтезированные реагенты, нацеленные на гены, и быстрые количественные анализы, которые не требуют обширного предварительного опыта. Таким образом, эффективность времени, предлагаемая этим протоколом, может помочь исследованиям новых генных мишеней.
Введение
N-связанное гликозилирование представляет собой ферментативный процесс, посредством которого олигосахаридные фрагменты ковалентно связаны с остатками Asn. В отличие от синтеза белка de novo, синтез гликана представляет собой нешаблонную реакцию, которая приводит к гетерогенному гликозилированию белков. Структура, состав и распределение гликанов могут влиять на конформацию и функцию белка. Действительно, N-гликозилирование в области кристаллизующегося фрагмента (Fc) иммуноглобулина G (IgG) регулирует терапевтическую эффективность, иммуногенность и период полувыведения антитела1. Таким образом, парадигма качества по дизайну (QbD) для разработки рекомбинантных биотерапевтических белковых продуктов естественным образом идентифицирует гликозилирование как критический атрибут качества (CQA)2,3. Клетки млекопитающих часто являются предпочтительными системами экспрессии, поскольку они по своей природе производят подобные человеку паттерны гликозилирования более тесно, чем бактерии, дрожжи, насекомые или растительные клетки. Кроме того, клетки яичников китайских хомячков (CHO) выбираются по сравнению с другими клеточными линиями млекопитающих, потому что они устойчивы к вирусной инфекции человека, секретируют продукты с высокими титрами и могут быть выращены в культуре суспензии до высокой жизнеспособной плотности клеток4. Что касается образования гликанов, не-CHO мышиные продуцирующие клетки генерируют иммуногенные гликаны (α(1-3)-связанная галактоза [α(1-3)-Gal] и N-гликолилнейраминовая кислота [NeuGc]), которые влияют на безопасное использование моноклональных антител (mAbs)5. Эти преимущества делают клетки CHO передовой системой экспрессии, ответственной за производство более 80% новых биотерапевтических средств в период с 2014 по 2018год 6. Тем не менее, шаблонно-независимое гликозилирование является консервативным механизмом, который приводит к биотерапевтическим средствам, полученным из CHO, с массивом гликоформ.
Стратегии биотерапевтического развития направлены на контроль гетерогенности в клетках CHO с помощью генной инженерии. Некоторые литературные примеры включают нокдаун сиалидаз (Neu1, Neu3)7, нокаут GDP-маннозы 4,6-дегидратазы (GMD)8 и гиперэкспрессию гликозилтрансфераз (GnTIII)9. Достижения в области гликоинженерии возможны благодаря сочетанию общедоступных ресурсов, таких как геном CHO10, и продолжающемуся развитию инструментов генной инженерии, таких как активатор транскрипционно-подобные эффекторные нуклеазы (TALENs), нуклеазы цинкового пальца (ZFN) и кластеризованные регулярно взаимосвязанные короткие палиндромные повторы (CRISPR)-ассоциированный белок 9 (CRISPR-Cas9)11,12,13,14 . Эти инструменты обычно доставляются в клетки CHO в виде плазмидной ДНК или в виде очищенных комплексов рибонуклеопротеинов (RNP). И наоборот, РНК-интерференция (РНКи) является технологией генной инженерии, которая в своей простейшей форме требует только доставки очищенных коротких интерферирующих РНК (siRNA) олигонуклеотидов. Эндогенные белки перерабатывают двухцепочечную siRNA в одноцепочечные, а нуклеаза, Индуцированный РНК комплекс глушения (RISC), образует комплекс с siRNA для расщепления целевых последовательностей мРНК 15,16,17. Глушение генов с помощью этого метода является преходящим из-за нестабильности РНК, но исследование здесь использует эту функцию для содействия быстрому скринингу.
Модельный фермент, выбранный для текущего исследования, α1,6-фукозилтрансфераза (FUT8), продуцирует N-гликаны с α-1,6 L-фукозой, связанной с ядром (Fuc). Эта модификация является первичным детерминантом антителозависимой активности цитотоксичности клеток (ADCC), о чем свидетельствуют исследования коммерческих антител. При отсутствии фукозилирования ядра Ритуксимаб (анти-CD20 IgG1) увеличивает ADCC в 50 раз и увеличивает ADCC в Трастузумабе (анти-Her2 IgG1) за счет улучшения связывания FcgRIIIa18,19. Таким образом, фукозилирование ядра считается нежелательной особенностью mAbs, которая оправдывает усилия по обращению вспять этого фенотипа. Существуют примеры успешного нацеливания гена Fut8 с использованием siRNA с сопутствующим увеличением ADCC 20,21,22, хотя эти примеры доставляют Fut8 siRNA, закодированную на плазмидной ДНК. Такие эксперименты генерируют стабильное глушение генов, поскольку плазмидная ДНК служит шаблоном для синтеза siRNA. Это позволяет клеткам пополнять молекулы siRNA, которые разлагаются внутриклеточными РНКазами и фосфатазами. И наоборот, доставка экзогенной синтетической siRNA позволяет только заглушать преходящие гены, поскольку siRNA не может быть восполнена из-за отсутствия внутриклеточного шаблона. Таким образом, пользователям следует подумать о том, совместимы ли экспериментальные конструкции с плазмидной или синтетической siRNA. Например, исследования, ориентированные на пиковое производство mAb, обычно шестой день культуры23,24, могут выбрать синтетическую siRNA, которая может быть доставлена в клетки за несколько дней до пика экспрессии. Преимущества переходного подхода с использованием синтетической siRNA включают возможность аутсорсинга производства и тот факт, что несколько конструкций siRNA могут быть сгенерированы за долю времени, затрачиваемого на генерацию конструкций в плазмидах. Кроме того, синтетическая siRNA эффективна, о чем свидетельствуют литературные примеры глушения гена Fut8, которые достаточны для снижения экспрессии белка FUT825 и получения афукозилированных IgGs с повышенным связыванием FCgRIIAIa и ADCC26.
Успех этого протокола гликоинженерии определялся степенью гликозилирования Fc. Масс-спектрометрия обычно является методом выбора для гликомического анализа; однако электрофорез капиллярного геля и лазерно-индуцированное флуоресцентное обнаружение (CGE-LIF) прекрасно поддаются разрешению гликопрофиля очищенных IgG и имеют преимущество большей быстроты и простоты. Протоколы масс-спектрометрии должны сочетать соответствующие методы хроматографии и дериватизации, источники ионизации и анализаторы массы 27,28,29. В дополнение к требованию квалифицированного специалиста, протоколы масс-спектрометрии являются длинными, а разнообразие методов затрудняет сравнение данных между лабораториями с различными установками. В контексте биофармацевтических препаратов CGE-LIF является чувствительным методом, который может обеспечить достаточную детализацию гликопрофиля антител и легко масштабируется для методов с высокой пропускной способностью. Для низкой численности, очень сложных смесей с плохо охарактеризованными гликопротеинами преимущества масс-спектрометрии могут остаться. Тем не менее, аналитика mAb с высоким разрешением и высокой чувствительностью, предоставляемая анализом N-гликана на основе CGE-LIF, служит обоснованием для испытания этого метода. Кроме того, подготовка и анализ образцов завершаются всего за несколько часов30. Недавние исследования показали, что CGE-LIF можно использовать для мониторинга гликанов, полученных из плазмы человека31, мыши32 и CHO IgGs33. В этих исследованиях подчеркивается использование CGE-LIF для высокопроизводительного анализа проб и небольших объемов образцов.
Метод CGE-LIF имеет ограничения, которые следует учитывать. Стоимость является существенным барьером для использования этого и других устройств для анализа гликана. Однако эти расходы являются типичными в полевых условиях, и CGE-LIF считается экономически эффективным вариантом34. Лаборатории с меньшими бюджетами могут счесть более практичным арендовать оборудование или передать анализ образцов на аутсорсинг. Другим соображением любого аналитического метода является повторяемость. Оценка CGE-LIF проводилась с использованием 48 реплик одного и того же образца, которые были проанализированы в разные дни. Относительное стандартное отклонение на капилляр определяли для интрабатч- и интербэтч-повторяемости. Было обнаружено, что внутрибатч-сравнение реплик имеет относительное стандартное отклонение 6,2%, что указывает на то, что капиллярная производительность не является однородной. Кроме того, сравнение данных interbatch показало относительное стандартное отклонение 15,8% 31, что указывает на то, что производительность капилляров изменяется с течением времени. Выявленные эксплуатационные недостатки могут не применяться в текущем исследовании, в котором используются различные механизмы и запатентованные реагенты. Если пользователи намерены разработать собственный протокол, стоит рассмотреть исследование Ruhaak et al. 31, в котором тщательно оценивались реагенты для CGE-LIF. Таким образом, были оптимизированы реагенты для инъекции образцов (Hi-Di Formamide и DMSO), маркировки гликанов (NaBH3CN или 2-пиколин боран)31 и другие.
В этом исследовании представлен эффективный по времени протокол гликоинженерии, который сочетает в себе скорость прямой РНКИ с последующим гликомическим анализом. Методология проиллюстрирована с использованием гена Fut8 в качестве мишени по причинам, изложенным выше.
Протокол
1. Проектирование и восстановление DsiRNA
- Используйте Safari, Firefox или Microsoft Edge для доступа к веб-сайту IDT (https://eu.idtdna.com). На главной странице выберите вкладку Продукты и услуги , а затем интерференцию РНК. Чтобы создать пользовательские конструкции dicer-substrates (DsiRNA), нацеленные на ген Fut8 , выберите инструмент «Дизайн », а затем вкладку «Создать пользовательскую DsiRNA ».
- Введите номер присоединения Fut8 или вручную введите последовательность генов, чтобы начать. В этом исследовании предложенные последовательности Fut8 из записей «CHO-K1» и «Китайский хомяк» были получены из https://chogenome.org и использованы для генерации DsiRNA. Большинство генов имеют несколько вариантов транскриптов, и важно убедиться, что DsiRNA будет активна на всех зарегистрированных вариантах в текущей сборке.
- Выберите опцию для выполнения поиска «Ручной BLAST», так как геном клетки CHO в настоящее время недоступен в качестве «эталонного генома» на веб-сайте IDT. На этом шаге выполняется поиск совпадений между пользовательскими последовательностями DsiRNA и интересующим геномом.
- Нажмите кнопку Поиск , чтобы создать последовательности DsiRNA.
- В свою очередь, оцените специфичность каждой DsiRNA с помощью функции «Manual BLAST» с налоговым идентификатором:10029 (клеточные линии CHO и китайский хомяк). Результаты покрытия запросов показывают, что конструкции DsiRNA соответствуют Fut8 (включая варианты транскрипта Fut8 ) на 100%, в то время как комплементарность по отношению к непреднамеренным целям составляет ≤76%35.
- Убедитесь, что DsiRNA специально нацелена на Fut8 , чтобы убедиться, что содержание GC составляет от 30% до 50%. Низкое содержание GC связано со слабым и неспецифическим связыванием, в то время как высокое содержание GC ингибирует раскручивание siRNA и загрузку в комплексRISC 36.
- Выберите три DsiRNA для использования в трансфекционных исследованиях (таблица 1), каждая из которых нацелена на различное местоположение гена Fut8 . Приобретите предварительно разработанную нецелевую или скремблированную DsiRNA от IDT для контрольных экспериментов.
- По прибытии центрифугируйте DsiRNA в 13 300 х г в течение 1 мин до гранулы перед открытием трубки. Восстановите каждую лиофилизированную DsiRNA в дуплексном буфере без нуклеазы (предоставленном IDT) в 100 мкМ стоковой раствор. Например, добавьте 20 мкл буфера к 2 нмоль ДзиРНК, чтобы получить запас 100 мкМ.
- Чтобы обеспечить достаточное перемешивание, инкубируйте растворы при комнатной температуре в течение 30 мин, осторожно встряхивая на орбитальном шейкере (50 об/мин, орбита 16 мм).
- Создайте мастер-микс, объединив 20 мкл каждой конструкции DsiRNA, нацеленной на Fut8 (100 мкМ каждой DsiRNA). Приготовьте аликвоты и храните при −20 °C.
| Мишень DsiRNA | Последовательность | ГК (%) | ||
| Структура А | 5' ГАГААГАУАГАААКАААААААК 3' | 36% | ||
| 5' GGUAUUUGACUGUUUUUCUUCUCUCUC 3' | ||||
| Структура B | 5' АГААУГААУУУУУУУУУУУУУУУУУУККТ 3' | 32% | ||
| 5' ААГГАААААААУКАУКАУКАУКУКАУКУКАУК 3' | ||||
| Структура C | 5' АГАГАГАУАГААГААКААКААУАК 3' | 32% | ||
| 5' ГУАУУГАКУУУУУКУАУКУУКУУКУУКЮК 3' | ||||
Таблица 1. Последовательности DsiRNA, используемые для нокдауна Fut8. Последовательности, генерируемые IDT, которые нацелены на Fut8 в геномах китайских хомяков и клеток CHO K1. Показаны смысловые и антисмысловые последовательности для каждой конструкции (соответственно), а также отображается содержание GC каждой структуры. Перепечатано из Kotidis et al. 52.
2. Трансфекция DsiRNA
- Реанимировать клетки CHO, экспрессирующие моноклональное антитело IgG37 , используя условия культивирования, подходящие для интересующей клеточной линии.
ПРИМЕЧАНИЕ: Клетки, используемые в этом исследовании, были получены с использованием системы глютаминситетазы (GS), где эндогенный GS ингибируется L-метионинсульфоксимином (MSX) для улучшения отбора редких высокопроизводительных клонов. Поэтому используйте MSX только в том случае, если это требуется выбранной линией ячейки.- Разморозьте флакон клеток в течение 2-3 мин на водяной бане, установленной на 37 °C. Очистите флакон снаружи этанолом 70% (v/v) и продолжайте всю работу в шкафу биобезопасности класса II.
- Перенесите клеточную суспензию в 15 мл центрифужной трубки, содержащей 9 мл предварительно расплавленной среды, подходящей для выбранной клеточной линии. Гранулируют ячейки центрифугированием при 100 х г в течение 5 мин.
- Осторожно удалите и выбросьте среду, не нарушая гранулу клетки. Затем повторно суспендируют ячейку гранулы в 10 мл предварительной среды и берут аликвоту для подсчета.
- Окрашивайте клетки трипаном в синий цвет при подсчете с помощью гемоцитометра или соответствующее пятно, чтобы различать живые / мертвые клетки при использовании автоматизированного счетчика клеток.
- Следуя любому из способов перечисления, перенесите соответствующий объем клеточной суспензии в колбу эрленмейера объемом 125 мл при жизнеспособной плотности клеток 3 х 105 клеток·мл-1 в 30 мл среды (с необязательным добавлением 50 мкМ MSX).
- Перенесите ячейки в инкубатор, установленный на 36,5 °C, 5% CO2 и поместите на встряхивающую платформу при 150 об/мин (орбита 16 мм).
- Прохождение клеток каждые 3-4 дня при плотности посева 2 х 105 клеток·мл-1 и рабочем объеме 50 мл в колбе Эрленмейера объемом 250 мл. Если вы используете MSX, прекратите прием добавок после первого прохождения.
- Прохождение ячеек 2х в дополнение к оттаиванию.
- Трансфекция
- Оцените плотность клеток и убедитесь, что жизнеспособность клеток превышает 90%.
- Тщательно очистите шкаф биобезопасности и все оборудование 70% (v/v) этанолом и раствором ингибитора РНКазы, чтобы избежать загрязнения.
- Пеллетные ячейки по 100 х г в течение 5 мин и повторное суспендирование в предварительно расплавленной среде до жизнеспособной плотности клеток 5 х 106 клеток·мл-1.
- Перенос 8 мкл (эквивалентно 1 мкМ) главной смеси или управления DsiRNA в стерильную (0,4 см) электропорационную кювету. Затем перенесите 800 мкл клеточной суспензии (эквивалентно 4 х 106 клеткам) в одну и ту же кювету и убедитесь, что оба компонента смешаны.
- Обеспечивают следующие импульсные условия: 1200 В, 0,1 мс, квадратная форма сигнала.
- Перенесите клеточную суспензию из кюветы в одну лунку из 6-луночной пластины, заботясь о том, чтобы избежать пеноподобного материала. Восстанавливают клетки в инкубаторе (36,5 °C, 5% CO2) без встряхивания в течение 10 мин.
- Добавьте 800 мкл предварительно расплавленной среды, чтобы получить конечный объем 1,6 мл на лунку и вернуть трансфектированные клетки в инкубатор для роста (36,5 °C, 5% CO2) при встряхивании при 150 об/мин (орбита 16 мм).
- Собирают супернатанты и клетки через 48 ч после трансфекции.
Точка остановки: Супернатант клеточной культуры может храниться при -20 °C; однако желательно, чтобы лизис клеток выполнялся сразу после сбора гранул клеток, чтобы избежать деградации белка. Супернатанты используются на этапе 3, этапе 4 и шаге 5, в то время как гранулы ячеек используются на этапе 6.
3. Количественная оценка и очистка IgG
- Измерьте концентрацию IgG с помощью биослойной интерферометрии или другого метода выбора.
- Гидрат белка Биосенсор В образце разбавителя в течение 10-30 мин. Тем временем перекладывают клеточные суспензии в 15 мл центрифужных трубок и грануляционные ячейки по 100 х г в течение 5 мин или удаляют клетки путем фильтрации через нитроцеллюлозный фильтр 0,45 мкм.
- Не нарушая гранулу, осторожно перенесите изолированный супернатант, содержащий IgG, в чистую центрифужную трубку.
- Используйте следующие настройки для биослойной интерферометрии: скорость шейкера, 2200 об/мин; время работы, 60 с. Эти параметры будут использоваться для измерения всех образцов и элементов управления.
- После гидратации наконечников биосенсоров создайте стандартную кривую, используя стандарт IgG (4 мкл каждой концентрации).
- Количественное определение концентраций в образце путем загрузки 4 мкл супернатанта клетки. Очистите аппарат безворсовыми салфетками между каждым образцом.
- Свяжите стандартную кривую с неизвестными образцами, чтобы интерполировать скорость связывания неизвестных образцов. Сохраните данные и экспортируйте их в виде csv- или PDF-файла.
- Очистка IgG
- Готовят буфер элюирования, содержащий 0,2 М глицина (рН 2,5) и стерилизуют, пропуская через фильтр 0,22 мкм.
- Фильтруйте 1 мл изолированного супернатанта при комнатной температуре с помощью фильтрующих трубок микроцентрифуги 0,22 мкм до тех пор, пока не пройдет весь супернатант.
- Гранула 150-200 мкл белка А агарозных шариков в 1,5 мл центрифужных пробирок по 100 х г в течение 3 мин и выбросьте супернатант. Затем промыть бусины белка А 150-200 мкл клеточной культуральной среды и повторить центрифугирование. Выбросьте супернатант.
- Повторно суспендируют бусины уравновешенного белка А 1 мл приготовленных супернатантов из Этапа 3.2.3. и загрузить в полипропиленовую трубку объемом 1 мл. Прикрепите полипропиленовую трубку к ротационному смесителю (орбита 15 мм) и вращайте при 30 об/мин в течение 60-90 мин при комнатной температуре или на ночь при 4 °C.
- После того, как инкубация будет завершена, соберите проточный поток и промойте шарики 1 мл 1x PBS, чтобы удалить любые несвязанные белки. Соберите также фракцию промывки.
- Elute IgG из бусин белка А путем добавления 3 мл буфера элюирования в полипропиленовую колонку. Соберите последовательные фракции, которые стекают из колонны (по 500 мкл каждая) в меченые пробирки.
- Необязательно: Если очищенное антитело должно храниться, нейтрализуйте буфер элюирования, добавив 25 мкл 1 M Tris pH 9,5. Пропустите этот шаг, если антитело будет немедленно обработано через буферный обмен и т. Д.
ПРИМЕЧАНИЕ: Все части очистки (проточные, промывки и все фракции элюирования) должны быть сохранены, чтобы гарантировать, что целевой белок не потерян. Эти образцы также могут помочь во время устранения неполадок, если очистка не увенчалась успехом. - Используйте первое элюирование (elution A) для последующей обработки, но сохраните все остальные фракции, если они потребуются в будущем.
4. Буферный обмен и концентрация проб
- Обмен буфера элюирования IgG с 1x PBS.
- Загрузите элюирование А на центробежный концентратор с отсечкой молекулярной массы 3 кДа. Обратитесь к руководству производителя при выборе соответствующей колонки MWCO. В этом эксперименте меньший размер пор обеспечивает максимальное удержание секретируемого белка, но также увеличивает время центрифугирования.
- Центрифуга при 13 300 х г в течение 40-50 мин при 4 °C. Центрифугирование завершается после того, как остаточный объем равен или меньше 50 мкл.
- Откажитесь от проточного вещества и добавьте 500 мкл предварительно охлажденного (4 °C) 1x PBS для разбавления остаточного супернатанта. Центрифугирование образца повторно с использованием тех же условий (13 300 х г в течение 40-50 мин при 4 °C) до тех пор, пока не останется 50 мкл остаточного надосадочного вещества.
- Добавьте 500 мкл предварительно охлажденного (4 °C) 1x PBS для разбавления остаточного супернатанта и повторите процесс центрифугирования снова, чтобы получить 100-кратное разбавление супернатанта.
- Концентрируйте супернатант до конечной концентрации ~2,5 г· L-1 в 40 мкл или менее для обеспечения совместимости с методом анализа гликана.
ПРИМЕЧАНИЕ: Для анализа гликана необходимо загрузить 100 мкг.
Точка остановки: Концентрированный IgG (в 1x PBS) может храниться при −20 °C и размораживаться перед анализом гликана.
5. Анализ гликана
- Выполните анализ гликана с помощью капиллярного гелевого электрофореза в соответствии с инструкциями производителя.
- Переложите 200 мкл раствора магнитного шарика в ПЦР-трубку 0,2 мл и поместите на магнитную подставку, чтобы отделить шарики от супернатанта.
- Осторожно извлеките супернатант и извлеките трубки из магнитной подставки. Добавьте очищенный образец белка и вихрь, чтобы обеспечить полное перемешивание.
- Добавьте денатурационный буфер (прилагается) в пробирку и инкубируйте в течение 8 мин при 60 °C. Держите пробки открытыми для оптимальной эффективности реакции.
- Добавьте PNGase F (500 единиц на образец) и инкубируйте в течение 20 мин при 60 °C, чтобы отщепить гликаны от очищенных антител.
- После высвобождения N-гликанов закройте пробирку и вихрь. Добавьте ацетонитрил, вихрь и инкубируйте при комнатной температуре в течение 1 мин.
- Поместите пробирки для образцов в магнитную подставку, чтобы отделить шарики от раствора. Используйте пипетку, чтобы аккуратно удалить супернатант, не касаясь бусин.
- В вытяжной капюшон добавьте в образец раствор для маркировки гликана, содержащий флуорофор. Вихрь для обеспечения достаточного перемешивания и инкубации при 60 °C в течение 20 мин (открытые крышки).
- Промыть образец 3x в ацетонитриле, чтобы удалить избыток красителя. Затем элюируйте меченые гликаны в воде DDI (поставляется).
- Поместите пробирку для образцов в магнитную подставку, чтобы отделить шарики от супернатанта, содержащего очищенные и меченые гликаны.
- Подготовьте и загрузите стандарт глюкозной лестницы, стандарты брекетинга и образцы в назначенные положения лотка. Запустите протокол анализа гликана.
- Используйте соответствующее программное обеспечение для анализа и идентификации гликанов, присутствующих в образце.
ПРИМЕЧАНИЕ: Убедитесь, что температура в тепловом блоке является точной для эффективной инкубации.
6. Вестерн Блот
- Количественная оценка эффективности нокдауна с использованием анализа вестерн-блот с антителом против α-1,6-фукозилтрансферазы. Полиакриламидные гели и буферные рецепты доступны у коммерческих поставщиков38,39.
- Через 48 ч после трансфекции подсчитывают клетки с помощью гемоцитометра или автоматизированного счетчика клеток и определяют объем клеточной суспензии, эквивалентный 5 х 106 клеткам.
- Переносят соответствующий объем клеточной суспензии из каждого экспериментального состояния в стерильную центрифужную трубку 1,5 мл и гранулу при 13 200 х г в течение 10 мин при 4 °C. Выбросьте супернатант.
- Лизируйте клетки 200 мкл лизисного буфера (пригодного для экстракции белков из клеток млекопитающих), содержащего 1% v/v ингибитора протеазы коктейля при комнатной температуре в течение 10 мин. Осторожно встряхните смесь во время инкубации (50 об/мин, орбита 16 мм).
- Чтобы удалить клеточный мусор, центрифугируют лизат при 13 200 х г в течение 10 мин, а затем переносят очищенный лизат в стерильную трубку объемом 1,5 мл.
- Измерьте концентрацию белка в каждом лизате с помощью спектрофотометра при 280 нм. Впоследствии подготовьте аликвоты каждого образца, скорректированные таким образом, чтобы иметь одинаковую концентрацию белка.
- Денатурировать образцы белка путем инкубации при 100 °C в течение 10-15 мин в красителе для загрузки образцов DTT-SDS; конечная концентрация красителя составляет 1x.
- Загрузите 15 мкл денатурированных образцов и 5 мкл предварительно окрашенной белковой лестницы в гель SDS-PAGE с 12,5% разрешающим гелем для эффективного разделения. Запускайте образцы при 25 мА на гель в течение 90 мин или до тех пор, пока передняя часть красителя не достигнет конца геля.
- Осторожно извлеките гель из кассеты и инкубируйте в 1x буфере переноса, содержащем метанол.
- Подготовьте мокрую систему переноса и активируйте мембрану PVDF метанолом. Соберите гель и мембрану PVDF для влажной переноски, поместите блок льда в резервуар для переноса и погрузите весь резервуар в лед, чтобы условия переноса оставались холодными. Работа при 350 мА/100 В в течение 60 мин.
- Блокируют мембрану путем инкубации в блокирующем растворе в течение 30 мин при комнатной температуре при осторожном встряхивании на орбитальном шейкере при 50 об/мин (орбита 16 мм).
- Смойте мембрану стерильной водой в течение 5 мин и повторите. Затем используйте чистый скальпель, чтобы аккуратно разрезать мембрану горизонтально при ~ 50 кДа, используя видимую белковую лестницу в качестве ориентира.
- Инкубировать мембрану, содержащую белки более 50 кДа, антителом против α-1,6-фукозилтрансферазы при 1:1000 в буфере разбавителя антител. Инкубировать мембрану с иммобилизованными белками менее 50 кДа с анти-GAPDH при 1:10 000 в буфере разбавителя. Мембраны могут инкубироваться в течение 1 ч при комнатной температуре или на ночь при 4°С.
- Промыть мембраны в течение 5 мин (х3), а затем инкубировать с соответствующим вторичным антителом в течение не менее 30 мин при комнатной температуре.
- Выполните 3-кратные стирки с буфером для стирки в течение 5 минут, затем 3-кратные стирки водой. Затем развивают мембрану с хромогенным субстратом (или соответствующим реагентом обнаружения) до появления полос (1-60 мин).
- Промойте мембрану 2 раза водой, а затем дайте ей высохнуть. Захват изображения мембраны и выполнение денситометрического анализа40.
- Чтобы рассчитать относительную экспрессию белка в каждом образце, сначала рассчитайте отношение сигнала GAPDH в образцах. Это коэффициент нормализации для каждого образца, который исправляет расхождения в загрузке образца.
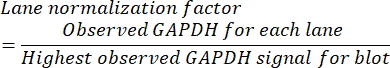
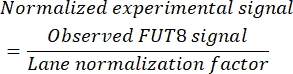
- Разделите интенсивность сигнала FUT8 (для каждой полосы) на коэффициент нормализации соответствующей полосы для получения относительной экспрессии белка FUT8.
Результаты
Анализ вестерн-блоттинга показал снижение экспрессии белка FUT8 в клетках, трансфектированных смесью трех конструкций Fut8 DsiRNA. В контрольных образцах, трансфектированных нецелевой DsiRNA, FUT8 появился в виде двойной полосы при ~65 и 70 кДа. Поскольку предсказанная молекулярная масса FUT8 составляет 66 кДа, снижение интенсивности сигнала в нижнемолекулярном диапазоне свидетельствует о глушении генов. Для подтверждения и количественной оценки глушения генов уровень белка FUT8 был нормализован до относительного уровня белка GAPDH. Анализ вестерн-блот обнаружил две полосы для GAPDH при ~37 и 35 кДа. Более высокая молекулярно-весовая полоса соответствует прогнозируемому размеру белка и, следовательно, используется в расчетах нормализации. При нормализации по отношению к уровням белка GAPDH экспрессия белка FUT8 снижалась до 60% (рисунок 1).
В соответствии с наблюдением за нокдауном гена через 48 ч после трансфекции, соответствующие образцы mAb были обработаны для анализа CGE-LIF. Гликановые структуры из нокдаун-клеток показали снижение фукозилирования. Эта тенденция была наиболее выражена в агалактозилированных структурах (G0F) и наблюдалась в меньшей степени в галактозилированных структурах (G1F, G1F' и G2F). Из этого набора данных общее фукозилирование ядра IgG снизилось до ~ 75%, по сравнению с ~ 95% фукозилирования ядра, наблюдаемого для отрицательного контрольного состояния (рисунок 2). Ожидалось большее снижение фукозилирования ядра, учитывая снижение уровня белка FUT8 на ~ 60%. При размышлении примечательно, что гликопрофиль представляет собой гликозилированные mAbs, которые накапливались в течение 48 ч с момента трансфекции, в то время как глушение генов представляет собой уровни белка, присутствующие только во время сбора.
Дальнейшее изучение этого метода нокдауна включало изменение концентрации DsiRNA, времени сбора и условий электропорации. Каждый фактор был индивидуально исследован для определения его актуальности. Влияние импульсных состояний электропорации на фукозилирование ядра и жизнеспособность клеток отражено в экспериментах B, C, D и E. Эти результаты демонстрируют двукратное снижение фукозилирования ядра от электропорации с использованием двух импульсов квадратной волны (эксперимент C) по сравнению с одним импульсом квадратной волны (эксперимент B), без существенных различий в жизнеспособности клеток (таблица 2). Состояние электропорации e3 (эксперимент D) привело к самой низкой жизнеспособности клеток (~90%) и выходу IgG в этот момент времени. Однако клетки, пережившие событие электропорации, были умеренно трансфектированы, о чем свидетельствует ~ 10% снижение фукозилирования ядра (таблица 2). Интересно, что в эксперименте D использовались условия электропорации, которые обеспечивали наибольшее снижение фукозилирования ядра (14,7%), но, очевидно, наносили ущерб жизнеспособности клеток (жизнеспособность 91%-93%). Этот ограниченный набор экспериментов иллюстрирует необходимость определения параметров электропорации, которые обеспечивают достаточную проницаемость клеточной мембраны, не вызывая необратимого повреждения. Также интересно отметить роль концентрации siRNA и времени сбора в фукозилировании ядра. В целом, увеличение концентрации siRNA оказывает большее влияние на фукозилирование ядра, чем увеличение времени сбора (эксперименты B, F, G против экспериментов A, B, H). В будущих экспериментах было бы интересно титровать концентрации siRNA, полученные методом электропорации e2.
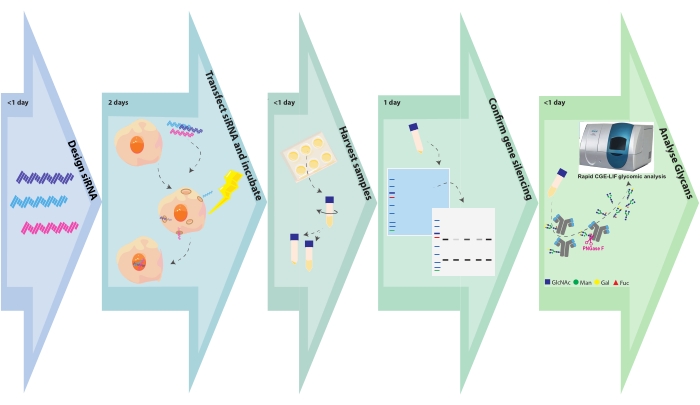
Рисунок 1. Экспериментальная блок-схема. Этапы гликоинженерии и анализа образцов показаны с соответствующим временем, необходимым для каждого этапа. Проектирование SiRNA занимает несколько часов, в зависимости от количества генных мишеней или конструкций на генную мишень. Трансфекция клеток CHO с siRNA завершается через несколько часов, а трансформированные клетки остаются расти в течение 48 ч. Клеточные гранулы и супернатанты собирают в течение нескольких часов. Клеточные гранулы лизируются, а внутриклеточные белки отделяются на SDS PAGE и впоследствии промокаются и исследуются антителами против гена-мишени. Гликаны расщепляются из очищенных антител и анализируются CGE-LIF. Эти анализы могут потребовать 1 день каждый. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
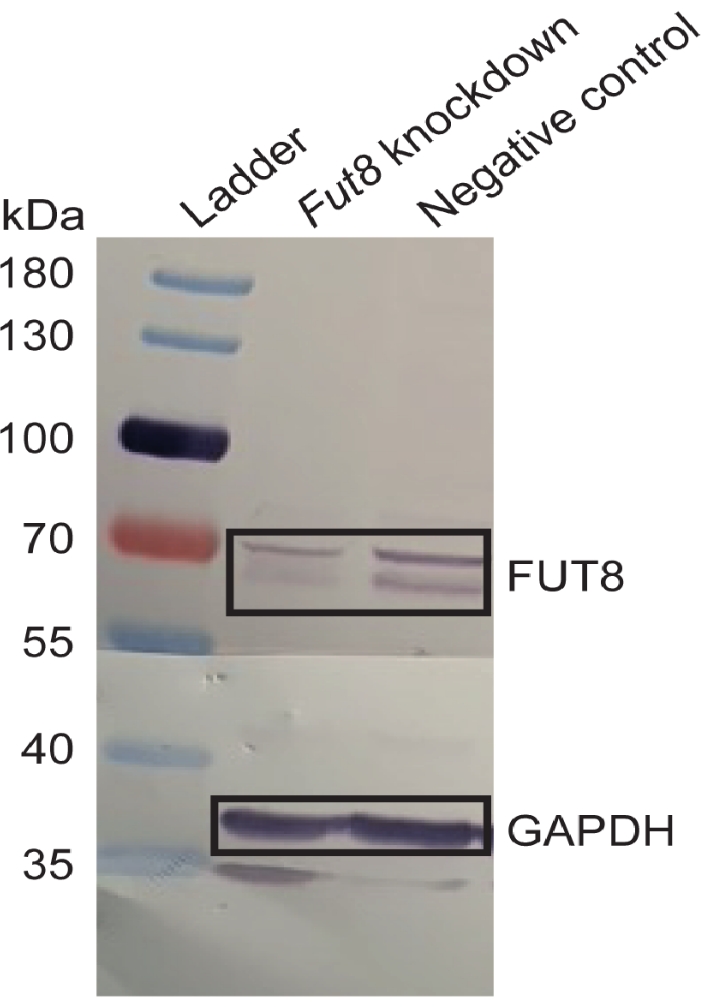
Рисунок 2. Подтверждение РНК-интерференции. Обнаружение вестерн-блоттинга уровней белка α-1,6-фукозилтрансферазы (FUT8) в образцах, обработанных Fut8 или нецелевой контрольной DsiRNA. Полосы, соответствующие FUT8, более интенсивны в контроле, чем нокдаун-сэмплы Fut8. Уровень белка GAPDH также оценивали с целью нормализации экспрессии генов-мишеней. Все образцы были взяты из эксперимента G (см. таблицу 2). Перепечатано из Kotidis et al. 52. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
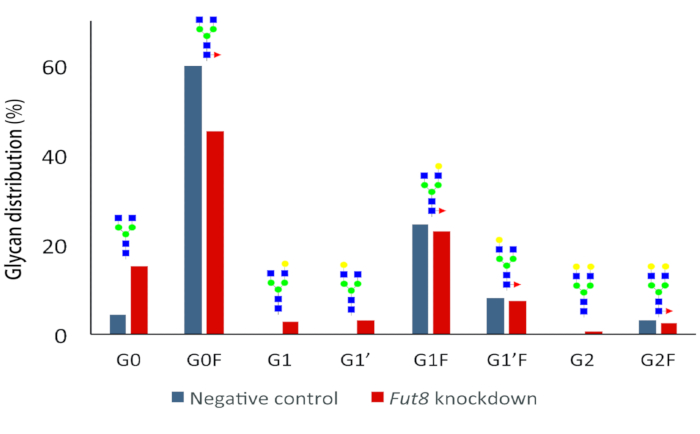
Рисунок 3. Влияние нокдауна Fut8 на кумулятивное гликозилирование IgG через 48 ч. Сдвиг в распределении гликанов обнаруживается в нокдаун-образцах. В частности, относительная численность основных ядро-фукозилированных структур (G0F) уменьшается, в то время как афукозилированные виды увеличиваются в эксперименте по нокдауну. Измерения проводились на основе образцов эксперимента G (см. таблицу 2). Биологические трипликаты, выполненные для каждого эксперимента, были смешаны после сбора урожая, чтобы уменьшить бремя последующего анализа. Перепечатано из Kotidis et al. 52. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Название эксперимента | Метод электропорации | Концентрация ДсиРНК (нМК) | Время сбора урожая (ч) | Жизнеспособность (%) | Xv (106 клеток·мл-1) | Титр IgG (мг· Л-1) | Разница в сердечнике фукозилирования (%) | ||||||
| ExpA_Negative | е1 | 500 | 24 | 98.3 | 4.71 | 122.5 | - | ||||||
| ExpA_Knockdown | е1 | 500 | 24 | 98.3 | 4.9 | 110.3 | 4.08 | ||||||
| ExpB_Negative | е1 | 500 | 48 | 95.6 | 9.55 | 453.3 | - | ||||||
| ExpB_Knockdown | е1 | 500 | 48 | 96.7 | 9.61 | 469 | 5.38 | ||||||
| ExpC_Negative | е2 | 500 | 48 | 96.3 | 9.91 | 449.3 | - | ||||||
| ExpC_Knockdown | е2 | 500 | 48 | 96.7 | 11 | 454.6 | 11.42 | ||||||
| ExpD_Negative | е3 | 500 | 48 | 90.6 | 6.25 | 318.5 | - | ||||||
| ExpD_Knockdown | е3 | 500 | 48 | 89.1 | 6.09 | 311.85 | 9.71 | ||||||
| ExpE_Negative | е4 | 500 | 48 | 91.1 | 7.2 | 380.3 | - | ||||||
| ExpE_Knockdown | е4 | 500 | 48 | 93.3 | 7.79 | 422.8 | 14.7 | ||||||
| ExpF_Negative | е1 | 750 | 48 | 96.2 | 9.7 | 501 | - | ||||||
| ExpF_Knockdown | е1 | 750 | 48 | 95.7 | 9.76 | 504.6 | 9.9 | ||||||
| ExpG_Negative | е1 | 1000 | 48 | 96.1 | 11.1 | 422.6 | - | ||||||
| ExpG_Knockdown | е1 | 1000 | 48 | 95.9 | 9.73 | 499.3 | 17.26 | ||||||
| ExpH_Negative | е1 | 500 | 72 | 94.4 | 14.3 | 925.8 | - | ||||||
| ExpH_Knockdown | е1 | 500 | 72 | 95 | 13.5 | 1018.4 | 7.37 | ||||||
Таблица 2. Оптимизация трансфекции. Итеративные модификации метода электропорации, концентрации DsiRNA и времени сбора привели к изменениям жизнеспособности клеток, жизнеспособной плотности клеток, титру IgG во время сбора и различиям в фукозилировании ядра. Каждый эксперимент сравнивал нокдаун и соответствующий отрицательный контроль, чтобы определить, производит ли модификация желаемый эффект (т.е. снижение фукозилирования). Настройки электропорации были следующими: e1: 1200 В, 0,1 мс, квадратная форма сигнала; e2: 1200 В, 2x 0,1 мс, 5 с между импульсами, квадратная форма сигнала; e3: 150 В, 20 мс, квадратная форма сигнала; e4: 250 В, 500 мкФ, экспоненциальный распад. Перепечатано из Kotidis et al. 52.
Обсуждение
Пути гликозилирования включают сложную метаболическую сеть ферментов и вспомогательных белков. Препарирование функции составляющих путей является сложным, если полагаться только на обычные стратегии нокаута или нокаута генной инженерии. Альтернативный подход заключается в предварительном скрининге членов пути с использованием переходного анализа потери функции. С этой целью были объединены два быстрых протокола, RNAi и обнаружение CGE-LIF, чтобы создать более эффективный способ характеристики генов гликозилирования. Описанный метод требует 5-7 дней для завершения по сравнению с обычными методами, которые потенциально занимают несколько недель для завершения. Кроме того, исследовательские среды с возможностями автоматизации могут использовать этот метод для скрининга большего количества кандидатов генов, чем это возможно при ручном обращении.
Успех переходной гликоинженерной кампании во многом зависит от конструкции siRNA. Пользовательские конструкции DsiRNA должны соответствовать правилам, изложенным ранее, или для простоты пользователи могут выбрать коммерчески доступные предварительно разработанные последовательности. Как и другие стратегии модификации генов, РНКи обладает потенциалом для нецелевых эффектов. Поэтому пользователям рекомендуется оценивать непреднамеренное нацеливание генов вычислительными методами41. Выбор экспериментального дизайна также может помочь ограничить нецелевые эффекты. Kittler et al. показали, что мультиплексированная доставка siRNA приводила к снижению нецелевых эффектов42. Хотя это кажется нелогичным, предполагается, что мастер-микс снижает концентрацию каждой конструкции siRNA, тем самым ограничивая возможность замалчивания генов вне цели. Еще одним преимуществом является то, что одновременная трансфекция структур siRNA, которые нацелены на один и тот же ген, увеличивает вероятность успешного RNAi. Использование мастер-микса также обеспечивает согласованность между образцами и репликами и ускоряет процесс трансфекции. После начального скрининга смешанных конструкций siRNA может быть проведен другой эксперимент с использованием отдельных конструкций для определения эффективности РНКи каждой последовательности. В этом и других нокдаун-исследованиях до трех siRNA были объединены и доставлены в клетки 43,44,45. Тем не менее, может быть желательно провести скрининг более трех siRNA одновременно, чтобы эффективно нацеливаться на один ген или нацеливаться на несколько генов. Действительно, одно исследование продемонстрировало мультиплексированное siRNA-опосредованное глушение до шести генов на уровнях, сопоставимых с глушением отдельных генов46. Тем не менее, необходимы дальнейшие исследования для определения максимального количества конструкций siRNA, которые могут быть использованы в бассейне без ущерба для эффективности глушения. Мультиплексная стратегия была предложена Мартином и др. для повышения темпов экспериментов по скринингу библиотеки РНКи46, и аналогичная концепция может оказаться полезной для скрининга генов гликозилирования.
Протокол, описанный в настоящем описании, служит доказательством концепции с расчетом на то, что будут проведены последующие эксперименты для проверки других генов гликозилирования. Новые гены, представляющие интерес, могут быть нехарактеризованными или менее популярными, чем Fut8, а первичные антитела для обнаружения глушения генов могут быть плохими или недоступными. В этом сценарии альтернативные методы, такие как ОТ-ПЦР, могут быть использованы для количественной оценки глушения генов47, но следует отметить, что ОТ-ПЦР обнаруживает мРНК, а не белок. Когда антитела для западного блоттинга доступны, общей проблемой является плохое обнаружение или наличие неспецифических полос. Доступны руководства по устранению неполадок, помогающие пользователям решать распространенные проблемы, и они, как правило, включают в себя ряд решений, таких как первичное титрование антител, альтернативная блокировка и условия обнаружения48,49. В этом исследовании FUT8 неожиданно появился в виде двойной полосы при ~65 и ~70 кДа. Возможно, что диапазон ~70 кДа представляет собой гликозилированный FUT8. Литературные данные из клеточных линий человека описывают O-связанное гликозилирование при Thr 56450,51, участке, который сохраняется у китайского хомяка, и последовательности CHO K1 FUT8.
Как упоминалось ранее, пути гликозилирования часто включают сложный набор ферментов. Текущий протокол был разработан, оптимизирован и продемонстрирован с использованием моногенной реакции гликозилирования, контролируемой Fut8. Поэтому необходимы дальнейшие исследования для подтверждения надежности этого метода, когда ген-мишень кодирует фермент с альтернативной кинетикой и уровнями экспрессии или путь, регулируемый изоферментами с избыточными функциями.
Взятые вместе, способность быстро заглушать гены и обнаруживать модифицированные гликопрофили IgG является полезным инструментом в усилиях по созданию пользовательских гликоинженерных антител. Результаты аналогичных краткосрочных исследований могут быть применены для создания стабильных гликоинженерных клеток для использования в долгосрочных анализах, таких как культурная культура. Вне фармацевтического контекста этот метод способствует изучению биологии гликана и подчеркивает важную функцию гликанов в развитии, здоровье и болезнях.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
PK благодарит Департамент химической инженерии Имперского колледжа Лондона за его стипендию. RD благодарит Исследовательский совет По биотехнологии и биологическим наукам Великобритании за его студенчество. MM финансируется Исследовательским советом по биотехнологии и биологическим наукам Великобритании (ссылка на грант: BB/S006206/1). IAG благодарит Ирландский исследовательский совет (стипендия No. GOIPG/2017/1049) и CONACyT (стипендия No 438330).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Программное обеспечение 32 Karat | Производитель контактов | SCIEX | Программное обеспечение для сбора и анализа данных гликана с использованием протокола анализа Fast Glycan и метода разделения. |
| Ацетонитрил, растворитель ВЭЖХ марки | Sigma Aldrich | 34851 | . |
| Антитело против FUT8 | AbCam | ab198741 | Кролик поликлонкал к Fut8. Используйте это антитело для количественной оценки экспрессии белка Fut8; замените это антитело при использовании миРНК, нацеленной на другой ген. |
| Антитело против GAPDH | AbCam | ab181602 | Кролик моноклональный к GAPDH. Существуют альтернативные гены, которые могут быть предпочтительными для пользователя. |
| Спектрофотометр BioDrop | Biochrom | 80 3006 55 | Прибор, используемый для количественного определения концентрации белка. |
| Прибор BLItz | ForteBio | 45 5000 | . Система анализа белка без меток. |
| ТОРГОВАЯ МАРКА Гемоцитометр | Sigma Alrich | BR717810 | Счетная камера Устройство |
| Капиллярный картридж | SCIEX | A55625 | Предварительно собранный капиллярный картридж с окном (общая длина 30 см, 375 и мкм; м наружный диаметр (наружный диаметр), х 50 и микро; м внутренний диаметр (i.d). |
| Анализ гликана C100HT— капиллярный электрофорез | SCIEX | контактный производитель | инструмента для капиллярного гелевого электрофореза, в настоящее время используется инструмент CESI 8000 Plus. |
| CD CHO Medium | Thermo Fisher Scientific | 10743029 | Замените его питательной средой, подходящей для выбранной клеточной линии. |
| Центрифужные пробирки, 15 мл | Greiner Bio | 188261 | Стерильная полипропиленовая пробирка. |
| Пробирки центрифуги, 50 мл | Greiner Bio | 227270 | Стерильная полипропиленовая пробирка. |
| CHO IgG | MedImmune | Gift | Клетки яичника китайского хомяка, экспрессирующие моноклональное антитело IgG (CHO T127). Создано с использованием системы GS. |
| Фосфатно-солевой буфер Дульбекко (DPBS) | Gibco | 14190144 | 1x PBS, без кальция и магния. |
| Колбы Эрленмейера с вентиляционным колпачком, 125 мл | Corning | 431143 | Замените его питательным сосудом, подходящим для выращивания выбранной клеточной линии. |
| Колбы Эрленмейера с вентиляционным колпачком, 250 мл | Corning | 431144 | Замените его культуральным сосудом, подходящим для выращивания выбранной клеточной линии. |
| Набор для быстрого маркировки и анализа гликанов | SCIEX | B94499PTO | маркирует N-гликаны с помощью APTS, а затем использует систему очистки на основе магнитных гранул для удаления избытка APTS. |
| Fut8 DsiRNA | IDT | Custom | Designed DsiRNA, нацеленный на Fut8. |
| Кюветы Gene Pulser, 0,4 см | Bio-Rad | 1652088 | Electroporation кювета. |
| Ген Pulser Xcell Eukaryotic System | Bio-Rad | 165 2661 | Insturment. Основной блок Xcell с расширителем емкости (CE) Mocdule и ShockPod. |
| Мембрана Immobilon-FL PVDF | Merck-Millipore | IPFL00010 | Immunoblot трансферная мембрана, низкий фон. |
| L-метионин сульфоксимин (MSX) | Sigma Aldrich | M5379 | Необходим только для клеточных линий СНО, использующих систему селекции глутаминсинтетазы (GS). |
| Kimwipes | Thermo Fisher Scientific | 10623111 | Салфетки с низким ворсом, высокой впитывающей способностью и химически инертными салфетками. |
| M-PER Реагент для экстракции белка млекопитающих | Thermo Fisher Scientific | 78505 | Также подходят альтернативные буферы для лизиса, такие как RIPA. |
| Метанол, ВЭЖХ марки | Fisher Scientific | 10365710 | растворитель. |
| Микроцентрифужные пробирки, 1,5 мл | Eppendorf | 616201 | автоклавируемые пробирки. |
| Система вертикальных ячеек для электрофореза Mini-PROTEAN Tetra | Bio-Rad | 1658035FC | Instrument. Емкость 4 геля, для гелей ручной литки толщиной 1,0 мм, с модулем Mini Trans-Blot и блоком питания PowerPac HC. |
| NC-Slide A8 | ChemoMetec | 942 0003 | 8-камерное слайд для использования с NucleoCounter NC 250. |
| Отрицательный контроль DsiRNA, 5 нмоль | IDT | 51 01 14 04 | Нетаргетная DsiRNA. |
| Безнуклеазный дуплексный буфер | IDT | 11-01-03-01 | Восстановительный буфер для DsiRNA. |
| NucleoCounter NC-250 | Chemometec | контакт производитель | прибора. Автоматический анализатор клеток |
| Page-Линейка лестница, от 10 до 180 кДа | Thermo Fisher Scientific | 26616 | Смешанные стандарты синего, оранжевого и зеленого белка для SDS PAGE и вестерн-блоттинга. |
| ПЦР-пробирки | Greiner Bio | 608281 | автоклавируемые пробирки для аликутов DsiRNA и гликанового препарата. |
| Стерилизованные наконечники для фильтра пипетки (10, 200, 1000 и микро; L) | Gibson | F171203, F171503, F171703 | Стерильные фильтрующие наконечники для предотвращения загрязнения РНК. |
| PNGase F фермент | New England Biolabs | P0704S | Ферментативное расщепление гликанов из гликопротеинов. |
| Колонки полипропиленовые, 1 мл | Qiagen | 34924 | Колонки для гравитационной хроматографии. |
| Коктейль ингибиторов протеазы | Sigma Aldrich | P8340 | Ингибирование серина, цистеина, аспарагиновых протеаз и аминопептидаз |
| Protein-A Agarose Beads | Merck-Millipore | 16 125 | Для очищения иммуноглобулинов человека, мыши и кролика. |
| Биосенсор Protein-A | ForteBio | 18 5010 | Наконечники, функционализированные с белком А для быстрого количественного определения антител. |
| РНКазаZap | Invitrogen | AM9780 | удаляет загрязнение РНКазой. |
| Образец разбавителя | ForteBio | 18 1104 | Activate Protein A tips. |
| >серологические пипетки (5, 10, 25 мл) | Corning | 4487, 4488, 4489 | Используется для стерильных технологий клеточных культур. |
| Раствор цианоборогидрида натрия 1 М в ТГФ | Сигма Олдрич | 296813 | восстановитель. |
| Раствор 18 | ChemoMetec | 910-3018 | Окрашивающий реагент, содержащий акридин оранжевый (AO) и 4',6-диамидино-2-фенилиндол (DAPI) |
| Центрифуга Центрифуга Трубчатые фильтры | Spin-X Corning | 8161 | 0,22 & микро; m поры, мембрана из ацетата целлюлозы. |
| Суспензионная пластина с крышкой, 6-луночная | Greiner Bio | 657 185 | Гидрофобная культуральная пластина для выращивания суспензионных культур. |
| Шприцевые фильтры, 0.22 μ m | Sartorius | 514 7011 | Ацетат целлюлозы без поверхностно-активных веществ (SFCA) |
| Шприцы с наконечником замка Люэра, 20 мл | Fisher Scientific | 10569215 | Для надежного соединения с фильтром шприца. |
| Раствор Трипана Синего | Gibco | 15250061 | окрашивает мертвые и умирающие клетки. |
| Vivaspin 500, 3,000 MWCO | Sartorius | VS0191 | Polyethersulfone |
| WesternBreeze Chromogenic Kit, анти-кроличий | Thermo Fisher Scientific | WB7105 | альтернативные блокирующие буферы и разбавители антител могут быть изготовлены пользователем с использованием рецептов, доступных в Интернете. |
Ссылки
- Jefferis, R. Glycosylation as a strategy to improve antibody-based therapeutics. Nature Reviews Drug Discovery. 8 (3), 226-234 (2009).
- Rathore, A. S., Winkle, H. Quality by design for biopharmaceuticals. Nature Biotechnology. 27 (1), 26-34 (2009).
- Eon-Duval, A., Broly, H., Gleixner, R. Quality attributes of recombinant therapeutic proteins: An assessment of impact on safety and efficacy as part of a quality by design development approach. Biotechnology Progress. 28 (3), 608-622 (2012).
- Lalonde, M. -E., Durocher, Y. Therapeutic glycoprotein production in mammalian cells. Journal of Biotechnology. 251, 128-140 (2017).
- Mimura, Y., et al. Glycosylation engineering of therapeutic IgG antibodies: challenges for the safety, functionality and efficacy. Protein & Cell. 9 (1), 47-62 (2018).
- Walsh, G. Biopharmaceutical benchmarks 2018. Nature Biotechnology. 36 (12), 1136-1145 (2018).
- Zhang, M., Koskie, K., Ross, J. S., Kayser, K. J., Caple, M. V. Enhancing glycoprotein sialylation by targeted gene silencing in mammalian cells. Biotechnology and Bioengineering. , (2010).
- Kanda, Y., et al. et al. of a GDP-mannose 4,6-dehydratase (GMD) knockout host cell line: a new strategy for generating completely non-fucosylated recombinant therapeutics. Journal of Biotechnology. 130 (3), 300-310 (2007).
- Umaña, P., Jean-Mairet, J., Moudry, R., Amstutz, H., Bailey, J. E. Engineered glycoforms of an antineuroblastoma IgG1 with optimized antibody-dependent cellular cytotoxic activity. Nature Biotechnology. 17 (2), 176-180 (1999).
- Xu, X., et al. et al. genomic sequence of the Chinese hamster ovary (CHO)-K1 cell line. Nature Biotechnology. 29 (8), 735-741 (2011).
- Chan, K. F., et al. et al. of GDP-fucose transporter gene (Slc35c1) in CHO cells by ZFNs, TALENs and CRISPR-Cas9 for production of fucose-free antibodies. Biotechnology Journal. 11 (3), 399-414 (2016).
- Zhang, P., et al. Identification of functional elements of the GDP-fucose transporter SLC35C1 using a novel Chinese hamster ovary mutant. Glycobiology. 22 (7), 897-911 (2012).
- Amann, T., et al. Genetic engineering approaches to improve posttranslational modification of biopharmaceuticals in different production platforms. Biotechnology and Bioengineering. 116 (10), 2778-2796 (2019).
- Karottki, K. J., et al. Awakening dormant glycosyltransferases in CHO cells with CRISPRa. Biotechnology and Bioengineering. 117 (2), 593-598 (2020).
- Fire, A., et al. Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans. Nature. 391 (6669), 806-811 (1998).
- Hammond, S. M., Bernstein, E., Beach, D., Hannon, G. J. An RNA-directed nuclease mediates post-transcriptional gene silencing in Drosophila cells. Nature. 404 (6775), 293-296 (2000).
- Bernstein, E., Caudy, A. A., Hammond, S. M., Hannon, G. J. Role for a bidentate ribonuclease in the initiation step of RNA interference. Nature. 409 (6818), 363-366 (2001).
- Shields, R. L., et al. et al. of fucose on human IgG1 N-linked oligosaccharide improves binding to human FcγRIII and antibody-dependent cellular toxicity. Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. et al. Absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Mori, K., et al. Engineering Chinese hamster ovary cells to maximize effector function of produced antibodies using FUT8 siRNA. Biotechnology and Bioengineering. 88 (7), 901-908 (2004).
- Imai-Nishiya, H., et al. Double knockdown of alpha1,6-fucosyltransferase (FUT8) and GDP-mannose 4,6-dehydratase (GMD) in antibody-producing cells: a new strategy for generating fully non-fucosylated therapeutic antibodies with enhanced ADCC. BMC Biotechnology. 7, 84(2007).
- Beuger, V., et al. et al. silencing of fucosyltransferase 8 in Chinese-hamster ovary cells for the production of antibodies with enhanced antibody immune effector function. Biotechnology and Applied Biochemistry. 53 (1), 31(2009).
- Templeton, N., Dean, J., Reddy, P., Young, J. D. Peak antibody production is associated with increased oxidative metabolism in an industrially relevant fed-batch CHO cell culture. Biotechnology and Bioengineering. 110 (7), 2013-2024 (2013).
- Hussain, H., et al. A comparative analysis of recombinant Fab and full-length antibody production in Chinese hamster ovary cells. Biotechnology and Bioengineering. 118 (12), 4815-4828 (2021).
- Shimoyama, H., et al. Partial silencing of fucosyltransferase 8 gene expression inhibits proliferation of Ishikawa cells, a cell line of endometrial cancer. Biochemistry and Biophysics Reports. 22, 100740(2020).
- Tummala, S., et al. Evaluation of exogenous siRNA addition as a metabolic engineering tool for modifying biopharmaceuticals. Biotechnology Progress. 29 (2), 415-424 (2013).
- Carillo, S., et al. Comparing different domains of analysis for the characterisation of N-glycans on monoclonal antibodies. Journal of Pharmaceutical Analysis. 10 (1), 23-34 (2020).
- Reusch, D., et al. Comparison of methods for the analysis of therapeutic immunoglobulin G Fc-glycosylation profiles-Part 2: Mass spectrometric methods. mAbs. 7 (4), 732-742 (2015).
- Donini, R., Haslam, S. M., Kontoravdi, C. Glycoengineering Chinese hamster ovary cells: a short history. Biochemical Society Transactions. 49 (2), 915-931 (2021).
- Szigeti, M., Chapman, J., Borza, B., Guttman, A. Quantitative assessment of mAb Fc glycosylation of CQA importance by capillary electrophoresis. ELECTROPHORESIS. 39 (18), 2340-2343 (2018).
- Ruhaak, L. R., et al. Optimized workflow for preparation of APTS-labeled N-glycans allowing high-throughput analysis of human plasma glycomes using 48-channel multiplexed CGE-LIF. Journal of Proteome Research. 9 (12), 6655-6664 (2010).
- Patenaude, A. -M., et al. N-glycosylation analysis of mouse immunoglobulin G isolated from dried blood spots. Electrophoresis. 42 (24), 2615-2618 (2021).
- Karst, D. J., et al. Modulation and modeling of monoclonal antibody N-linked glycosylation in mammalian cell perfusion reactors. Biotechnology and Bioengineering. 114 (9), 1978-1990 (2017).
- Dadouch, M., Ladner, Y., Perrin, C. Analysis of monoclonal antibodies by capillary electrophoresis: sample preparation, separation, and detection. Separations. 8 (1), 4(2021).
- Fakhr, E., Zare, F., Teimoori-Toolabi, L. Precise and efficient siRNA design: a key point in competent gene silencing. Cancer Gene Therapy. 23 (4), 73-82 (2016).
- Birmingham, A., et al. A protocol for designing siRNAs with high functionality and specificity. Nature Protocols. 2 (9), 2068-2078 (2007).
- Makrydaki, E., et al. Immobilised enzyme cascade for targeted glycosylation. , (2022).
- Bulletin_6201.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6201.pdf (2022).
- Bulletin_6376.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6376.pdf (2022).
- Dot Blot Analysis. , Available from: https://imagej.nih.gov/ij/docs/examples/dot-blot/index.html (2022).
- Yilmazel, B., et al. Online GESS: prediction of miRNA-like off-target effects in large-scale RNAi screen data by seed region analysis. BMC Bioinformatics. 15 (1), 192(2014).
- Kittler, R., et al. Genome-wide resources of endoribonuclease-prepared short interfering RNAs for specific loss-of-function studies. Nature Methods. 4 (4), 337-344 (2007).
- Stec, E., et al. A multiplexed siRNA screening strategy to identify genes in the PARP pathway. Journal of Biomolecular Screening. 17 (10), 1316-1328 (2012).
- Brown, J. M., et al. Ligand conjugated multimeric siRNAs enable enhanced uptake and multiplexed gene silencing. Nucleic Acid Therapeutics. 29 (5), 231-244 (2019).
- Parsons, B. D., Schindler, A., Evans, D. H., Foley, E. A direct phenotypic comparison of siRNA pools and multiple individual duplexes in a functional assay. PLoS One. 4 (12), 8471(2009).
- Martin, S. E., et al. Multiplexing siRNAs to compress RNAi-based screen size in human cells. Nucleic Acids Research. 35 (8), 57(2007).
- Popp, O., Moser, S., Zielonka, J., Rüger, P., Hansen, S., Plöttner, O. Development of a pre-glycoengineered CHO-K1 host cell line for the expression of antibodies with enhanced Fc mediated effector function. mAbs. 10 (2), 290-303 (2018).
- Yang, P. -C., Mahmood, T. Western blot: Technique, theory, and trouble shooting. North American Journal of Medical Sciences. 4 (9), 429(2012).
- Troubleshooting Western Blots with the Western Blot Doctor. Bio-Rad Laboratories. , Available from: https://www.bio-rad.com/en-uk/applications-technologies/troubleshooting-western-blots-with-western-blot-doctor?ID=MIW4HR15 (2022).
- Steentoft, C., et al. Precision mapping of the human O-GalNAc glycoproteome through SimpleCell technology. EMBO. 32 (10), 1478-1488 (2013).
- FUT8 - Alpha-(1,6)-fucosyltransferase - Proteomics. , Available from: https://www.nextprot.org/entry/NX_Q9BYC5/proteomics (2022).
- Kotidis, P., et al. Rapid antibody glycoengineering in CHO cells via RNA interference and CGE-LIF N-glycomics. Methods in Molecular Biology. 2370, 147-167 (2022).
Перепечатки и разрешения
