Akış sitometrisi, spesifik hücre popülasyonlarının izole edilmesine ve incelenmesine olanak tanıyan güçlü bir araçtır. Bu protokol, neonatal transgenik farelerin koklear dokularından LacZ eksprese eden hücrelerin izole edilme adımlarını açıklamaktadır. Dissosiye edilmiş koklear hücreler, akış sitometrisi ile ayrılmadan önce β-galaktosidazın floresan konjuge substratları kullanılarak işaretlenmiştir.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Yalıtımlı LacZ ifade Sitometrisi kullanarak Fare İç Kulak Dokular Hücreler
Bu makalede
Özet
Özet
Belirli hücre tiplerinin izole edilmesi, kök/progenitör hücreler gibi nadir hücre popülasyonlarının analiz edilmesine olanak tanır. İç kulak dokularını incelemeye yönelik böyle bir yaklaşım, ilgili hücrelerin azlığı ve sınırlı sayıdaki transgenik raporlayıcı fare modelleri nedeniyle benzersiz bir zorluk teşkil etmektedir. Burada, neonatal koklealardan LacZ-pozitif hücreleri seçici olarak işaretlemek için floresan konjuge probların kullanıldığı bir protokol tanımlıyoruz.
Sensörinöral işitme kaybının en yaygın altında yatan patolojisi, ses dalgalarını sinirsel impulslara dönüştürmek için gerekli olan koklear sensoriyel tüy hücrelerinin geri dönüşümsüz hasarı ve kaybıdır. Güncel kanıtlar, fare işitme ve vestibüler organlarının rejeneratif potansiyele sahip olabilecek kök/progenitör hücreler barındırdığını göstermektedir1,2. Bu bulgular, kök/progenitör hücre özelliklerine sahip spesifik hücre tiplerinin belirlenmesi dahil olmak üzere daha ileri araştırmaları gerekli kılmaktadır. Wnt sinyal yolunun, çeşitli organ sistemlerinde kök/progenitör hücre popülasyonlarının sürdürülmesinde kritik bir rol oynadığı kanıtlanmıştır3-7. Yakın zamanda neonatal kokleada Wnt'ye yanıt veren Axin2 eksprese eden hücreler tanımladık, ancak bunların işlevi büyük ölçüde bilinmemektedir8.
Bu Wnt-duyarlı hücrelerin in vitro davranışlarını daha iyi anlamak için, Axin2-LacZ raporlayıcı farelerin9 koklealarından Axin2 eksprese eden hücreleri izole etme yöntemi geliştirdik. Neonatal koklealarla Axin2-LacZ pozitif hücreleri izole etmek için akış sitometrisi kullanarak, kök/progenitör hücreler olarak davranışlarını sorgulamak amacıyla canlı hücreler üzerinde çeşitli deneyler gerçekleştirebildik. Burada, neonatal kokleanın mikrodissection adımlarını, bu dokuların disosiyasyonunu, florojenik bir substrat kullanarak LacZ-pozitif hücrelerin işaretlenmesini ve hücre ayırmasını ayrıntılı olarak açıklıyoruz. Kokleaların tekil hücrelere disosiyasyonu ve koklear hücrelerin akış sitometrisi yoluyla izole edilmesine yönelik teknikler daha önce tanımlanmıştır2,10-12. Neonatal kokleadan LacZ eksprese eden hücreleri izole etmek için yeni bir protokol oluşturmak amacıyla bu tekniklerde modifikasyonlar yaptık.
Protokol
1. Kokleanın mikrodiseksiyonu
- Yüzeyleri %70 etanol ile silerek ve buz bloklarını hazırlayarak, çekmece altındaki diseksiyon mikroskobunu hazırlayın.
- Steril koşullar altında 10-15 adet 35 mm'lik Petri kabı hazırlayın ve bunları yarıya kadar (~2 ml) steril Kalsiyumlu Hank Dengeli Tuz Çözeltisi (HBSS) ile doldurun.
- Steril koşullar altında iki adet 35 mm'lik Petri kabı hazırlayın ve yarıya kadar (~2 ml) steril 1x fosfat tamponlu çözelti (PBS) ile doldurun.
- Mikro-pensleri, %70 etanol içeren 50 ml'lik konik Falcon tüpünde sterilize edin.
- Steril kabinden ayrı bir odada, iris makası kullanarak 0-3 günlük postnatal (P) 12-15 adet Axin2 faresini dekappite edin.LacZ/+ reporter fareleri kullanın ve kafalarını buz bloğu üzerindeki 60 mm'lik bir Petri kabına yerleştirin.
- #5 Dumont pens ve iris makası kullanarak mandibula ve dili eksize edin ve kafatası tabanını damak seviyesinden kesin.
- Kalvaryumun üzerindeki deriyi çıkarın ve makası foramen magnumun alt kısmından damağın ortasına doğru yerleştirerek kafa tabanını kesin.
- Otik kapsüle zarar vermemeye dikkat ederek, her iki tarafta damak kesi kenarından kalvaryanın üst kısmına doğru iris makasıyla bir insizyon daha yapın.
- Foramen magnum'un üst kısmından başlayıp sert damağa kadar uzanan koronal kesiye kadar iki adet 45 derecelik açıyla insizyon yapılarak temporal kemiğin tamamen izolesi sağlanır.
- İzole edilmiş temporal kemikleri, buz kalıbı üzerinde HBSS içeren 35 mm'lik Petri kaplarına yerleştirin.
- Sakrifiye edilmiş yaklaşık 12-15 hayvandan, toplam 24-30 temporal kemik toplayın.
- İzole edilmiş temporal kemiklerin bulunduğu Petri kabını, önceden hazırlanmış steril diseksiyon davlumbazına (1.1) aktarın.
- HBSS (1,2) içeren, önceden hazırlanmış her bir 35 mm'lik Petri kabına dört temporal kemik aktarın ve buz bloğu üzerine yerleştirin.
- Otik kapsülün üzerindeki temporal kemikte yer alan korteksi, beyin sapını ve serebellumu nazikçe çıkarmak için iki adet #55 pens kullanarak mikrodiseksiyona başlayın.
- Otik kapsülü çıkarmadan, vestibulokoklear sinirin otik kapsüle giriş noktasından başlayarak koklear kapsülün bazı kısımlarını yongalayarak temizleyin.
- Kohlea tabanı açığa çıkarıldıktan sonra, kohleayı ve çevre dokuları nazikçe dışarı çekin. Tabandan başlayarak kalan tüm spiral ganglionu ve stria vascularis'i temizleyin.
- Kokleayı, buz bloğu üzerindeki PBS içeren 35 mm'lik Petri kabına aktarın.
- Optimal doku canlılığı için, toplam diseksiyon süresi 60 dakikadan az olmalıdır.
- Axin2-LacZ fareleri için kontrol olarak, 3-5 adet yabani tip (WT) P0-P3 faresi için yukarıdaki adımları tekrarlayın.
2. Hücre disosiasyonu (daha önce tanımlanmış yöntemlerden modifiye edilmiştir)2,10
- Kaplamasız 6 kuyucuklu bir kültür kabındaki bir kuyucuğun merkezine 50 μl steril PBS yerleştirin.
- Her 50 μl PBS damlacığına 20 adede kadar Axin2LacZ/+ kokleası aktarın. 20'den fazla koklea için yeni bir 50 μl PBS damlacığı kullanılmalıdır.
- 0,125% tripsinin 50 μl'lik alikotlarını 37°C su banyosunda yaklaşık 2 dakika ön ısıtmaya tabi tutun.
- Kokleaları içeren PBS'ye 50 μl ön ısıtılmış 0,125% tripsin ekleyin.
- 6 kuyucuklu kabı, kabı sallamamaya dikkat ederek 8 dakika boyunca 37°C'de bekletin.
- Tripsinizasyonu sonlandırmak için, her 100 μl damlacığa 50 μl soya fasulyesi tripsin inhibitörü ekleyin.
- Ek olarak 50 μl Tam Besiyeri (FM) (DMEM/F12 içinde IGF-1, EGF, bFGF, HS, ampicillin) ekleyin2
- 125 μl'ye ayarlanmış bir p200 pipetman ve 300 μl'lik küt uçlu pipet ucu kullanarak, kabarcık oluşturmamaya dikkat ederek hücreleri nazikçe 80 kez triture edin.
- Her damlacığın triturasyonunun ardından, her kuyucuğa ek olarak 200 μl FM ekleyin.
- Hücreleri 40 μm mavi Falcon hücre süzgeci aracılığıyla yeni bir kuyucuğa geçirin.
- Hücreleri standart Falcon FACS tüplerine aktarın (triturasyon ve filtrasyon sonrası yaklaşık 300 μl kalır).
- Yabanıl tip koklealardan gelen hücreleri üç tüpe bölün ve her tüpte 100 μl hücreyi 300 μl FM ile seyreltin. Tüplerden biri boş kontrol olarak kullanılacak, biri sadece propidyum iyodür (PI, 1 μg/ml) ile boyanacak (bu aşamada eklenmeyecek), sonuncusu ise arka plan floresansını tespit etmek için 3-karboksiumbeliferil β-D-galaktopiranozid (CUG, bkz. 2.15) ile boyanacaktır.
- Axin2-LacZ koklealarından gelen disosiye hücrelerin 400 μl'sini her bir FACS tüpüne yerleştirin. Sadece CUG kontrolü olarak, 10 μl hücreyi 390 μl FM içinde seyreltin (Adım 2.15'teki F tüpüne bakınız). Kalan tüm tüplerin hacmini 400 μl'ye tamamlayın.
- Hücreleri 37°C nemlendirilmiş inkübatörde 10 dakika inkübe edin.
- CUG solüsyonunu hazırlayın:
- Boyama gerektiren her FACS tüpü için 200 μl CUG hazırlayın.
- CUG'yi, minimum ışık maruziyeti olan karanlık bir çeker ocakta FM içinde 1:50 oranında seyreltin.
- Seyreltilmiş CUG'yi 37°C'de 3-5 dakika ön ısıtmaya tabi tutun.
- Ardından, her uygun FACS tüpüne 200 μl seyreltilmiş CUG ekleyin. CUG için ayrılmamış tüplere sadece FM ekleyin (bkz. 2.15).
- Bu noktada, aşağıdaki içeriklere sahip beş tüp kategorisi olmalıdır (bu aşamada PI eklemeyin):
- Yabanıl tip - CUG veya PI olmadan (kompansasyon için, bkz. adım 3.5-6)
- Yabanıl tip - sadece PI ile (kompansasyon için)
- Yabanıl tip - CUG ve PI ile (Axin2-LacZ hücrelerine karşı kontrol için)
- Axin2-LacZ - sadece CUG ile (kompansasyon için)
- Axin2-LacZ - CUG ve PI ile (asıl hücre ayıklama işlemi için)
- Axin2-LacZ - CUG ve PI ile (olay analizi için)
- Tüm tüpleri ışıkla temas etmeyecek şekilde koruyun ve 37°C nemlendirilmiş inkübatörde 25 dakika inkübe edin.
- İnkübasyon sonrası reaksiyonu durdurmak için taze HEPES + Fetal Bovine Serum (FBS) solüsyonu hazırlayın:
- Taze çözülmüş 400 μl FBS'yi, 15 ml'lik bir Falcon tüpünde 10 ml steril 10 mM HEPES (PBS içinde) ile seyreltin.
- Tüpü 2.16 tamamlanana kadar buz üzerinde bekletin.
- Işık maruziyetini en aza indirmek için ışıklar kapalıyken steril bir çeker ocak altında her FACS tüpüne 1,8 ml buz gibi soğuk HEPES solüsyonu ekleyin.
- Hücreleri 1200rpm'de 5 dakika santrifüj edin.
- Süpernatantı uzaklaştırın ve hücreleri 300 μl FM içinde yeniden süspande edin; ayıklama örneği (CUG ve PI ile boyanmış Axin2-LacZ) için tüm alikotları birleştirin.
- Final konsantrasyonu 1 μg/ml olacak şekilde her tüpe PI ekleyin.
- Hücreleri buz üzerinde tutun ve ışıktan koruyun.
3. Akış Sitometrisi
- 488-nm, 633-nm ve 407-nm lazerlerle donatılmış bir BD Aria II kullanıyoruz. CUG tespiti 407-nm menekşe lazerle, PI tespiti ise Stanford Paylaşımlı FACS Tesisinde 488-nm mavi lazer kullanılarak yapılmıştır.
- Eğitimli bir akış sitometresi operatörü gereklidir. Lazerleri ısıttıktan, üretici talimatlarını kullanarak sitometre dedektörlerini kalibre ettikten ve optimal ayıklama parametrelerini belirledikten sonra bir sonraki adıma geçin. Deneyimlerimize göre, 100 μm nozul kullanımının sonraki deneyler için hücre canlılığını optimize ettiğini gördük.
- Şu parametreler kullanılmıştır: eşik değeri 5.000 olay, akış hızı saniyede 3.000 olaydan az, ileri saçılım (FSC) 125 volt ve yan saçılım (SSC) 250 volt; PI için PE-Cy5 kanalı, CUG için ise Cascade Blue kanalı kullanılmıştır.
- Sitometre haznesini sırasıyla ikişer kez %70 etanol ve PBS ile yıkayın.
- Analize boyanmamış, yabani tip hücrelerle başlayın (Adım 2.15'teki tüp A). FSC'ye karşı SSC grafiğinde hücre dağılımını belirlemek için 1.000 olay toplayın. Saçılım istenilen düzeyde değilse, FSC ve SSC parametrelerini ayarlayın.
- Boyanmamış WT (tüp A), PI ile boyanmış WT (tüp B) ve CUG ile boyanmış Axin2-LacZ (tüp D) hücrelerini kullanarak kompanzasyon işlemini gerçekleştirin. Kompanzasyon, farklı lazer dalga boyları arasında daha doğru sinyal ayrımı yapılmasını sağlayacaktır.
- Analize yabani tip PI ve CUG ile boyanmış hücrelerle başlayın (tüp C) ve şu gating parametrelerini ayarlayın:
- FSC'ye karşı SSC grafiğine dayanarak döküntülerin (debris) dışlanması.
- FSC-yükseklik ile FSC-alan grafiği kullanılarak dubletlerin ve kümelerin dışlanması.
- FSC-alan ile PE-Cy5-alan grafiğine dayanarak ölü hücrelerin dışlanması.
- Herhangi bir gate yerleşimi ile FSC-alan ile Cascade Blue-alan grafiğinin oluşturulması.
- Ardından, Axin2-LacZ PI ve CUG ile boyanmış hücreleri içeren ayıklama örnek tüpünden (tüp F) 10.000 olayı analiz edin.
- Yabani tip hücreler kullanılarak ayarlanan tüm gateler burada uygulanmalıdır.
- Yabani tip hücrelerin grafikleri kullanılarak, toplam olay sayısının %1'inden az olan Cascade Blue-yüksek hücreler için gateler oluşturun.
- Bu Cascade Blue-yüksek gateleri, Axin2-LacZ örneğindeki hücrelerin yaklaşık %15-20'sini kapsayacak ve böylece bu hücreler Axin2-yüksek hücreler olacaktır.
- Axin2-LacZ hücrelerinin analiz grafiğini kullanarak, en düşük florojenik %15-20'lik hücre grubu için bir gate oluşturun; bunlar bundan sonra Axin2-düşük hücreler olarak adlandırılacaktır.
- Yukarıda belirtilen gating stratejisine dayanarak, hücreleri 500 μl FM içeren FACS tüplerine ayıklayın; bir tüp Axin2-yüksek, diğeri ise Axin2-düşük hücreler için olmalıdır. Ayıklama sırasında toplama tüplerinin 4°C'ye soğutulmuş bir hazne içinde olduğundan emin olun.
- Her popülasyon için akış sitometresi tarafından sayılan hücre sayısını kaydedin.
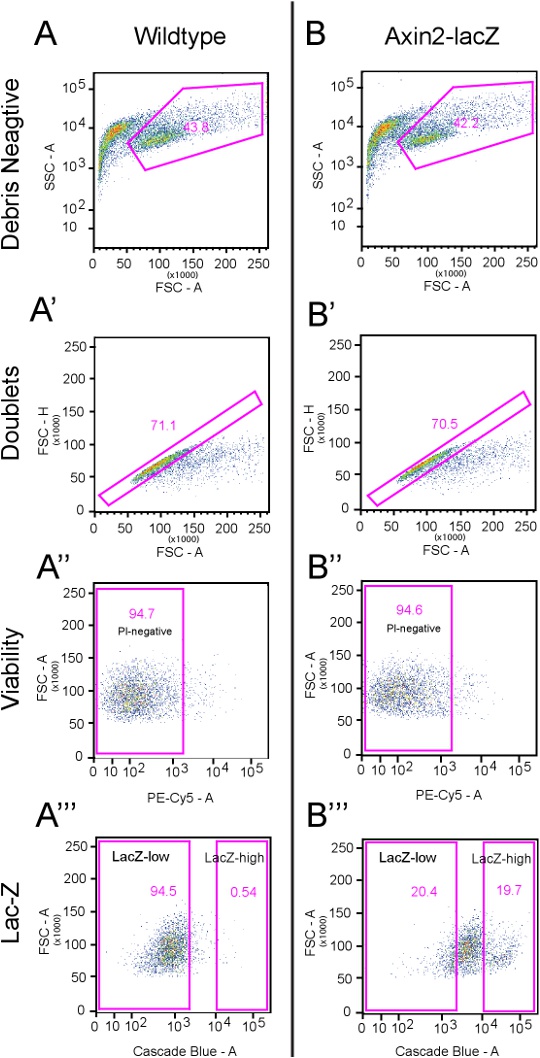
4. Temsili Sonuçlar (bkz. Şekil 2):
Yukarıdaki protokol ile, hem yabani tip hem de Axin2LacZ/+ koklealarından tipik olarak %40-45 oranında kalıntıdan arınmış hücre geri kazanımı sağlıyoruz (Şekil 2A ve B) ve bunların yaklaşık %70'i dubletlerden arınmıştır (bkz. Şekil 2A' ve B'). Sıralanan hücrelerin çoğu canlıdır ve PI tutmamıştır (~%95) (Şekil 2A'' ve B''). Ortalama olarak, en üstteki ~%20 CUG-pozitif hücreler, Axin2-LacZ-pozitif hücreler olarak kabul edilir (Şekil 2B''') ve bu durum 10-12 hayvan başına yaklaşık 15.000 Axin2-LacZ-yüksek hücreye karşılık gelir.
Axin2-yüksek hücrelerin akış sitometrisi ile yeniden sıralama analizi, Cascade Blue kanalında %93'ten fazla saflık ortaya koymuştur. Bu hücrelerin kimliğini daha fazla doğrulamak amacıyla, anti-β-galaktosidaz antikorları kullanarak hem Axin2-yüksek hem de Axin2-düşük hücrelerin sıralama sonrası immün boyamasını gerçekleştirdik; Axin2-yüksek hücrelerin ~%93,4 oranında β-galaktosidaz-pozitif hücre (1.500'den fazla hücre analiz edilmiştir) içerdiğini ve Axin2-düşük hücrelerin ~%4,8 oranında β-galaktosidaz-pozitif hücre içerdiğini saptadık.
Şekiller ve Tablolar:

Şekil 1.Deneysel paradigma. Yukarıdaki şekil, protokol bölümünde açıklanan genel deneysel stratejiyi ve teknikleri tasvir etmektedir. Yaban tip ve Axin2LacZ/+ farelerden koklealar hasat edilip tek hücrelere ayrıştırılmış ve ardından β-galaktosidaz için floresan bir substrat olan CUG ile işlenmiştir. Axin2-LacZ-yüksek ve -düşük hücreler daha sonra akış sitometrisi yoluyla birbirinden ayrılmıştır. Bu görüntünün tam boyutlu versiyonunu görüntülemek için buraya tıklayın.


Şekil 2.Kapılama Stratejileri. Bu şekil, kullanılan akış sitometrisi kapılama stratejilerini göstermektedir. A) Axin2-LacZ hücreleri ile aynı işleme tabi tutulan disosiye yaban tipi hücreler, burada toplam 10.000 olay kullanılarak analiz edilmiştir. İlk panel, yan saçılım alanının (SSC-A) ileri saçılım alanına (FSC-A) karşı durumunu göstermektedir. Burada, belirgin bir olay grubu, y eksenine daha yakın olan olaylardan çok daha büyük boyuttadır. Bu olaylar "Debris Negatif" olarak tanımlanmıştır. Bir sonraki kapı olan A', panel A'daki "Debris Negatif" hücreleri analiz eder ve bu, toplam olay sayısının %43,8'ine tekabül eder (aşağıdaki tabloya bakınız). Bu panelde, dubletleri dışlamak için ileri saçılım yüksekliği (FSC-H), FSC-A'ya karşı kullanılır. Grafiğin beklenen doğrusal doğasından sapan olaylar dışlanır. Bu hazırlık tipik olarak belirlenen kapı içinde ~%70 olay verir ve geri kalan hücreler dışlanır. Panel A''da, PE-Cy5 kanalı tarafından tespit edilen propidyum iyodür (PI), ölü hücreleri işaretlemek için kullanılır (%5,3). Bir sonraki panelde (A'''), floresan substrat CUG'u tespit etmek için Cascade blue kanalı kullanılır. Burada, LacZ-yüksek kapıları, toplam olayların %1'inden daha azını içerir. B) CUG ve PI ile işlem görmüş Axin2-LacZ farelerden elde edilen disosiye hücreler, burada toplam 10.000 olay kullanılarak analiz edilmiştir. Panel A'daki ile aynı kapılar burada da uygulanmıştır. B', hücrelerin %29,5'inin dublet olarak dışlandığını gösterirken, B'' %5,4'ünün canlı olmadığını göstermektedir. LacZ-yüksek ve -düşük hücreler için başlangıç kapıları, LacZ-yüksek başlangıçta %19,7 ve LacZ-düşük %20,4 olarak ayarlanarak panel B''' kullanılarak çizilmiştir. Bu görüntünün tam boyutlu versiyonunu görüntülemek için buraya tıklayın.
| Olay sayısı | Yüzde | ||
| A | Yabani Tip Analizi | 10,000 | |
| A' | Döngüsel Atık Negatif | 4,381 | 43.80% |
| A'' | Çift Negatif | 3,116 | 71.10% |
| A''' | PI Negatif | 2,951 | 94.70% |
| LacZ-yüksek | 16 | 0.54% | |
| Düşük LacZ | 2,790 | 94.50% | |
| B | Axin2-LacZ Analizi | 10,000 | |
| B' | Debris Negatif | 4,218 | 42.2% |
| B'' | Doublet Negatif | 2,973 | 70.50% |
| B''' | PI Negatif | 2,813 | 94.6% |
| Yüksek-LacZ | 553 | 19.70% | |
| Düşük LacZ | 573 | 20.40% |
Tablo 1. Şekil 2'deki kapılama stratejilerinin kantitatif analizleri.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Bağımsız araştırma çalışmaları, neonatal koklealar içindeki sınırlı rejeneratif kapasiteyi karakterize etmiştir2,10,12,13. White ve meslektaşları, GFP-reporter fareler ve akış sitometrisi kullanarak spesifik koklear destek hücrelerini izole etmiş ve bunların progenitor hücre özelliklerine sahip olduğunu bulmuşlardır12.
Kanonik Wnt yolunun beyin, meme bezi, hematopoetik sistem, deri ve gastrointestinal intestinal kriptler dahil olmak üzere birçok organ sistemindeki kök/pro...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Herhangi bir çıkar çatışması beyan edilmemiştir.
Teşekkürler
Verimli tartışmaları için S. Heller, K. Oshima, R. Nusse ve Y. Zeng'e; teknik destekleri için C. Tang, A. Lee, E. Liaw ve Stanford Paylaşımlı FACS Tesisi personeline teşekkür ederiz. Bu çalışma; Howard Hughes Medical Institute Tıbbi Araştırma Eğitim Bursu, Stanford Üniversitesi Tıbbi Bursiyerler programı (her ikisi de T.A.J.'ye), Stanford Üniversitesi Dekanlık Bursu (R.C.'ye), Amerikan Otolojik Derneği, Triolojik Dernek, Percy Memorial Ödülü, Akiko Yamazaki ve Jerry Yang Fakülte Akademisyen Fonu ile NIDCD/NIH K08 DC011043 (tamamı A.G.C.'ye) tarafından desteklenmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Petri kabı, polistiren, steril Geriner Bio-one 35 x 10 mm | VWR international | 82050-540 | |
| BD Falcon Hücre Süzgeçleri, Steril, BD Biosciences, mavi, 40 μm | VWR international | 21008-949 | |
| Hanks’ Dengeli Tuz Çözeltisi (HBSS). Kalsiyum ve Magnezyum içeren, Fenol Kırmızısı içermeyen, Steril Çözelti | VWR international | 45000-456 | |
| Cellstar santrifüj tüpleri, polipropilen, steril, greiner bio-one, 50 ml | VWR international | 82050-346 | |
| Cellstar santrifüj tüpleri, polipropilen, steril, greiner bio-one, 15 ml | VWR international | 82050-278 | |
| B-27 Serumsuz Takviye (50x), sıvı | Invitrogen | 17504-044 | |
| N-2 Takviyesi (100x), sıvı | Invitrogen | 17502-048 | |
| bFGF, temel fibroblast büyüme faktörü insan | Sigma-Aldrich | F0291 | |
| IGF-1, fare kaynaklı insülin benzeri büyüme faktörü-1 | Sigma-Aldrich | I8779 | |
| EGF, epidermal büyüme faktörü insan | Sigma-Aldrich | E9644 | |
| Dulbecco’Modifiye Eagle’Sıvı Besiyeri/Ham’F-12 50/50 Karışımı: 1X, L-Glutamin ve 15 mM HEPES içeren | VWR international | 45000-350 | |
| BD Falcon Yuvarlak Tabanlı Tüpler, Tek Kullanımlık, Polistiren, 12x75 | VWR International | 60819-295 | |
| Trypsin, %0,25 (1X) EDTA 4Na ile, sıvı | Invitrogen | 25200-056 | |
| ep Dualfilter Uçlar 300uL, 960 Uç | Eppendorf | 22491245 | |
| Soya Fasulyesi Trypsin İnhibitörü, Saflaştırılmış | Worthington Biochemical | LS003570 | |
| BD Falcon 40µm Hücre Süzgeçleri | BD Biosciences | 21008-949 | |
| Çok Kuyucuklu Plakalar, Polistiren, Greiner Bio-One, İşlem görmemiş Plakalar, 6 kuyucuklu | VWR International | 82050-846 | |
| Marker Gen FACS Blue LacZ beta-Galaktosidaz Tespit Kiti | Marker Gen Teknolojileri | M0255 |
Kaynaklar
- Li, H., Liu, H., Heller, S. Pluripotent stem cells from the adult mouse inner ear. Nat. Med.. 9, 1293-1299 (2003).
- Oshima, K. Differential distribution of stem cells in the auditory and vestibular organs of the inner ear. J. Assoc. Res. Otolaryngol. 8, 18-31 (2007).
- Barker, N. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 449, 1003-1007 (2007).
- Jaks, V. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat. Genet. 40, 1291-1299 (2008).
- Kalani, M. Y. Wnt-mediated self-renewal of neural stem/progenitor cells. Proc. Natl. Acad. Sci. U.S.A. 105, 16970-16975 (2008).
- Willert, K. Wnt proteins are lipid-modified and can act as stem cell growth factors. Nature. 423, 448-452 (2003).
- Zeng, Y. A., Nusse, R. Wnt proteins are self-renewal factors for mammary stem cells and promote their long-term expansion in culture. Cell Stem Cell. 6, 568-577 Forthcoming.
- Chai, R. Dynamic Expression of Lgr5, a Wnt Target Gene, in the Developing and Mature Mouse Cochlea. J. Assoc. Res. Otolaryngol. , Forthcoming.
- Lustig, B. Negative feedback loop of Wnt signaling through upregulation of conductin/axin2 in colorectal and liver tumors. Mol. Cell Biol. 22, 1184-1193 (2002).
- Diensthuber, M., Oshima, K., Heller, S. Stem/progenitor cells derived from the cochlear sensory epithelium give rise to spheres with distinct morphologies and features. J. Assoc. Res. Otolaryngol. 10, 173-190 (2009).
- Savary, E. Cochlear stem/progenitor cells from a postnatal cochlea respond to Jagged1 and demonstrate that notch signaling promotes sphere formation and sensory potential. Mech. Dev. 125, 674-686 (2008).
- White, P. M., Doetzlhofer, A., Lee, Y. S., Groves, A. K., Segil, N. Mammalian cochlear supporting cells can divide and trans-differentiate into hair cells. Nature. 441, 984-987 (2006).
- Zhang, Y. Isolation, growth and differentiation of hair cell progenitors from the newborn rat cochlear greater epithelial ridge. J. Neurosci. Methods. 164, 271-279 (2007).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
