Homoloji aracılı uç birleştirme (HMEJ) DNA onarım yolu yoluyla birincil insan T hücrelerinde büyük, multisistronik yapıların yüksek verimli hedefli knock-in'ini elde etmek için CRISPR / Cas9 teknolojisini kullanmak için ayrıntılı bir protokol sağlanmıştır. Bu cGMP'ye uyarlanabilir protokolle tasarlanan T hücreleri, mükemmel hücre genişlemesi, sitotoksisite ve sitokin üretimini korur.
Yöntem makalesi
Büyük DNA Şablonlarının Homoloji Aracılı Uç Birleştirme Hedefli Entegrasyonu Yoluyla Birincil İnsan T Hücrelerinin Viral Olmayan Mühendisliği
Bu makalede
Özet
Özet
Mevcut birçok evlat edinen hücresel tedavi, spesifik bir tümörle ilişkili antijeni hedeflemek için bir kimerik antijen reseptörü (CAR) veya eksojen T hücresi reseptörünün (TCR) ekspresyonu için T hücrelerini tasarlamak için lenti- veya retroviral vektörlere dayanır. Terapötik T hücrelerinin üretimi için viral vektörlere güvenmek, özellikle akademik ortamda yeni tedavilerin çevirisini sınırlarken, üretimin zaman çizelgesini, maliyetini ve karmaşıklığını önemli ölçüde artırır. Büyük, multisistronik DNA kargosunun hedeflenen entegrasyonunu sağlamak için CRISPR/Cas9 ve homoloji aracılı uç birleştirme kullanarak T hücrelerinin verimli viral olmayan mühendisliği için bir süreç sunulmaktadır. Bu yaklaşım, hem in vitro hem de in vivo olarak güçlü anti-tümör etkinliği yeteneğine sahip oldukça işlevsel T hücreleri verirken, viral vektörlerinkiyle karşılaştırılabilir entegrasyon frekansları elde etmiştir. Özellikle, bu yöntem, mevcut iyi üretim uygulamalarına (cGMP) ve klinik ölçek büyütmeye hızla uyarlanabilir ve klinik çalışmalarda kullanılmak üzere terapötik T hücrelerinin üretimi için yakın vadeli bir seçenek sunar.
Giriş
T hücreleri, doğrudan sitolitik yeteneğe, sitokin üretimi yoluyla bağışıklık tepkisini modüle etme yeteneğine, B hücrelerinin ve dendritik hücrelerin lisanslanmasına ve immünolojik hafızanın oluşturulmasına sahip olan adaptif bağışıklık sisteminin önemli bir bileşenidir1. Alerji ve otoimmünitenin yanı sıra bağışıklık gelişimi, homeostaz ve sürveyans, patojenlerden korunma ve kanserden korunma ve savunmada kritik roller oynarlar1. T hücreleri, V (D) J rekombinasyonu yoluyla üretilen çok çeşitli T hücresi reseptörlerine (TCR'ler) sahiptir ve T hücrelerinin çok çeşitli antijenleri tanımasına ve çeşitli patojenlere karşı etkili bağışıklık tepkileri oluşturmasına olanak tanır 1,2. T hücreleri genellikle iki kategoriye ayrılabilir, yardımcı T hücreleri olarak da bilinen CD4 T hücreleri, öncelikle B hücreleri gibi diğer bağışıklık hücrelerine bağışıklık tepkisini koordine etmede yardımcı olur ve CD8 T hücreleri veya sitotoksik T hücreleri, yüzeylerinde sunulan spesifik antijenleri tanıyarak enfekte veya kanserli hücreleri doğrudan öldürür1.
Kimerik antijen reseptörlerinin (CAR) geliştirilmesi, immünoterapiler için T hücrelerinin genom mühendisliğine olan ilgide büyük bir artışa yol açmıştır. CAR'lar, antikordan türetilmiş antijen bağlama alanlarını T hücresi sinyal alanlarıyla birleştiren, T hücrelerinin CAR3'ün antikor kısmı tarafından tanınan spesifik epitopu eksprese eden hücreleri tanımlamasına ve hedeflemesine izin veren mühendislik proteinleridir. Bu reseptörler, bulaşıcı hastalık ve otoimmünite dahil olmak üzere çeşitli immünoterapiler için kullanılmıştır, ancak teknoloji kanser immünoterapileri için en ileri düzeydedir.
CAR-T hücreleri, lösemi ve lenfoma tedavisinde son derece başarılı olmuştur, ancak katı tümörlerin tedavisi için sınırlı etkinlik göstermiştir 4,5. Bu, katı tümör endikasyonları için CAR-T hücrelerinin etkinliğini arttırmaya çalışan bir başka gelişme dalgasına yol açmıştır. Sitokin zırhlaması, kontrol noktası gen nakavtı, baskın negatif reseptörler, kemokin reseptörleri, bir hücrede birden fazla CAR'ı eksprese etme, hücre içi sinyallemeyi geliştirmek için CAR'ın modifikasyonu ve tükenmeyi önlemek için konakçı düzenleyici mekanizmalardan yararlanmak için önceden belirlenmiş lokuslara, örneğin TRAC lokusuna entegrasyon dahil olmak üzere çoklu yaklaşımlar geliştirilmiştir 6,7,8. Bu yaklaşımların çoğu ya daha büyük genetik kargo ve/veya bölgeye özgü entegrasyon gerektirir. Alternatif yaklaşımlar ayrıca T hücrelerinin hücre içi neoantijenlerihedeflemesine izin vermek için transgenik TCR'lerin kullanılmasını içerir 9,10. Bununla birlikte, bu, TCR'nin hem neoantijen epitopuna hem de HLA molekülüne özgüllüğe sahip olmasını gerektirme gibi önemli bir dezavantaja sahiptir ve nihai terapötik ürünün kullanımını, aynı kökenli HLA'yı eksprese eden hastalarla sınırlandırır. Ayrıca, birçok tümör immünoterapiye yanıt olarak HLA ekspresyonunu değiştirir veya azaltır, bu da transgenik TCR'leri eksprese eden T hücrelerinin etkinliğini büyük ölçüde azaltır11.
Klinik çalışmalardaki çoğu CAR-T veya TCR-T hücre tedavisi, lentivirüs veya gamaretrovirüs gibi retroviral vektörler kullanılarak üretilir ve orta büyüklükte kargo ile yüksek entegrasyon frekansı elde edilir. Bununla birlikte, viral vektörler, mevcut iyi üretim uygulamaları (cGMP) gereklilikleri ve insersiyonel mutajenez riski yaratan spesifik olmayan entegrasyon profilleri nedeniyle uzun üretim zaman çizelgelerinden muzdariptir 12,13. Ayrıca, kargo 5 kb'yi aşarsa yüksek titrelerde transgenik retrovirüs üretmek zor olabilir14. Rekombinant adeno-ilişkili virüsten (rAAV) türetilenler gibi diğer vektörler, doğal olarak entegre olmazlar, ancak DNA donör şablonunu çekirdeğe taşıyabilir ve geleneksel homolojiye yönelik rekombinasyon (HDR) aracılı genom mühendisliğini kolaylaştırmak için CRISPR / Cas9 ile kombinasyon halinde kullanılabilir. Bununla birlikte, bu virüsler aynı zamanda uzun ve karmaşık üretim iş akışlarına sahiptir ve kargo boyutu (<4,7 kb) ve uzun homoloji kolları (500-1000 bp) içerme ihtiyacı ile sınırlıdır15,16,17,18.
Primer insan lenfositlerinde transpozonlar veya hedeflenen nükleazlar ve bir DNA donör şablonunun bir kombinasyonu kullanılarak viral olmayan genom mühendisliği bildirilmiştir 8,19,20. Bununla birlikte, bu yaklaşımlar, lenfositlerde21 eksprese edilen sitoplazmik DNA sensörleri tarafından tanınmayı takiben sitoplazmadaki çıplak DNA moleküllerine toksik tepki ile sınırlıdır. Transfeksiyon sırasında bu DNA algılama yollarının küçük moleküllü inhibitörlerini kullanmak için girişimlerde bulunulmuştur, ancak bu yolların fazlalığı, cGMP protokollerindekullanımlarını zorlaştırabilir 22. Özellikle, Uyuyan Güzel, PiggyBac ve Tc Buster gibi transpozon vektörleri, büyük genetik kargonun yüksek verimlilikle entegrasyonuna izin verir, ancak spesifik olmayan bir entegrasyon profilinesahiptir 23,24. HDR için hedeflenen bir nükleaz ile kombinasyon halinde plazmid, doğrusal veya tek sarmallı DNA şablonları kullanılarak viral olmayan, hedeflenmiş transgen entegrasyonu çekici bir alternatiftir, ancak özellikle giderek daha büyük genetik kargolarda düşük verimlilik nedeniyle sınırlandırılmıştır ve 1,5 kb'nin üzerinde kargo kullanıldığında %10'dan daha az verimlilik bildirilmiştir 8,19.
Burada, Webber, Johnson ve ark. tarafından tarif edildiği gibi, birincil insan T hücrelerine büyük DNA yüklerinin viral olmayan, homoloji aracılı uç birleştirme (HMEJ) yerleştirilmesi için adım adım protokolü sunuyoruz.25. HMEJ, geleneksel HDR ile karşılaştırıldığında büyük DNA kargosunun yüksek etkili hedefli entegrasyonuna izin vermek için Cas9 gRNA hedef bölgeleriyle çevrili kısa 48 bp homoloji kolları kullanır. Birincil T hücrelerinde plazmit DNA'nın sitotoksisitesini azaltmanın bir yöntemi, mini daireler veya nanoplazmitler25 gibi küçültülmüş omurgalara sahip plazmitlerin kullanılmasıdır. Mini daireler, plazmit amplifikasyonundan sonra rekombinasyon yoluyla replikasyon ve antibiyotik direnç geninin kökeninin eksizyonu ile üretilen minyatür plazmit vektörleridir; T hücrelerinin viral olmayan mühendisliğini iyileştirdiği ve hücre toksisitesini azalttığı gösterilmiştir23,24. Nanoplazmitler ayrıca, minimal bir replikasyon kaynağı ve geleneksel olmayan bir seçim markörü26 kullanılarak gerçekleştirilen azaltılmış bir toplam boyuta sahiptir. Deneyimlerimize göre, mini daire ve nanoplazmid vektör platformları, geleneksel plazmitlere göre verimlilikte karşılaştırılabilir bir iyileşme ve azaltılmış toksisite sunar25.
Burada, reaktif iletimi ve reaktif bileşiminin zamansal optimizasyonunu sinerji haline getiren ayrıntılı bir protokolün yanı sıra, immünoterapilerde ve çeşitli diğer uygulamalarda kullanılmak üzere büyük (>6.3 kb), multisistronik DNA şablonları ile birincil insan T hücrelerinin yüksek etkinlik, bölgeye özgü genom mühendisliği elde etmek için HMEJ ve CRISPR/Cas9 kullanıyoruz25. Özellikle genetik kargolarda >1.5 kb25,27) olmak üzere, 1 kb homoloji kolları kullanarak HMEJ ve 48 bp homoloji kolları ile geleneksel HR'ye göre daha yüksek entegrasyon sağlıyoruz. Daha da önemlisi, HMEJ onarımı yoluyla tasarlanan T hücreleri, tükenmemiş bir fenotip25'i korurken mükemmel hücre genişlemesini, sitotoksisiteyi ve sitokin üretimini korur. Bu protokol, cGMP standartlarına kolayca uyarlanabilir ve klinik olarak ilgili hücre sayılarına ölçeklenebilir, bu da çeşitli klinik çalışmalarda gelecekteki kullanıma hızlı bir geçiş sağlar25.
Protokol
Tüm deneyler, kan yoluyla bulaşan patojenler için evrensel önlemler, steril / aseptik teknik, kişisel koruyucu ekipman ve uygun biyogüvenlik seviyesi 2 (BSL2) ekipmanı ile gerçekleştirildi. Burada açıklanan tüm deneyler, Minnesota Üniversitesi'ndeki Kurumsal Biyogüvenlik Komitesi (IBC) tarafından onaylanmıştır. Bu çalışmada kullanılan reaktiflerin ve ekipmanların detayları Malzeme Tablosunda listelenmiştir.
1. Medya hazırlığı
- T hücresi Komple Medya (TCM) için takviyeler hazırlayın.
- Filtreyle sterilize edilmiş 100 mM asetik asit ekleyerek rekombinant insan IL-2'yi 12000 IU/mL konsantrasyona yeniden sulandırın ve pipetleme ile iyice karıştırın. Daha sonra, 1x Fosfat Tamponlu Salin (1x PBS) içinde filtreyle sterilize edilmiş% 0.2 Sığır Serum Albümini (BSA) ile 6000 IU / mL'lik bir konsantrasyona seyreltin ve genişletilmiş bir depolama çözeltisi yapmak için pipetleme ile iyice karıştırın.
- Rekombinant insan IL-7'yi steril su ile 200 ng/μL konsantrasyona kadar sulandırın ve pipetleyerek iyice karıştırın. Ardından, PBS'de filtreyle sterilize edilmiş %0,2 BSA ile 100 ng/μL'lik bir konsantrasyona kadar seyreltin ve uzun süreli bir saklama çözeltisi elde etmek için pipetleme ile iyice karıştırın.
- Rekombinant insan IL-15'i steril su ile 200 ng/μL konsantrasyona kadar sulandırın ve pipetleyerek iyice karıştırın. Ardından, PBS'de filtreyle sterilize edilmiş %0,2 BSA ile 100 ng/μL'lik bir konsantrasyona kadar seyreltin ve uzun süreli bir saklama çözeltisi elde etmek için pipetleme ile iyice karıştırın.
NOT: Her sitokini altı aya kadar -20 °C ila -80 °C arasında küçük alikotlarda tutun ve tekrarlanan donma/çözülme döngülerinden kaçının.
- TCM ortamını hazırlayın.
- T-Hücre Genişlemesi bazal ortamına% 2.6 T Hücresi Genişleme Takviyesi ve% 2.5 Bağışıklık Hücresi Serumu Replasmanı ekleyerek bazal ortamı hazırlayın. Ayrıntılar için Malzeme Tablosuna bakın.
- Bazal ortama %1 L-Glutamin, %1 Penisilin / Streptomisin, 10 mM N-Asetil-L-sistein, 300 IU / mL Rekombinant İnsan IL-2, 5 ng / mL Rekombinant İnsan IL-7 ve 5 ng / mL Rekombinant İnsan IL-15 ekleyerek TCM'yi hazırlayın.
- Ortamı 0,22 μm'lik bir filtreden steril bir ortam şişesine geçirerek TCM'yi sterilize edin.
- TCM'yi 2 haftaya kadar 4 ° C'de tutun.
- T-Hücre Genişlemesi bazal ortamına% 2.6 T Hücresi Genişleme Takviyesi ve% 2.5 Bağışıklık Hücresi Serumu Replasmanı ekleyerek bazal ortamı hazırlayın. Ayrıntılar için Malzeme Tablosuna bakın.
- Kurtarma medyasını hazırlayın.
- T Hücresi Genişlemesi bazal ortamına% 2.6 T Hücresi Genişleme Takviyesi ve% 2.5 Bağışıklık Hücresi Serumu Replasmanı ekleyerek bazal ortamı hazırlayın.
- Bazal ortama %1 L-Glutamin, 10 mM N-Asetil-L-sistein, 300 IU/mL Rekombinant İnsan IL-2, 5 ng/mL Rekombinant İnsan IL-7, 5 ng/mL Rekombinant İnsan IL-15 ve 1 μg/mL DNaz ekleyerek Geri Kazanım ortamı hazırlayın.
NOT: Elektroporasyon sonrası hücre geri kazanımını azaltabileceğinden, Kurtarma ortamına Penisilin / Streptomisin eklemeyin. - Ortamı 0,22 μm'lik bir filtreden sterilize edilmiş bir ortam şişesine geçirerek Geri Kazanım ortamını sterilize edin.
- Kurtarma ortamını 2 haftaya kadar 4 °C'de tutun.
- Bazal ortama %1 L-Glutamin, 10 mM N-Asetil-L-sistein, 300 IU/mL Rekombinant İnsan IL-2, 5 ng/mL Rekombinant İnsan IL-7, 5 ng/mL Rekombinant İnsan IL-15 ve 1 μg/mL DNaz ekleyerek Geri Kazanım ortamı hazırlayın.
- T Hücresi Genişlemesi bazal ortamına% 2.6 T Hücresi Genişleme Takviyesi ve% 2.5 Bağışıklık Hücresi Serumu Replasmanı ekleyerek bazal ortamı hazırlayın.
2. Knock-in site seçimi ve şablon tasarımı
- Knock-in için bir genomik hedef konum belirleyin.
NOT: Hedef hücre üzerinde minimum etki isteniyorsa, AAVS1 gibi güvenli bir liman konumu kullanılabilir. Gen ekspresyonunu bozan bir hedef bölge, aynı anda hedef geni devre dışı bırakmak ve ilgilenilen yapıyı tek bir adımda devre dışı bırakmak için kullanılabilir. Endojen bir gen ile çerçeve içi entegre etmek üzere tasarlanmış bir hedef bölge ve donör, gen füzyonları oluşturmak için veya yapıyı endojen bir promotörün transkripsiyonel kontrolü altına yerleştirmek için bir 2A ribozomal atlama dizisi ile kombinasyon halinde kullanılabilir (Şekil 1). - Kargo şablonunu, ifade kaseti, entegrasyon bölgesiyle eşleşen 48 bp homoloji kolu ile çevrili ve gRNA hedef bölgelerini doğrusallaştırarak çevrelenecek şekilde tasarlayın.
NOT: Plazmid doğrusallaştıran gRNA, insan veya fare genomu28'te bulunmayan bir diziyi (GGGAGGCGTTCGGGCCACAG) veya genomik hedef gRNA dizisini hedeflemek için tasarlanmış evrensel bir gRNA28 (UgRNA) (GGGAGGCGUUCGGGCCACAG) olabilir, öyle ki tek bir gRNA, genomik knock-in bölgesinde kesebilir ve ayrıca kargo şablonunu doğrusallaştırabilir (Şekil 1). Kargo şablonu için vektör olarak nanoplazmitler veya mini daireler kullanılabilir. Standart plazmitler, bazı dönüştürülmüş hatlar için nanoplazmitler veya mini daireler yerine kullanılabilir, ancak T hücreleri gibi daha hassas birincil hücrelerde daha az çarpma ve hücre genişlemesi ile sonuçlanacaktır.
3. T hücresi izolasyonu ve aktivasyonu
- Ticari bir satıcıdan T hücreleri alın veya immünomanyetik sıralama18 kullanarak PBMC'lerden T hücrelerini izole edin.
- Deney için gerekli T hücrelerinin sayısını belirleyin ve ardından TCM'de mL başına 1 ila 106 hücre konsantrasyonunda T hücrelerini çözün, yıkayın × yeniden süspanse edin. Bu karışımın 1 mL'sini 24 oyuklu bir plakanın kuyucuklarına ekleyin.
- Boncukları yeniden süspanse etmek için T hücresi aktivasyon boncuklarını vorteksleyin ve boncukları her bir oyuğa 2: 1 boncuk: hücre oranında ekleyin. T hücre mühendisliğine başlamadan önce bu hücreleri 37 °C ve% 5 CO2 inkübatörde 36 saat inkübe edin.
NOT: Aktivasyondan sonra 36 saatten daha az veya daha uzun bir inkübasyon süresi, T hücresi knock-in verimliliğini, canlılığını ve mühendislik sonrası hücre genişlemesiniazaltacaktır 25.
- Boncukları yeniden süspanse etmek için T hücresi aktivasyon boncuklarını vorteksleyin ve boncukları her bir oyuğa 2: 1 boncuk: hücre oranında ekleyin. T hücre mühendisliğine başlamadan önce bu hücreleri 37 °C ve% 5 CO2 inkübatörde 36 saat inkübe edin.
4. T hücre mühendisliği
- Deneysel kontroller de dahil olmak üzere deneyi tamamlamak için gerekli deneysel koşulları belirleyin.
NOT: Epizomal ekspresyon için bir kontrol olarak yalnızca plazmit koşulunun dahil edilmesi önemlidir. Bir plazmit donörünün yokluğunda kimyasal olarak modifiye edilmiş hedef bölge gRNA28 ve/veya Cas9 mRNA ile bir elektroporasyon koşulu da negatif kontrol olarak kullanılabilir. - Bir kurtarma plakası hazırlayın.
- Deneysel kontroller de dahil olmak üzere her deneysel koşul için, 24 oyuklu bir doku kültürü plakasının bir kuyusuna 300 μL geri kazanım ortamı ekleyin ve plakayı 37 ° C ve% 5 CO2 inkübatörde ısıtın.
NOT: Alternatif hücre numaraları, kurtarma hacmi ve koşulları için Tablo 1'e bakın.
- Deneysel kontroller de dahil olmak üzere her deneysel koşul için, 24 oyuklu bir doku kültürü plakasının bir kuyusuna 300 μL geri kazanım ortamı ekleyin ve plakayı 37 ° C ve% 5 CO2 inkübatörde ısıtın.
- T hücrelerini hazırlayın.
- Uyarılmış T hücresi / T hücresi aktivasyon boncuk karışımını hasat edin, canlı hücreleri sayın ve T hücreleri / T hücresi aktivasyon boncuklarını 1.5 mL'lik bir mikrosantrifüj tüpünde TCM ortamında 1-5 × 10⁶ hücre / mL konsantrasyonda yeniden süspanse edin.
- Mikrosantrifüj tüpünü bir mıknatısa yerleştirin ( Malzeme Tablosuna bakınız) ve 3 dakika inkübe etmesine izin verin.
NOT: T hücrelerini aktive etmek için T hücresi aktivasyon boncukları kullanılıyorsa, boncukların çıkarılması gerekir. Alternatif bir aktivasyon yöntemi kullanılırsa boncuk çıkarılması gerekli olmayabilir. - İnkübasyondan sonra ve mıknatıstan çıkarmadan, ortamı ve T hücrelerini yeni bir tüpe aktarın. Bu tüp, T hücresi aktivasyon boncukları çıkarılmış uyarılmış T hücreleri içerir. T hücrelerini yeniden sayın ve bunları 14 mL veya 50 mL konik tüplere yerleştirin. Tüpü 1× PBS ile doldurun ve hücreleri santrifüjlemeye hazır olana kadar 37 °C ve% 5 CO2 inkübatörde tutun.
- T hücresi karışımını hazırlayın.
- Elektroporasyon koşullarının sayısını artı bir (n + 1) çarparak gereken Ana Karışım Tamponu (%82 Birincil Hücre Çözeltisi ve %18 Takviye) miktarını belirleyin. (örneğin, planlanan 6 elektroporasyon koşulu + 1 = 7.7.7 koşul başına 7 × 18 μL = 126 μL Master Mix Buffer).
NOT: Bu hacimler, bu çalışmada kullanılan 4D elektroporasyon sistemine özgüdür (bkz. Malzeme Tablosu). Diğer elektroporasyon sistemleri farklı hacimler ve konsantrasyonlar gerektirecektir. Birincil Hücre Çözeltisi Hacmi = Gereken toplam Ana Karışım Tamponu hacmi × 0.82 ve Ek Hacim = Gereken toplam Ana Karışım Tamponu hacmi x 0.18. (ör. 0.82 × 126 μL = 103.32 μL Birincil Hücre Çözeltisi ve 0.18 × 126 μL = 22.68 μL). - Ana Karışım Tamponu yapmak için Birincil Hücre Çözeltisini ve Takviyeyi karıştırın.
- T hücrelerini 1x PBS'de 200 × g'da (oda sıcaklığında) 10 dakika santrifüjleyin ve süpernatanı aspire edin.
- Master Mix Buffer'daki T hücrelerini, 18 μL Master Mix Buffer başına 1 ×10 6 hücre konsantrasyonunda yeniden süspansiyon haline getirin.
- Elektroporasyon koşullarının sayısını artı bir (n + 1) çarparak gereken Ana Karışım Tamponu (%82 Birincil Hücre Çözeltisi ve %18 Takviye) miktarını belirleyin. (örneğin, planlanan 6 elektroporasyon koşulu + 1 = 7.7.7 koşul başına 7 × 18 μL = 126 μL Master Mix Buffer).
- Reaktifleri hazırlayın.
- Stok çözeltilerinin konsantrasyonlarını kullanarak, elektroporasyon başına belirtilen kütleyi elde etmek için gereken HMEJ plazmidinin, hedef bölge gRNA'sının, plazmid doğrusallaştırma gRNA'sının (UgRNA) ve Cas9 mRNA'sının hacmini belirleyin (Tablo 2).
- Her koşul için buz üzerinde 96 oyuklu bir plakanın kuyusuna reaktifler ekleyin.
- Elektroporasyon karışımını hazırlayın.
- 96 oyuklu plakanın her bir oyuğuna gerektiği gibi 18 μL T hücresi Karışımı ekleyin.
- Tüm elektroporasyon koşullarının nihai toplam 22 μL hacimde olduğundan emin olmak için gerektiği kadar ek Master Mix Buffer ekleyin.
NOT: 22 μL hacim, olası pipetleme kaybını hesaba katmak için %10'luk bir fazla hacim içerir.
- Elektroporasyon gerçekleştirin.
- Ekipmanı açın ve programı yükleyin.
- İhtiyaç duyulan küvet sayısını belirleyin ve gerekli sayıda küveti açın. Küvetin ve kapağın bir ucunu işaretleyin ve kapağı küvetten çıkarın.
NOT: 20 μL reaksiyonlar için küvet başına 16 kuyu vardır. - 96 kuyulu plakanın kuyularından 20 μL Elektroporasyon Karışımını 1-2 kez yukarı ve aşağı nazikçe pipetleyin ve küvetlere yükleyin.
- Kapağı geriye doğru takmaktan kaçınmak için adım 4.7.2'de yapılan işaretlemeyi kullanarak küveti tekrar kapatın. Olası hava kabarcıklarını gidermek için küvete 3-5 kez vurun ve ardından ekipmanı yerleştirin ve küveti elektrostatik hale getirin.
- Küveti ekipmandan nazikçe çıkarın, davlumbazın içine yerleştirin ve hücrelerin oda sıcaklığında 15 dakika dinlenmesine izin verin.
- Geri kalanından sonra, geri kazanım plakasından 80 μL ısıtılmış geri kazanım ortamını çekin ve her bir numuneye ekleyin (doğrudan hücrelere değil, küvetin yan tarafına ekleyin), bir kez çok nazikçe yukarı ve aşağı pipetleyin ve toplam 100 μL hacmi geri kazanım plakasına geri aktarın.
NOT: Hücreler elektroporasyon sonrası çok kırılgandır. Nazik kullanım kritik derecede önemlidir. - Hücreleri 37 ° C ve% 5 CO2'de 30 dakika inkübe edin.
- Hücreleri 1 × 10⁶ hücre / mL konsantrasyona seyreltmek için TCM ekleyin. Ertesi gün ortamın yarısını ve daha sonra her 3-4 günde bir, deney süresince 2× sitokin konsantrasyonlu TCM ile değiştirin.
- 1 × 10⁶ hücre / mL'ye seyreltildikten sonra, her bir oyuğa 0.5: 1 boncuk oranında T hücresi aktivasyon boncukları ekleyerek hücreleri yeniden uyarın: hücre.
NOT: Hücreler hızla genişliyor olabilir. Yarım ortam değişikliklerinin yapılması gerekebilir ve hücrelerin daha büyük kuyucuklara taşınması gerekebilir. - 3. günde, T hücresi aktivasyon boncuklarını çıkarın.
- İstenilen büyüme süresinden sonra hücreleri hasat edin.
NOT: Küvette kullanılmayan kuyular varsa, kullanılmış kuyular işaretlenebilir ve küvetin tamamı 50 mL'lik bir konik içine yerleştirilebilir ve ileride kullanılmak üzere 4 °C'de saklanabilir.
Sonuçlar
Burada, "Dev Minicircle" yapısı olarak adlandırılan büyük (>6.3 kb) bir multisistronik şablon, CRISPR / Cas9 düzenlemesi kullanılarak birincil insan T hücrelerindeki TRAC lokusuna entegre edildi; TRAC'a özgü gRNA, evrensel gRNA ve negatif kontrol olarak kullanılan Cas2 mRNA'dan yoksun bir duruma sahip TRAC'a özgü bir gRNA (TCTCAGCTGGTACACGGC), UgRNA ve HMEJ nanoplazmidi (Şekil 9A). Dev Mini Çember yapısı, TRAC'a özgü gRNA, evrensel gRNA ve Cas9 mRNA'yı içeren numuneler, GFP ekspresyonu ölçülürken ortalama #.35'lik bir knock-in oranına sahipti (#.5 ± 5.247), negatif kontrol ise GFP ekspresyonu göstermedi (Şekil 2B). Deneysel koşullar arasında kat genişlemesi (Şekil 2C) ve canlılık (Şekil 2D) açısından önemli bir fark yoktu. Bu sonuçlar, mükemmel hücre canlılığını ve hücre genişlemesini korurken çok büyük bir şablonun yüksek verimli bir şekilde devreye girdiğini göstermektedir.

Şekil 1: HMEJ yapı tasarımının şematik gösterimi. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
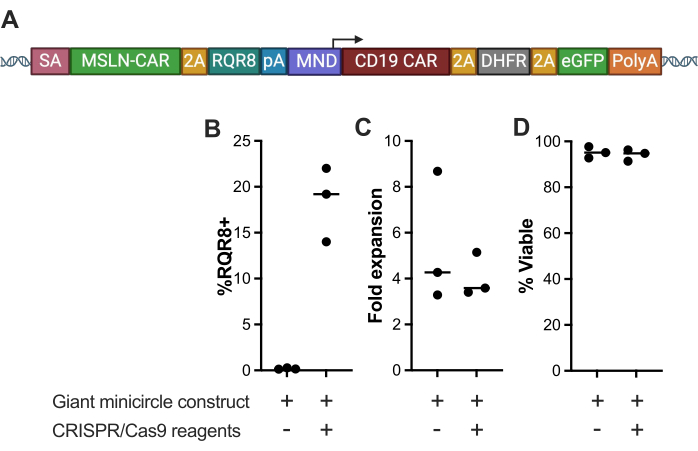
Şekil 2: Dev mini daire yapısı ile elektroporasyona tabi tutulan T hücrelerinin karakterizasyonu. (A) Dev Mini Çember yapısının şematik gösterimi, bir GSG bağlayıcı, bir anti-CD19 CAR ve MND promotörü altında bir DHFR mutein ve eGFP ile TRAC promotörü altında bir anti-mezotelin CAR ve RQR8'i kodlayan >büyük (6.3 kb) bir multisistronik şablon. (B) RQR8 ekspresyon yüzdesi, (C) kat genişlemesi ve (D) Dev Mini Daire yapısı ve CRISPR-Cas9 reaktifleri ile elektroporasyondan dokuz gün sonra T hücrelerinin canlılığı, CRISPR-Cas9 reaktifleri olmayan Dev Mini Daire ile elektroporasyonlu negatif bir kontrol ile karşılaştırıldığında. (***p < 0.001). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
| Plaka Boyutu | Küvet Hacmi | Hücreler/Kuyu | Kurtarma Ortamının Hacmi | NAC ile 1x TCM hacmi | Toplam Final Hacmi |
| 24 oyuklu plaka | 22/22 μL | 1-3 x 10⁶ | 300 μL | 680 μL | 1 mL |
| 6 oyuklu plaka | 100/110 μL | 4-20 x 106 | 1 mL | 2,9 mL | 4 mL |
| 24 oyuklu G-Rex plakası | 20-110 μL | 1-20 x 106 | 400 μL | 5.6 mL | 6 mL |
Tablo 1: Küvetler ve geri kazanım plakaları için hücre konsantrasyonları.
| Küvet Boyutu | Şablon Plazmid | Hedef bölge gRNA'sı | Plazmid doğrusallaştırma gRNA | Cas9 mRNA |
| 20 μL | 1-2 μg (1 μg) | 1-3 μg (1 μg) | 1-3 μg (1 μg) | 1-3 μg (1,5 μg) |
| 100 μL | 5-10 μg (5 μg) | 5-15 μg (5 μg) | 5-15 μg (5 μg) | 5-15 μg (5 μg) |
Tablo 2: Gerekli CRISPR/Cas9 reaktiflerinin ve DNA şablonunun miktarı.
Tartışma
Evlat edinen hücre tedavisi (ACT) gelişmeye devam ettikçe, virüs bazlı vektörlerle ilişkili yüksek maliyet ve karmaşıklık olmadan bağışıklık hücrelerini tasarlamak için verimli, viral olmayan yöntemlere yönelik artan bir talep vardır. Bu alandaki önemli bir hedef, tasarlanmış hücresel ürünlerin tutarlılığını, güvenliğini ve işlevini iyileştiren sahaya özgü entegrasyonun sağlanmasıdır. Son çalışmalar, raportör genler ve tek CAR veya TCR dizileri29 gibi küçük genetik yapıların başarılı bir şekilde viral olmayan entegrasyonunu göstermiş olsa da, bu yöntemlerin daha büyük, çok genli ekspresyon kasetlerine genişletilmesine ihtiyaç vardır. Bu daha büyük kasetler, kemokin reseptörlerinin eklenmesi veya sitokin zırhlaması gibi bağışıklık hücresi fonksiyonunu geliştirmek, özgüllüğü iyileştirmek (örneğin, mantık kapısı sistemleri) veya öldürme anahtarlarıyla güvenliği artırmak için gereklidir. Bu amaçla, daha büyük genetik kargonun bölgeye özgü verimli entegrasyonunu sağlayabilen viral olmayan yaklaşımlar geliştirmeye çalıştık25.
Protokol boyunca birkaç kritik adım vardır. Toksisiteyi en aza indirmek için yüksek kaliteli, temiz nanoplazmid veya mini daire gereklidir. Bu çalışmada, ticari olarak hazırlanmış plazmitler en iyi performansı göstermiştir. T hücresi aktivasyonu ile elektroporasyon arasındaki 36 saatlik süre de ideal sonuçlar için kritik öneme sahiptir. Hücreler iyileşirken elektroporasyondan hemen sonra hücre elleçleme ve manipülasyonunu en aza indirmek de önemlidir. Mümkün olan en iyi kargo entegrasyon frekansını ve hücre genişlemesini elde etmek için elektroporasyondan sonra kültüre yeni T hücresi aktivasyon boncuklarının yeniden eklenmesi de önemlidir.
Protokol, burada açıklandığı gibi, ticari olarak temin edilebilen bir elektroporasyon sistemi kullanır (bkz. Diğer elektroporasyon sistemleri de uygun olabilir, ancak muhtemelen cihaza özgü elektroporasyon koşullarının optimizasyonunu ve muhtemelen elektroporasyon sonrası hücre kullanımını gerektirecektir.
İnsan T hücrelerinin HMEJ aracılı mühendisliğinde çeşitli sınırlamalar vardır. Protokol plazmid ile çalışabilir, ancak optimal sonuçlar, kargo teslimatı için standart plazmitler kadar kolay üretilemeyen nanoplazmitlerin veya mini dairelerin kullanılmasını gerektirir. Ayrıca, çok büyük, multisistronik bir kasetin başarılı bir şekilde entegrasyonu gösterilmiş olsa da, gen entegrasyon frekansının düşmeye başlayacağı bir üst kargo limiti olması muhtemeldir.
Bu çalışma, HMEJ'yi, özellikle kanser immünoterapisi bağlamında, tasarlanmış T hücrelerinin üretimi için güçlü ve verimli bir viral olmayan genom mühendisliği yöntemi olarak sunmaktadır. Bu yaklaşım, geleneksel viral vektörlerin sınırlamalarının üstesinden gelerek, gelişmiş işlevselliğe sahip genetiği değiştirilmiş T hücreleri üretmek için uygun maliyetli, ölçeklenebilir ve daha güvenli bir alternatif sunar. Büyük, çok genli kasetleri hassas bir şekilde entegre etme yeteneği, kanserler, bulaşıcı hastalıklar ve otoimmün bozukluklar dahil olmak üzere çok çeşitli hastalıkları tedavi etmek için bağışıklık hücrelerinin mühendisliği için yeni olanaklar sunar. Ayrıca, HMEJ yönteminin klinik düzeyde üretim süreçleriyle uyumluluğu, gerçek dünyadaki terapötik ortamlarda pratik uygulanabilirliğini sağlayarak yakın gelecekte daha erişilebilir ve verimli hücre bazlı tedavilerin önünü açmaktadır.
Açıklamalar
B.R.W. ve B.S.M., bu makaledeki çalışmayı desteklemek için Intima Biosciences tarafından finanse edilen Sponsorlu Araştırma Anlaşmalarının baş araştırmacılarıdır. Bu yazıda özetlenen yöntem ve yaklaşımları kapsayan patentler dosyalanmıştır.
Teşekkürler
BRW, Keşif ve Çeviri Ofisi'nden fon sağladığını kabul eder, NIH hibeleri R21CA237789, R21AI163731, P01CA254849, P50CA136393, U54CA268069, R01AI146009, DOD hibeleri HT9425-24-1-1005, HT9425-24-1-1002, HT9425-24-1-0231 ve Çocuk Kanseri Araştırma Fonu, Fanconi Anemi Araştırma Fonu ve Randy Shaver Kanser ve Toplum Fonu. BSM, Keşif ve Çeviri Ofisi'nden fon sağlar, NIH hibeleri R01AI146009, R01AI161017, P01CA254849, P50CA136393, U24OD026641, U54CA232561, P30CA077598, U54 CA268069, DOD hibeleri HT9425-24-1-1005, HT9425-24-1-1002, HT9425-24-1-0231 ve Çocuk Kanseri Araştırma Fonu, Fanconi Anemi Araştırma Fonu ve Randy Shaver Kanser ve Toplum Fonu.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Asetik Asit | Kırlangıç Sigma | A6283 | |
| 1x DPBS, kalsiyum yok, magnezyum yok | Thermo Fisher Scientific | 14190144 | |
| %2.5 CTS Bağışıklık Hücresi Serumu Replasmanı | Thermo Fisher Scientific | A2596101 | |
| Amaxa P3 Birincil Hücre 4D-Nükleofaktör X Kiti L | Lonza | V4XP-3024 | |
| Amaxa P3 Birincil Hücre 4D-Nükleofaktör X Kiti S | Lonza | V4XP-3032 | |
| Sığır Serumu Albümin | Thermo Fisher Bilimsel | 15561020 | |
| Kimyasal Olarak Modifiye Edilmiş Kılavuz RNA'lar | Entegre DNA Teknolojileri | ve | Özel tasarım |
| CleanCap Cas9 mRNA | Trilink | L-7206 | |
| CTS OpTmizer T hücresi Genişletme Ortamı SFM + OpTmizer T hücresi Genişleme Takviyesi | Thermo Fisher Scientific | A1048501 | |
| DNase I | Kök Hücre Teknolojileri | 07900 | |
| Dynabeads İnsan T-Aktivatörü CD3/CD28 | Thermo Fisher Scientific | 11141D | |
| DynaMag-2 | Thermo Fisher Scientific | 12321D | |
| İnsan IL15 | PeproTech | 200-15 | |
| İnsan IL2 | PeproTech | 200-02 | |
| İnsan IL7 | PeproTech | 200-07 | |
| L-Glutamin | Thermo Scientific | ||
| Lonza 4D nucelofector Çekirdek | Lonza | AAF-1003B | |
| Lonza 4D nükleofektör X | Ünitesi Lonza | AAF-1003X | |
| Minicircle | Sistem Biyobilimler | MN910A-1 | Özel tasarım |
| N-Asetil-L-sistein | MiliporeSigma | A9165 | |
| Nanoplazmid | Aldevron | na | Özel tasarım |
| Penisilin / Streptomisin | Thermo Fisher Scientific | 15-140-122 |
Kaynaklar
- Sun, L., Su, Y., Jiao, A., Wang, X., Zhang, B. T cells in health and disease. Signal Transduct Target Ther. 8 (1), 235(2023).
- Takahama, Y. Journey through the thymus: stromal guides for T-cell development and selection. Nature reviews. Immunology. 6 (2), 127-135 (2006).
- Dotti, G., Gottschalk, S., Savoldo, B., Brenner, M. K. Design and development of therapies using chimeric antigen receptor-expressing T cells. Immunol Rev. 257 (1), 107-126 (2014).
- DeRenzo, C., Gottschalk, S. Genetic modification strategies to enhance CAR T cell persistence for patients with solid tumors. Front Immunol. 10, 218(2019).
- Liu, X., et al. A chimeric switch-receptor targeting PD1 augments the efficacy of second-generation CAR T cells in advanced solid tumors. Cancer Res. 76 (6), 1578-1590 (2016).
- Yeku, O. O., Purdon, T. J., Koneru, M., Spriggs, D., Brentjens, R. J. Armored CAR T cells enhance anti-tumor efficacy and overcome the tumor microenvironment. Sci Rep. 7 (1), 10541(2017).
- Schober, K., et al. Orthotopic replacement of T-cell receptor α- and β-chains with preservation of near-physiological T-cell function. Nat Biomed Eng. 3 (12), 974-984 (2019).
- Roth, T. L., et al. Reprogramming human T cell function and specificity with non-viral genome targeting. Nature. 559 (7714), 405-409 (2018).
- Chandran, S. S., Klebanoff, C. A. T cell receptor-based cancer immunotherapy: Emerging efficacy and pathways of resistance. Immunol Rev. 290 (1), 127-147 (2019).
- Rosenberg, S. A., Restifo, N. P. Adoptive cell transfer as personalized immunotherapy for human cancer. Science (New York, N.Y.). 348 (6230), 62-68 (2015).
- Campoli, M., Ferrone, S. HLA antigen and NK cell activating ligand expression in malignant cells: a story of loss or acquisition. Semin Immunopathol. 33 (4), 321-334 (2011).
- Walther, W., Stein, U. Viral vectors for gene transfer: a review of their use in the treatment of human diseases. Drugs. 60 (2), 249-271 (2000).
- Bulcha, J. T., Wang, Y., Ma, H., Tai, P. W. L., Gao, G. Viral vector platforms within the gene therapy landscape. Signal Transduct Target Ther. 6 (1), 53(2021).
- Kumar, M., Keller, B., Makalou, N., Sutton, R. E. Systematic determination of the packaging limit of lentiviral vectors. Hum Gene Ther. 12 (15), 1893-1905 (2001).
- Samulski, R. J., Muzyczka, N. AAV-mediated gene therapy for research and therapeutic purposes. Annu Rev Virol. 1 (1), 427-451 (2014).
- Wang, D., Tai, P. W. L., Gao, G. Adeno-associated virus vector as a platform for gene therapy delivery. Nature reviews. Drug Discov. 18 (5), 358-378 (2019).
- Pomeroy, E. J., et al. a genetically engineered primary human natural killer cell platform for cancer immunotherapy. Mol Ther. 28 (1), 52-63 (2020).
- Johnson, M. J., Laoharawee, K., Lahr, W. S., Webber, B. R., Moriarity, B. S. Engineering of primary human B cells with CRISPR/Cas9 targeted nuclease. Sci Rep. 8 (1), 12144(2018).
- Nguyen, D. N., et al. Polymer-stabilized Cas9 nanoparticles and modified repair templates increase genome editing efficiency. Nat Biotechnol. 38 (1), 44-49 (2020).
- Lock, D., et al. Automated, scaled, transposon-based production of CAR T cells. J Immunother Cancer. 10 (9), e005189(2022).
- Semenova, N., et al. Multiple cytosolic DNA sensors bind plasmid DNA after transfection. Nucleic Acids Res. 47 (19), 10235-10246 (2019).
- Wimberger, S., et al. Simultaneous inhibition of DNA-PK and Polϴ improves integration efficiency and precision of genome editing. Nat Comm. 14 (1), 4761(2023).
- Monjezi, R., et al. Enhanced CAR T-cell engineering using non-viral Sleeping Beauty transposition from minicircle vectors. Leukemia. 31 (1), 186-194 (2017).
- Kay, M. A., He, C. -Y., Chen, Z. -Y. A robust system for production of minicircle DNA vectors. Nat Biotechnol. 28 (12), 1287-1289 (2010).
- Webber, B. R., et al. Cas9-induced targeted integration of large DNA payloads in primary human T cells via homology-mediated end-joining DNA repair. Nat Biomed Eng. 8, 1553-1570 (2024).
- Williams, J. A., Paez, P. A. Improving cell and gene therapy safety and performance using next-generation Nanoplasmid vectors. Mol Ther Nucleic Acids. 32, 494-503 (2023).
- Wierson, W. A., et al. Efficient targeted integration directed by short homology in zebrafish and mammalian cells. eLife. 9, 53968(2020).
- Hendel, A., et al. Chemically modified guide RNAs enhance CRISPR-Cas genome editing in human primary cells. Nat Biotechnol. 33 (9), 985-989 (2015).
- Moretti, A., et al. The past, present, and future of non-viral CAR T cells. Front Immunol. 13, 867013(2022).
Yeniden basım ve izinler
