本实验方案描述了一种分离和培养小鼠耳蜗柯蒂器官(可选择性保留或去除螺旋缘和螺旋神经节神经元)的方法。我们还展示了通过电穿孔技术在柯蒂器官外植体中表达外源报告基因的方法。
本文内容
摘要
摘要
在所有哺乳动物中,听觉的感觉上皮位于内耳蜗轴形耳蜗内的螺旋形柯蒂氏器上(图1)。发育中的耳蜗毛细胞是听觉系统的机械感觉细胞,沿柯蒂氏器全长排列为一列内毛细胞和三至四列外毛细胞,其中基部和中回为三列,顶部为四列。毛细胞将声音引起的基底膜机械振动转化为神经冲动,供大脑解读。大多数感音神经性听力损失是由于耳蜗毛细胞的死亡或功能障碍所致。
听觉研究中日益重要的工具是分离和 体外 器官外植体培养 1,2,9分离后,这些外植体可通过多种方式用于研究正常、异常或治疗性生理功能。耳蜗柯蒂氏器外植体的实验应用包括基因表达、静纤毛运动性、细胞与分子生物学研究,以及毛细胞再生的生物学方法等。
本方案描述了一种从新生小鼠中分离和培养耳蜗柯蒂器官的方法。配套视频包含逐步操作指南,演示如何从小鼠幼崽中分离颞骨,进而分离耳蜗、螺旋韧带及柯蒂器官。分离后的感受器上皮可进行铺板与培养 关键词:柯蒂器官,耳蜗,感受器上皮,新生小鼠,组织分离,原代培养 体外 完整地,或进一步解剖为缺乏螺旋缘和螺旋神经节神经元的微分离组织。采用此方法,初级外植体可维持培养7-10天。作为该操作应用的示例,柯蒂氏器外植体会通过电穿孔导入外源性DsRed报告基因。该方法相较于已发表的其他方法具有改进之处,因其提供了可重复、明确且分步详尽的柯蒂氏器分离、显微解剖及初级培养操作指南。
方案
第1天。玻璃盖玻片的灭菌与包被。
- 在高压灭菌锅中对玻璃显微镜盖玻片进行干热灭菌。
- 将灭菌后的盖玻片放入经预灭菌的四孔细胞培养板中的两个孔内。
- 用1:1的聚-L-鸟氨酸和层粘连蛋白混合液,加入20%胎牛血清(FBS),在4 °C下包被盖玻片过夜。
- 400 μL 聚-L-鸟氨酸(0.01%溶液,储存于4 °C)
- 400 μL 层粘连蛋白(50 μg/mL 储存液,分装后储存于-20 °C)
- 200 μL FBS(分装后储存于-20 °C)
- 将解剖工具在150°C的培养箱中加热灭菌过夜。
- 配制含10%血清和10 mg/mL氨苄青霉素的培养基。
- 90 mL 杜尔贝科改良伊格尔培养基
- 5 mL FBS(分装后储存于-20 °C)
- 5 mL 马血清(分装后储存于-20 °C)
- 10 μL 氨苄青霉素(10 mg/mL 储存液,储存于4 °C)
第2天。耳蜗柯蒂氏器的分离。
- 对正压流解剖罩进行灭菌。
- 开启紫外灯照射20分钟
- 用70%乙醇喷洒所有表面,静置5分钟后方可使用。
- 使用手术剪在枕骨大孔基底部处切除小鼠幼崽(P4)的头部。
- 将头部在盛有70%乙醇的10 cm培养皿中短暂冲洗。
- 使用刀片去除表皮。
- 沿矢状缝用刀片打开颅骨,然后将前脑一分为二。保留尾侧前脑用于进一步解剖。
- 使用钝性解剖法去除前脑、小脑和脑干。
- 取下颞骨(图2A),将其在70%乙醇中短暂浸泡后转移至含有无菌HBSS的3 mm培养皿中。
- 使用镊子从颞骨的岩部去除鼓室及其周围组织。
- 定位贝壳状的耳蜗(图2B),并用镊子将其与前庭系统分离。
- 在此发育阶段,耳蜗的骨迷路尚未完全钙化,可使用镊子轻松解剖。从基部开始,向顶端方向小心分离,逐步去除耳蜗的骨迷路。
- 螺旋韧带及其附着的柯蒂器官沿蜗轴螺旋排列(图2C)。用镊子夹住基部钩状区域的螺旋韧带,向顶端方向逐步展开,小心取出柯蒂器官。
- 从基部开始,使用#55精细镊子将螺旋韧带从前庭膜上分离(图2D)。
柯蒂器官感觉上皮的显微分离(可选) - 使用两支带有永久固定U-100 28G½针头的½ cc胰岛素注射器作为镊子,去除柯蒂器官基部的钩状区域。
- 从顶端开始,将螺旋缘从内毛细胞排上分离,并向基部方向推进(图2E-F)。
柯蒂器官外植体的接种 - 从培养孔中吸出聚-L-鸟氨酸/层粘连蛋白/FBS溶液,并加入130 μl培养基。
- 将解剖好的柯蒂器官转移至培养孔中已包被的玻璃盖玻片上,调整外植体方向,使毛细胞的纤毛朝上。
- 使用200 μL移液器吸除培养孔中的培养基。确保基底膜与包被的玻璃盖玻片充分接触。
- 使用200 μL移液器小心向柯蒂器官加入130 μL培养基。先在柯蒂器官表面滴加两滴,然后缓慢将剩余液体沿盖玻片边缘加入。确保柯蒂器官不会漂浮在培养基中,而是牢固附着于盖玻片上。
- 在37 °C、5% CO2条件下孵育过夜。
第3天。将报告基因电转染至体外培养的科尔蒂器中。
- 从耳蜗柯蒂氏器培养物中移除培养液。
- 加入 130 μL H2O,作用 1 分钟后用 200 μL 移液器吸除。
- 加入 30 μL DsRed 报告基因质粒(2 mg/mL H2O,-20 °C 保存)。
- 使用显微操作器推进电穿孔仪的电极,使阳极和阴极分别位于培养物的两侧。
- 施加一个脉冲(27 V,持续时间 30 ms,共 10 组脉冲序列),将报告基因电穿孔转入柯蒂氏器外植体培养物中。
- 可选:反转脉冲极性,以确保外植体的蜗轴侧和螺旋韧带侧均实现转基因的电穿孔。
- 等待 5 分钟。
- 加入 130 μL Fugene 6: DNA 溶液(3 份 Fugene 与 2 份 DNA 混合)。该溶液应在电穿孔操作开始前(步骤 20)于层流罩内使用 3 mL 圆底聚苯乙烯试管预先配制。配制方法如下:
- 向试管中加入 2.4 μL Opti-MEM(4 °C 保存)。
- 向试管中加入 0.6 μL Fugene 6 试剂(4 °C 保存)。确保将 Fugene 直接加入 Opti-MEM 中,避免与试管壁直接接触。
- 涡旋震荡 1 秒。
- 室温孵育 5 分钟。
- 加入 2.0 μL DsRed 报告基因质粒双链 DNA(-20 °C 保存,100 μg DNA/mL H2O 分装)。
- 涡旋震荡 1 秒。
- 室温孵育 15 分钟。
- 加入 200 μL 培养液。
- 涡旋震荡 1 秒。
- 在 37 °C、5% CO2 条件下过夜孵育。
- 向培养孔中加入 2 mL 培养液,并在 37 °C 条件下继续孵育,最长可达 10 天。
代表性结果
我们介绍了一种从围产期小鼠中分离耳蜗柯替器官的方法。该方法适用于胚胎第16天至出生后约第6天的小鼠,此后由于骨性迷路逐渐钙化,解剖操作将变得困难。一旦完成柯替器官的解剖,可将其整体(图3)或以微分离的感觉上皮形式(图4)进行接种和培养。我们还介绍了一种在培养的柯替器官中表达外源基因的技术。这种器官型培养体系还可用于多种其他研究,例如利用RT-PCR或原位杂交分析柯替器官的基因表达,或将微分离的柯替器官与螺旋神经节细胞或外源性干细胞进行共培养3,或 体外 毛细胞死亡与再生的分析

图1. P4小鼠柯蒂氏器的横切面。(A) 来自P4小鼠耳蜗基底回的一个冰冻切片横截面,展示了本实验方案中所述小鼠耳蜗的一般结构。中阶外侧由螺旋韧带和血管纹界定,上方为前庭膜,内侧为螺旋缘,下方为基底膜。方框所示区域为B图中放大的部分。(B) 柯蒂氏器位于基底膜的上方,包含一列内毛细胞、三列外毛细胞及其各自的支撑细胞。虚线1表示在本柯蒂氏器解剖过程中沿基底膜去除的区域;虚线2表示在微分离操作过程中沿基底膜去除的区域。绿色表示钙结合蛋白(calbindin)的免疫组织化学标记,该标记可见于螺旋缘的齿间细胞、耳蜗毛细胞、螺旋神经节神经元,以及螺旋韧带和血管纹的细胞7。细胞核的DAPI标记呈蓝色。如需查看此图像的更大版本,请点击此处。


图 2. 柯蒂器官的分离。 配套视频中的柯蒂器官分离图像依次显示:A) 位于分离的颞骨(红色)内的耳蜗与前庭系统;B) 耳蜗的骨性迷路;C) 去除骨性迷路后保留的螺旋韧带及其附着的柯蒂器官;D) 从柯蒂器官上移除螺旋韧带和血管纹(红色);E) 从螺旋唇(红色)微分离出感觉上皮;F) 分离得到的螺旋唇(左)和感觉上皮(右)。 若要查看此图像的更大版本,请点击此处。


图3. 体外培养的柯蒂氏器外植体。 差示干涉对比(DIC)图像显示了一只出生后第4天(P4)Atoh1-nGFP小鼠的柯蒂氏器,该组织已按前述方法分离、接种并培养五天。该小鼠经过基因工程改造,使其表达前毛细胞基因Atonal同源物1(Atoh1,又称Math1)的细胞可表达定位于细胞核的绿色荧光蛋白8。来自这些小鼠的柯蒂氏器中,所有毛细胞的细胞核均呈现核内GFP标记,因此可利用落射荧光显微镜轻松观察感觉上皮。相对较大的螺旋韧带位于感觉上皮的外侧。源自柯蒂氏器的间充质细胞已从外植体迁移而出。蓝色核染信号为DAPI染色。如需查看该图像的高清版本,请点击此处。


图 4. 微分离的感觉上皮组织。 从小鼠耳蜗器官(P4 阶段)中分离并按所述方法过夜培养后,获得的感觉上皮组织的荧光显微图像。微分离样本经 4% 多聚甲醛固定后,进行 Myosin 7a 免疫标记处理,该标记可特异性标记耳蜗毛细胞。请注意,与图 3 相比,本图中缺少较大的螺旋韧带结构。蓝色细胞核染色为 DAPI。如需查看该图像的高清版本,请点击此处。
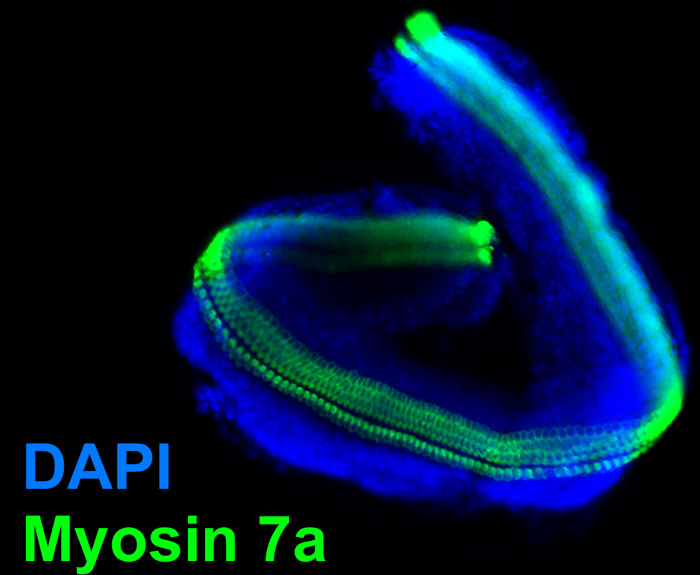

图 5. 将 DsRed 报告基因电穿孔转入培养的柯蒂氏器中。 从出生后第 4 天(P4)的 Atoh1-nGFP 转基因小鼠幼鼠中分离出完整的柯蒂氏器,接种培养后,按所述方法将 DsRed 报告基因进行电穿孔转染,随后在落射荧光显微镜下观察。表达转基因 DsRed 报告蛋白的柯蒂氏器外植体细胞呈现红色荧光,而感觉上皮中的内源性细胞则呈现绿色核荧光。转基因细胞可见于整个螺旋韧带和感觉上皮区域。如需查看此图像的更大版本,请点击此处。

讨论
该实验操作的成功取决于若干关键细节。从颞骨分离到柯蒂氏器孵育的时间越短,柯蒂氏器附着于盖玻片并形成可存活的器官培养的可能性就越大。因此,必须尽量缩短解剖与将器官置入培养箱之间的时间间隔。抗生素的选择也至关重要,因为许多氨基糖苷类抗生素具有耳毒性,会导致毛细胞死亡。尽管最好完全避免使用抗生素,但这会增加污染的风险。因此,我们建议常规使用 10 μg/mL 氨苄青霉素,以克服潜在的污染问题。
该方法及其他科尔蒂氏器原代培养方案中最棘手的问题是,在孵育过程中组织容易从培养板上漂浮脱落。尽管漂浮的器官培养物可维持存活5至7天,但培养漂浮组织存在若干缺点。例如,漂浮的器官培养物常在4至5天后发生自身折叠,导致显微观察困难。此外,与固定在盖玻片上的组织相比,其结构完整性可能受到损害。我们发现,以下技术有助于确保科尔蒂氏器在培养液中不发生漂浮,而保持附着于盖玻片上。首先,使用含20% FBS的1:1多聚鸟氨酸/层粘连蛋白溶液包被玻璃盖玻片,具体操作如前所述。本方案中建议的过夜孵育时间是包被处理所需的最短时间。在我们的实验室中,通常会将一周所需的所有培养板提前包被,并在4 °C保存,直至使用前一日转移至培养箱中进行过夜孵育。其次,在将组织转移至包被好的盖玻片后,应调整外植体的方向,使毛细胞的纤毛朝上。这种方向有助于基底膜与培养皿之间的贴附。第三,移除孔板中的培养液,以使外植体固定在包被好的培养皿表面。这一步可确保培养皿表面与基底膜充分接触,增强外植体在玻璃表面的附着能力,同时也有助于维持毛细胞排列的结构完整性。最后,使用200 μL移液枪小心地将2滴培养液直接滴加到科尔蒂氏器表面,然后缓慢地将剩余体积(共130 μL)沿盖玻片侧壁逐滴滴入,以完成加液。操作过程中需迅速完成,以确保科尔蒂氏器牢固附着于包被的盖玻片上。从开始解剖到外植体孵育,经验丰富的操作者通常可在10分钟内完成整个科尔蒂氏器分离流程。
在本方案中,我们还介绍了一种从柯蒂氏器的螺旋缘微分离感觉上皮的方法。该操作使用28G½胰岛素针作为解剖工具,将螺旋缘从感觉上皮组织上分离。所得的微分离样本包含毛细胞的排列及其相应的支持细胞(图3)。分离后的感觉上皮可按照本方案所述进行培养。该微分离方法应与利用酶解法将感觉上皮从周围组织中分离的技术进行比较4。在哺乳动物以及非哺乳动物(如鸡)中,通过嗜热菌蛋白酶(thermolysin)消化分离的前庭器官可实现感觉上皮与基底间充质细胞的分离4。在大鼠耳蜗中,嗜热菌蛋白酶消化可使较大的上皮嵴、较小的上皮嵴以及伴随的感觉上皮从基底膜上分离5。然而,尚不清楚在缺乏伴随的间充质细胞的情况下,耳蜗感觉上皮是否仍能附着于包被的培养板。尽管机械微分离法和酶消化法均可实现感觉上皮与螺旋缘的分离,但相较于嗜热菌蛋白酶消化法,微分离解剖具有若干优势,包括操作时间相对较短、试剂成本较低,以及由于避免了酶消化带来的潜在影响,对外植体造成的应激可能更小。此外,该方法保留了完整的基底膜,可能有助于感觉上皮在培养板上的附着。该方法的缺点包括需要掌握精细解剖的操作技能,以及微解剖过程中可能对感觉上皮造成机械性损伤。
作为该实验方法实用性的示例,我们还展示了一项耳蜗柯蒂氏器培养物的应用:将外源基因电穿孔导入外植体培养物中。上述电穿孔操作步骤基于既往已报道的柯蒂氏器电穿孔方法。值得注意的是,Zheng 和 Gao(2000)曾描述对分离的大鼠柯蒂氏器进行电穿孔,其中外植体通过琼脂糖模具形成的凹槽固定位置以完成电穿孔,随后将其接种于胶原蛋白包被的8孔LabTek载片上,并在无血清培养基中培养。2他们的方法的一个优势在于,器官的朝向使得外植体的顶面朝向阴极,理论上可使电穿孔细胞在外植体中分布更均匀。然而在我们实践中,本文所描述的方法对该流程进行了改进,因为耳蜗柯蒂氏器在整个操作过程中始终保持附着于盖玻片上,从而减少了电穿孔后对外植体的额外操作。此外,采用本方法时,更高比例的柯蒂氏器能够稳定附着于盖玻片。本方法借鉴自 Jones, 等 (2006) 使用添加 Fugene 6 试剂的方法,以提高电穿孔后基因表达的效率。在 Jones 等 (2006) 方案,器官经电穿孔处理后,与 100 μL Fugene 6 转染试剂孵育 5 分钟,随后接种培养 6我们的方法采用3:2的Fugene 6试剂与质粒DNA比例,经实验发现该比例可实现最佳的转基因表达,同时将器官毒性降至最低。我们不使用未稀释的Fugene 6试剂,因其可能导致培养物产生毒性。本方案中的电极配置以及Jones 等 (2006年),根据阴极位置的不同,可导致主要基因在螺旋缘或感觉上皮中表达。尽管在远离阴极的一侧培养物上也存在DsRed阳性细胞,但靠近阴极一侧的转基因细胞浓度更高。为确保耳蜗柯蒂氏器外植体两侧均实现完整的转基因表达,可通过简单反转导线方向,在第二次脉冲序列中逆转电流方向。本方案可实现转基因在整个柯蒂氏器中的强效表达图 5).
致谢
作者谨此感谢 Demêmes Danielle 和 Douglas Cotanche 在教授我们耳蜗柯蒂器官分离方法过程中所付出的努力。此外,我们还要感谢 Ishmael Stefanov-Wagner 在电穿孔仪电极设计方面的工作;感谢 Sherry Lin 为视频动画提供了艺术创作;感谢 Matthew Chana、Jason Meeker 和 Kendra Marshall(www.goodfightproductions.com)完成了视频制作。本研究由美国国立耳聋与其他沟通障碍研究所(NIDCD)资助,资助项目包括(R03DC010065-Parker;RO1DC007174-Edge;P30DC05209-MEEI 听觉研究核心支持)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 玻璃显微镜盖玻片 | DYNALAB Corporation | 2010 | 直径10mm,圆形#1,厚度1mm,1盎司 |
| 四环细胞培养皿 | Greiner Bio-One | 627170 | 已灭菌的35 × 10 mm细胞培养皿,带4个内环 |
| 多聚-L-鸟氨酸 | Sigma-Aldrich | P4957 | 0.01% 溶液 |
| 层粘连蛋白 | BD Biosciences | 354232 | 小鼠来源 |
| 胎牛血清 | Invitrogen | 26140-095 | 经鉴定合格 |
| 手术剪 | Roboz Surgical Instruments Co. | RS-6806 | 直型,尖端一钝一锐,长度5" |
| #11 手术刀片 | BD Biosciences | 372611 | |
| #4 Dumoxel 镊子 | Fine Science Tools | 11241-30 | |
| #55 Dumostar 精细镊子 | Fine Science Tools | 11295-51 | |
| Dulbecco’s 改良Eagle培养基 | Invitrogen | 10564-011 | 高葡萄糖 |
| 马血清 | Invitrogen | 2605088 | 热灭活 |
| 氨苄青霉素钠盐 | Invitrogen | 11593-027 | 辐照处理 |
| ½ cc 低剂量胰岛素注射器 | BD Biosciences | 329465 | U-100 28G½ |
| Fugene 6 转染试剂 | Roche Group | 11-815-091-001 | |
| 聚苯乙烯试管 | Fisher Scientific | 14-956-5A | |
| 层流罩 | The Baker Company (Stanford, ME) | Model SG603a | SterileGARD III Advanced Class II 生物安全柜 |
| Opti-MEM I 低血清培养基 | Invitrogen | 31985 | |
| 报告质粒 | Clontech Laboratories | 632539 | pCMV DsRed-Express 2 |
| 电穿孔仪 | Bio-Rad | 165–2662 | BioRad Gene Pulser Xcell |
参考文献
- Sobkowicz, H. M., Bereman, B., Rose, J. E. Organotypic Development of the Organ of Corti in Culture. Journal of Neurocytology. 119 (4), 543-543 (1975).
- Zheng, J. L., Gao, W. Q. Overexpression of Math1 induces robust production of extra hair cells in postnatal rat inner ears. Nature Neuroscience. 3 (6), 580-580 (2000).
- Martinez-Monedero, R. THE POTENTIAL ROLE OF ENDOGENOUS STEM CELLS IN REGENERATION OF THE INNER EAR. J Neurobiol. 66 (4), 319-319 (2006).
- Saffer, L. D., Gu, R., Corwin, J. T. An RT-PCR analysis of mRNA for growth factor receptors in damaged and control sensory epithelia of rat utricles. Hearing Research. 94 (1,2), 14-14 (1996).
- Zhang, Y. Isolation, growth and differentiation of hair cell progenitors from the newborn rat cochlear greater epithelial ridge. Journal of Neuroscience Methods. 164 (2), 271-271 (2007).
- Jones, J. M. Inhibitors of Differentiation and DNA Binding (Ids) Regulate Math1 and Hair Cell Formation during the Development of the Organ of Corti. J. Neurosci. 26 (2), 550-550 (2006).
- Daniela, B., Josef, S. Calbindin and S100 protein expression in the developing inner ear in mice. The Journal of Comparative Neurology. 513 (5), 469-469 (2009).
- Helms, A. W. Autoregulation and multiple enhancers control Math1 expression in the developing nervous system. Development. 127 (6), 1185-1185 (2000).
- Zheng, J. L., Wei-Qiang, G. Differential Damage to Auditory Neurons and Hair Cells by Ototoxins and Neuroprotection by Specific Neurotrophins in Rat Cochlear Organotypic Cultures. European Journal of Neuroscience. 8 (9), 1897-1897 (1996).
重印与许可
