延时成像技术用于三维组织培养,可研究源自神经节隆起的单个细胞对大脑皮层分级蛋白提取物的迁移行为反应。
本文内容
摘要
摘要
细胞迁移是脊椎动物中枢神经系统发育与成熟过程中的常见现象(Hatten,'99)。大脑皮层包含两种基本类型的神经元:兴奋性神经元和抑制性神经元。这些细胞起源于不同的区域,并沿不同的路径迁移进入皮层(Pearlman 等,'98)。抑制性中间神经元从皮层下来源进行切向迁移,主要来自纹状体隆起的不同区域(Gelman 等,'09;Xu 等,'04)。它们的迁移需要环境信号施加的精确时空调控,以确保大脑皮层形成正确的细胞结构和连接(Caviness & Rakic,'78;Hatten,'90;Rakic,'90)。为研究新生雪貂神经节隆起(GE)增殖区所生成细胞的迁移行为 体外 我们采用BD Matrigel基质中的三维培养体系。该培养体系由两个GE外植体和位于外植体之间、吸附于荧光乳胶Retrobeads IX上的待测蛋白来源(提取自大脑皮层)组成(Hasling 等,'03;Riddle 等培养2-3天后,细胞开始出现在组织块边缘,呈放射状从组织中迁移而出。活细胞成像技术使得在无需标记或标记细胞的情况下即可观察其迁移模式。当暴露于从同源期雪貂大脑皮层蛋白提取物获得的不同组分时,通过单个运动细胞的定量动力学分析可判断,GE细胞表现出不同的行为。
方案
1. 试剂制备
- 在湿冰上解冻冷冻的Matrigel,实验前留出足够时间(切勿通过加热加速解冻过程)。Matrigel用于建立一个类似于细胞外基质的三维环境,有利于细胞迁移。它为细胞提供了基质和机械包被。Matrigel在-20°C下冷冻保存。使用前应逐渐升温至0–4°C,即在湿冰上或冰箱中解冻。Matrigel在培养温度(37°C)下会不可逆地形成凝胶,因此不建议通过将容器浸入温水中来加速解冻。
- 通过等电聚焦(IEF)分离出生后第0天(P0)雪貂大脑皮层的总蛋白提取物,获得蛋白组分。分离后,组分在20 mM Tris-HCl(pH 7.2)中透析过夜,以去除聚焦缓冲液中的可能对组织有毒性的成分。
- 蛋白递送系统。从大脑皮层提取的蛋白被吸附在荧光乳胶微珠上,随后微珠缓慢向周围环境释放蛋白。我们发现,荧光特性有助于显微操作微球,并在荧光显微镜下轻松检测到微珠沉积部位的任何微量溢出。
- 将10 μl荧光微珠加入100–200 μl蛋白溶液中
- 在室温下避光振荡孵育30分钟
- 在台式离心机中以最大速度离心1小时,使微珠沉淀
- 移除上清液
- 用10 μl新鲜培养基在涡旋振荡器中重悬微珠
- 向悬浮液中加入30 μl Matrigel,充分混匀后置于冰上。
- 缓冲液与培养基
- 配制并经滤膜除菌的人工脑脊液(aCSF;NaCl 124 mM,NaHCO3 26 mM,NaH2PO4 1.2 mM,KCl 3.2 mM,MgSO4 1.2 mM,CaCl2 2.4 mM,葡萄糖 10 mM)。提前将aCSF制成无冰块的冰浆,以便在组织解剖时使用。配制方法:将装有无菌aCSF的塑料瓶放入-80°C冰箱中冷冻。定期检查冻结情况,当瓶壁内侧形成冰层时,将其打碎并与液体混合。重复此过程,直至瓶内大部分为冰浆状。这样制备的缓冲液不仅能支持组织存活,还能更长时间维持低温,且对组织的机械损伤小于块状冰块。
- 根据制造商建议,在Neurobasal培养基中添加N-2和B-27补充剂,并加入1 mg/100 ml庆大霉素、2 mM L-谷氨酰胺和0.6%葡萄糖。使用0.22 μm滤膜过滤除菌,使用前在37°C保温。
- 培养板
- 使用20 μl移液枪头,在培养级塑料六孔板的每个孔中央滴加少量(约2 μl)冷Matrigel,然后在每滴上放置一片经高压灭菌的18 mm圆形玻璃盖玻片,制备培养板。培养板和盖玻片均无需其他培养处理。
2. 组织制备
- 获取脑组织
- 使用 Euthasol 深度麻醉动物后,取出脑组织并置于冰冻的 aCSF 中
- 用解剖刀分离半球,并使用选定设备将脑组织以冠状面切成 500μm 厚的切片,将切片收集到盛有冰冻 aCSF 的小培养皿中
- 制备外植块(使用解剖显微镜)
- 识别包含神经节隆起(GE)的脑切片,并修剪可能卷曲覆盖 GE 区域的皮层组织,以免干扰后续步骤
- 将 Harris Uni-Core 打孔器压入靠近 GE 室管膜表面的区域,取出主要包含室管膜区的组织芯,并用推杆将其弹射至冰冻培养基中(图1)。 从单个 P0 雪貂脑切片的 GE 区域可制备 3 至 4 个直径为 0.5 mm 的外植块。请注意,在啮齿类动物和雪貂中,此年龄段的内侧和外侧 GE 已融合。若组织芯仍滞留在切片中或粘附在培养皿的塑料底部,可用移液枪头吹入 aCSF 液流使其松动,并用移液器转移至盛有冷 Neurobasal 培养基的培养皿中。将培养皿置于湿冰上保存。
- 将一批外植块从培养基中转移至另一培养皿中预先放置的大滴冰冻 Matrigel(约 0.25–0.5 ml)内,注意确保外植块完全浸没,并避免产生气泡。将培养皿置于湿冰上。每批外植块的数量取决于后续操作流程的速度。
3. 培养体系的建立(使用解剖显微镜)
- 始终将 Matrigel 及含 Matrigel 的混合物置于冰上,以防止其凝固。
- 重新混匀磁珠悬浮液,使用 20μl 移液枪头取 1–2μl 或更少的磁珠悬浮液,滴加到已预先放置于培养板孔中玻璃盖玻片中央的冰冻 Matrigel 中。静置片刻,避免干燥。
- 使用 20μl 移液枪头从 Matrigel 液滴中吸取 2 个组织块,并将其对称地放置在磁珠沉积物周围合适的位置(距离沉积物边缘至少 1mm)。在室温下静置,时间不超过 5 分钟。步骤 b 和 c 的时机至关重要:若时间过短,会导致凝胶不完全,当覆盖最上层 Matrigel 时,培养体系中的组分可能发生移位;若时间过长,则可能导致凝胶过度干燥,形成阻碍细胞自由迁移的物理屏障。
- 用约 30μl 的 Matrigel 在磁珠和组织块上方覆盖一层平整的凝胶,使凝胶范围延伸至组织块之外(图 2)。将样品置于培养箱中孵育约 15 分钟。
- 加入 2ml 含补充物的 Neurobasal 培养基。
- 在 37°C、5% CO2/95% O2 条件下培养,并每日监测细胞迁移活性。
4. 活细胞成像
- 孵育 3-4 天后,检查培养皿并选择感兴趣的盖玻片。外植体应产生径向均匀的细胞云。将选定的盖玻片转移至新的培养皿中,用于活细胞成像。
- 让盖玻片在新培养皿中静置过夜。在将培养皿置于显微镜上进行成像前,于细胞培养罩内使用无菌刮铲轻轻移动盖玻片,以释放盖玻片与培养皿之间积聚的微小气泡。气泡干扰会严重影响图像质量。将盖玻片移至孔的中央位置。
- 为防止蒸发,在孔与孔之间的空隙中加入水。
- 小心地将培养皿从细胞培养罩转移至显微镜,避免盖玻片偏离孔的中心位置。
- 使用成像软件设定成像方案。由于该培养体系具有三维特性,细胞也会在垂直方向上移动,因此必须采集涵盖整个迁移细胞云深度的Z平面图像。XY方向的成像范围也应足够大,以覆盖记录期间预计被迁移细胞占据的区域,并包含微珠沉积位置,以便记录外植体及迁移细胞相对于蛋白源的角向取向。还需注意,采集的Z平面越多或覆盖面积越大,完成每个时间点成像周期所需时间越长,导致采样时间间隔延长,降低细胞追踪的时间分辨率。在本实验中,使用10倍物镜,最佳方案为对每间隔20μm的10个Z平面,分别进行3×3拼接成像,成像时间间隔为30分钟。我们发现30分钟是能够明确识别连续时间点中同一细胞的最长间隔,这对可靠追踪细胞运动至关重要。
- 启动延时成像。
- 在达到预期成像时间后,取出培养皿,用4%磷酸盐缓冲的多聚甲醛固定样本。固定后的样本可用于后续形态学及免疫细胞化学分析。
5. 运动分析
- 将记录的时间序列图像转换为便于后续处理的格式,其中TIFF格式最具可移植性。
- 通过记录XY坐标来追踪单个细胞随时间的运动。此步骤可使用免费软件完成,例如带有手动追踪插件的ImageJ(NIH),或任何其他商业软件,如ImagePro、Volicity或AutoQuant。
- 使用Excel或自行开发的软件绘制细胞运动轨迹。
- 对每个被追踪的细胞,计算其动力学参数,如平均速度、路径曲率、方向随时间的变化、分支情况、向蛋白源方向的偏移等。这些计算可在MS Excel或任何类似的电子表格软件中进行。然而,根据我们的经验,使用R、Matlab、Python、Perl或其他主要为开源的语言自行开发脚本更为高效,因为这比Excel基础版本所提供的分析方法更具灵活性,并可集成更复杂的分析算法。
6. 代表性结果:
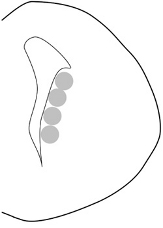
图1。外植块解剖来源示意图。此图为雪貂半脑冠状切面的示意图。灰色圆圈标示了外植块取材的区域。
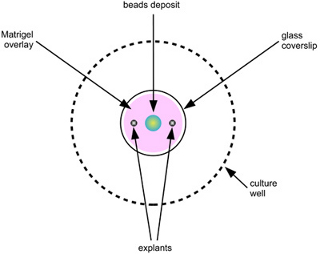
图2. 培养装置示意图。微珠沉积物为蛋白质来源;外植体置于其两侧,所有组分均被Matrigel覆盖。
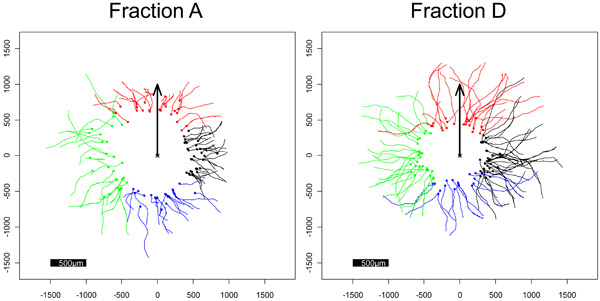
图3。按象限着色的细胞轨迹对应图(箭头指向微珠沉积位置)。右侧细胞轨迹向D组分迁移,表明D组分具有吸引细胞的作用;左侧细胞轨迹向A组分迁移,表明A组分对迁移细胞具有排斥作用。
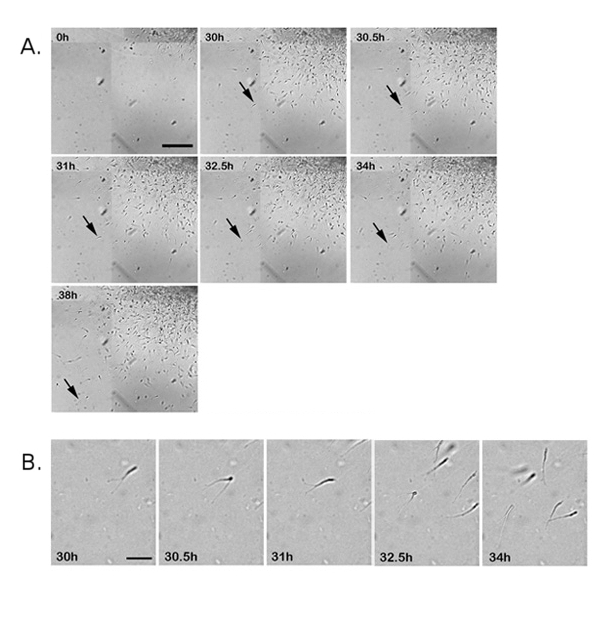
图4. A) 一系列选定时相的图像,显示细胞群从组织块中迁移并逐渐扩散的过程。图中箭头所示为一个示例细胞,其随时间的迁移轨迹如下方所示(比例尺:200μm)。该组织块通过活细胞成像技术连续观察38小时。此处展示的图像为从记录开始至最终时刻细胞离开组织块的全过程。B) A部分中标记的细胞在不同时相的形态。该细胞表现出反复的分支现象(比例尺:50μm)。
讨论
本文介绍了一种用于研究和分析神经细胞在化学信号引导下迁移行为的简单系统。体外迁移实验已被广泛用于鉴定影响细胞运动的细胞外分子。本实验范式确保所研究的每一个细胞均处于可与其相互作用的三维(3D)环境中。相较于传统培养方式——即细胞从组织块迁移至聚-D-赖氨酸包被的盖玻片平面表面,缺乏与细胞外基质的相互作用(例如 Hirschberg 等,'10;Métin 等,'07)——本方法具有显著优势。然而,在追踪迁移细胞的大尺度运动方面,该系统仍为二维,因为细胞在垂直方向上受限于底部玻璃盖玻片与上方Matrigel表面之间的狭窄空间,其厚度远小于细胞水平迁移的自由度。这种设置便于对细胞运动进行分析,而运动本身仍基本保持二维特性。此前已有研究采用类似的三维实验模型,将纹状体隆起(GE)组织块或GE细胞重聚集物嵌入胶原或Matrigel中,并利用表达特定信号蛋白的细胞聚集体作为化学信号源(例如 Liodis 等,'07;Martini 等,'09;Nóbrega-Pereira 等,'08;Wichterle 等,'03)。本文所述方法采用一种缓释系统,即表面吸附蛋白的乳胶微球,以在局部环境中维持较高浓度的蛋白,其效果优于将蛋白直接加入培养基中,因此在可用蛋白量有限或需测试复杂蛋白混合物时尤为适用。微球的选择不仅限于乳胶材料,也可使用其他类型,例如琼脂糖微球,不同材料具有不同特性。为进一步提高实验密度,我们在微球沉积物的两侧相对位置放置两个组织块。为确保细胞来源的特定区域,我们采用纹状体隆起组织块作为细胞来源。我们评估了纹状体隆起内侧部与外侧部之间的差异,但未观察到明显不同。需要指出的是,本研究使用雪貂作为实验动物;在该物种中,内侧与外侧纹状体隆起的融合时间早于啮齿类动物(Poluch 等,'08)。在进行培养时(P0期),内侧与外侧纹状体隆起已经融合,尽管此时仍有大量新皮层细胞正在生成并处于迁移过程中。然而,若需获得真正均一的细胞来源,可将解剖所得组织制备成细胞悬液,直接与Matrigel混合;或 alternatively 离心后取沉淀,用打孔法制成“组织块”。不建议使用酶消化法处理组织以制备细胞悬液,因为即使残留微量的蛋白酶活性,也可能在实验过程中导致Matrigel液化。此外,实验操作的时间控制也需格外谨慎。尽管Matrigel需要一定时间升温以完成聚合,但即使短暂暴露于空气中,本方案所用的小体积Matrigel液滴也容易干燥,形成一层迁移细胞无法穿透的硬壳,且后续覆盖新鲜Matrigel亦无法消除该屏障。
披露
动物使用: 所有涉及动物的操作均按照美国健康科学大学(USUHS)和美国国立卫生研究院(NIH)的机构指南进行,并经美国健康科学大学动物护理与使用委员会(IACUC)批准。
致谢
本工作由美国国防部资助项目PT074620(SLJ)和美国国立卫生研究院资助项目R01NS245014(SLJ)支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Neurobasal 培养基(1X),液体 | Invitrogen | 21103-049 | |
| N-2 添加剂(100X),液体 | Invitrogen | 17502-048 | |
| B-27 添加剂(50X) | Invitrogen | 0080085-SA | |
| BD Matrigel 基底膜基质 | BD Biosciences | 354234 | |
| Harris Uni-Core,0.5 mm 规格 | Electron Microscopy Sciences | 69036-05 | 打孔钻头 |
| Green Retrobeads IX | Lumafluor, Inc. | 乳胶微球 |
参考文献
- Caviness, V. S. Jr, Rakic, P. Mechanisms of cortical development: a view from mutations in mice. Annu. Rev. Neurosci. 1, 297-326 (1978).
- Gelman, D. M., Martini, F. J., Nóbrega-Pereira, S., Pierani, A., Kessaris, N., Marín, O. The embryonic preoptic area is a novel source of cortical GABAergic interneurons. J. Neurosci. 29, 9380-9389 (2009).
- Hasling, T. A., Gierdalski, M., Jablonska, B., Juliano, S. L. A radialization factor in normal cortical plate restores disorganized radial glia and disrupted migration in a model of cortical dysplasia. Eur. J. Neurosci. 17, 467-780 (2003).
- Hirschberg, A., Deng, S., Korostylev, A., Paldy, E., Costa, M. R., Worzfeld, T., Vodrazka, P., Wizenmann, A., Götz, M., Offermanns, S., Kuner, R. Gene deletion mutants reveal a role for semaphorin receptors of the plexin-B family in mechanisms underlying corticogenesis. Mol. Cell Biol. 30, 764-780 (2010).
- Hatten, M. E. Riding the glial monorail: a common mechanism for glial-guided neuronal migration in different regions of the developing mammalian brain. Trends Neurosci. 13, 179-184 (1990).
- Hatten, M. E. Central nervous system neuronal migration. Annu. Rev. Neurosci. 22, 511-539 (1999).
- Liodis, P., Denaxa, M., Grigoriou, M., Akufo-Addo, C., Yanagawa, Y., Pachnis, V. Lhx6 activity is required for the normal migration and specification of cortical interneuron subtypes. J. Neurosci. 27, 3078-3089 (2007).
- Métin, C., Alvarez, C., Moudoux, D., Vitalis, T., Pieau, C., Molnár, Z. Conserved pattern of tangential neuronal migration during forebrain development. Development. 134, 2815-2827 (2007).
- Martini, F. J., Valiente, M., López Bendito, G., Szabó, G., Moya, F., Valdeolmillos, M., Marín, O. Biased selection of leading process branches mediates chemotaxis during tangential neuronal migration. Development. , 136-1341 (2009).
- Nóbrega-Pereira, S., Kessaris, N., Du, T., Kimura, S., Anderson, S. A., Marín, O. Postmitotic Nkx2-1 controls the migration of telencephalic interneurons by direct repression of guidance receptors. Neuron. 59, 733-745 (2008).
- Pearlman, A. L., Faust, P. L., Hatten, M. E., Brunstrom, J. E. New directions for neuronal migration. Curr. Opin. Neurobiol. 8, 45-54 (1998).
- Poluch, S., Jablonska, B., Juliano, S. L. Alteration of interneuron migration in a ferret model of cortical dysplasia. Cereb Cortex. 18, 78-92 (2008).
- Rakic, P. Principles of neural cell migration. Experientia. 46, 882-891 (1990).
- Riddle, D. R., Katz, L. C., Lo, D. C. Focal delivery of neurotrophins into the central nervous system using fluorescent latex microspheres. Biotechniques. 23, 928-937 (1997).
- Wichterle, H., Alvarez-Dolado, M., Erskine, L., Alvarez-Buylla, A. Permissive corridor and diffusible gradients direct medial ganglionic eminence cell migration to the neocortex. Proc. Natl. Acad. Sci. USA. 100, 727-732 (2003).
- Xu, Q., Cobos, I., De La Cruz, E., Rubenstein, J. L., Anderson, S. A. Origins of cortical interneuron subtypes. J. Neurosci. 24, 2612-2622 (2004).
重印与许可
