本文介绍了一种利用黑腹果蝇(Drosophila melanogaster)巨大纤维系统(GFS)快速检测神经调制化合物的活体in vivo实验方法。通过对果蝇头部进行纳米注射,并结合GFS的电生理记录,可揭示化合物对神经元或肌肉的生物活性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
筛选化合物的体内活性可作为识别潜在药理学候选分子的第一步1,2。我们开发了一种新型的纳米注射/电生理检测方法,可用于检测化合物对介导黑腹果蝇(Drosophila melanogaster)逃避反应的神经回路功能所产生的生物活性调节作用3,4。本体内检测方法利用果蝇巨纤维系统(GFS,图1),可筛选多种类型的化合物(如小分子或肽类),且仅需极微量即可诱发效应。此外,果蝇GFS在神经元或肌肉上提供了多种潜在的分子靶点。巨纤维(GF)通过电突触(缝隙连接)和化学突触(胆碱能)分别与外周接替中间神经元(PSI)以及胸-转节肌神经元(TTMn)形成突触连接5。PSI与背纵肌神经元(DLMn)之间的连接依赖于Dα7烟碱型乙酰胆碱受体(nAChRs)6。最后,TTMn和DLMn分别与跳跃肌(TTM)和飞行肌(DLM)形成的神经肌肉接头(NMJ)为谷氨酸能突触7-12。本文中,我们演示了如何在向果蝇注射纳升级化合物的同时,对其巨纤维系统进行细胞内电生理记录,并监测该化合物对该神经回路功能的影响13。我们以烟碱型乙酰胆碱受体拮抗剂柠檬酸甲基藜芦碱(MLA)为例,展示了该检测方法的特异性:MLA可破坏PSI至DLMn的连接,但不影响GF至TTMn的连接,也不影响跳跃肌或飞行肌神经肌肉接头的功能。
在开始本视频之前,您必须仔细观看并熟悉 JoVE 视频《从巨大纤维通路进行的电生理记录》 D. melanogaster 来自 Augustin 等7,因为此处展示的视频旨在扩展这一现有技术。本文采用电生理记录方法,并仅详细聚焦于成对纳米注射与监测技术的添加步骤。
方案
1. 电生理实验装置设置
- 电生理实验装置所需的设备已在本期刊 Augustin et al. 的文章中有详细描述14。有关所需电生理仪器的详细说明,请参考该文章。
- 在先前描述的电生理实验装置14基础上进行改进,增加第六个显微操作器用于固定纳米注射仪。为便于接近动物头部,应将其放置在两个刺激电极显微操作器之间,如图2所示。
- 实验开始前,需确保所有显微操作器在各个旋转轴向上均具有足够的操作空间,并且所有电极以及注射用微移液管(见步骤2)均可顺利到达动物体位。
2. 纳米注射装置设置
- 纳米注射装置需要配备 Nanoliter2000(World Precision Instruments,美国佛罗里达州萨拉索塔)或类似类型的注射仪,以实现对纳升级体积的精确控制注射。
- 使用注射仪配套提供的玻璃毛细管,通过电极拉制仪将其拉制成电阻为 80–100 MΩ 的注射针。
- 为实现平稳注射,需将毛细管针尖修磨成 45 度角,开口直径为 11–17 μm(图 3)。
- 按照 Nanoliter2000 手册说明,使用 Hamilton 注射器缓慢将合成油从针尾注入毛细管,确保无气泡产生。
- 小心地将毛细管固定在纳米注射仪上,并按照 Nanoliter2000 手册说明排出多余油液,以准备加载待注射化合物。
- 将注射仪安装至显微操作器上,并按照 Nanoliter2000 手册说明加载待注射化合物。操作过程中务必确保毛细管尖端不被损坏。
- 根据 Nanoliter2000 手册说明,在注射仪控制盒中设定所需的注射体积(纳升级)。请注意,总注射体积不应超过 100 nl。我们发现,过量的生理盐水对照溶液可能会影响 GFS 电路的功能。
- 在记录过程中,除实际注射瞬间外,必须将注射仪从控制盒上断电,因为纳米注射仪的电源会干扰电生理记录,表现为背景噪声(图 4)。但请注意,不要切断控制盒本身的电源,否则将导致其重置。
3. Drosophila melanogaster 的制备
- 按照先前所述方法14,15,使用 CO2 或冰对 2 至 6 日龄的果蝇进行麻醉。
- 待果蝇完全不动后,用镊子夹住其腿部,将其转移至涂有软质牙科蜡的小培养皿上。请注意,雄性果蝇体重约为 1.0 mg,雌性果蝇体重约为 1.2 mg,因此雄性和雌性果蝇的化合物与体重比例存在差异。因此,建议实验中仅使用单一性别果蝇。
- 如先前所述14,15,将果蝇背面向上小心固定,确保胸部和头部被身体周围的软质牙科蜡固定不动。小心展开双翅,使其与胸部呈垂直状态(图 2,C)。固定果蝇时应尽可能减少损伤。
4. 配对纳米注射/电生理学
- 将固定好的果蝇放置在电生理记录装置上,使其头部朝向刺激电极。
- 按照先前所述方法,将相应的刺激电极、接地电极和记录电极插入动物体内14,15(图2, C)。除非另有需求,将一根记录电极插入DLM肌,另一根插入TTM肌。DLM肌位于果蝇胸部,处于前背中央刚毛与果蝇中线之间。TTM肌位于翅附着点附近,处于果蝇后侧与前侧上侧刚毛之间7。
- 将含有待测化合物的注射微移液管对准头部中后部三个单眼的中心位置,但暂不注射(图2, C)。
- 在注射化合物之前,通过脑部刺激获取巨纤维系统(GFS,图1)中GF至TTM和GF至DLM通路的基础记录。具体操作为:以100 Hz频率、每串10个脉冲、共10串(40–50 mV)刺激巨纤维(GFs),每串持续0.03 ms,串间间隔1秒14,15(图4)。野生型果蝇在此刺激频率下,DLM和TTM通路均应实现1:1跟随。若GF至DLM和GF至TTM通路无法以1:1比例跟随100 Hz刺激,则弃用该果蝇。
- 切换至以1 Hz单脉冲对GF进行连续刺激(图4)。
- 迅速将注射器插入控制盒。尽管背景噪声可能干扰1 Hz刺激的记录,但不要中断刺激。
- 小心地将注射微移液管插入果蝇头壳内,位于角质层下方,并在维持1 Hz刺激的同时将所需剂量的化合物注入果蝇血淋巴中(图4)。由于果蝇具有开放的循环系统,整个神经系统将在数秒内暴露于该化合物。虽然特定注射位点对于将化合物递送至血淋巴并非关键,但我们发现位于头壳最背侧中线处的单眼区域是一个便捷的注射位点,可实现快速且均匀的化合物分布。
- 注射后立即从注射位点撤出注射微移液管,并从控制盒上拔下注射器,同时继续维持1 Hz的GF刺激,持续至注射后1分钟(图4)。
- 为揭示化合物对GFS更细微的影响,使用10串、每串10个脉冲、100 Hz刺激并串间间隔1秒的方式对巨纤维(GFs)进行应激刺激。此后每5分钟采用此范式检测GF通路功能,持续至15分钟(图4)。但也可根据需要采用更短的时间间隔或延长监测时间。
- 为检测化合物是否影响GFS的神经肌肉接头(NMJs),并可能进一步缩小化合物作用位点,可通过胸部刺激直接激活运动神经元。具体操作为:将刺激电极从眼部移除,并置于胸部前侧,以10串、每串10个脉冲、100 Hz的刺激激活运动神经元。
注意:视频中显示的电生理记录迹线并不对应于纯染料注射的效果。
5. 代表性结果
拮抗剂对巨大纤维系统中PSI到DLM突触的影响
柠檬酸甲基牛扁碱(MLA)是一种对α7烟碱型乙酰胆碱受体(nAChR)亚型具有特异性的拮抗剂。GF-DLM通路中PSI到DLMn的突触功能依赖于Dα7 nAChR亚型,而Dα7 nAChR亚型的基因敲除对GF-TTM通路无影响5,6。为了验证本实验方法的特异性和敏感性,我们将不同浓度的MLA(0、0.02、0.04、0.08、0.12 ng/mg,注射体积为46 nl)注射至动物头部(每种化合物处理组n=10;生理盐水组n=15)。仅使用雄性果蝇(野生型基因型wild 10E),并在注射后连续监测化合物作用效果达15分钟。
图5展示了注射前基线记录与注射后对MLA及生理盐水对照溶液反应的记录之间的差异。我们发现,注射MLA后,当刺激脑部巨纤维(GF)时,GF-DLM通路无法以100 Hz实现一对一跟随,而GF-TTM通路则未受影响。(图5,上图和中图:在每个时间点,对生理盐水对照组[0 ng/mg]与不同浓度MLA组进行t检验,除非数据不符合正态分布或方差齐性[已检验正态性和方差齐性],此时采用Mann-Whitney秩和检验。*p<0.001)。然而,当直接刺激运动神经元时,DLM仍能产生一对一反应(图5,下图),表明MLA并不影响DLM和TTM的神经肌肉接头(NMJ)功能。对于注射0.04、0.08和0.12 ng/mg MLA的实验组,MLA在注射后1分钟即达到最大效应,因为在随后15分钟的测试期间未观察到进一步的显著变化。此外,MLA在0.08 ng/mg时即达到最大效应,因为更高剂量0.12 ng/mg并未引起更强的反应。

图1. 巨大纤维系统(GFS)示意图。 巨大纤维(GFs,红色所示)通过电突触(缝隙连接)和化学突触(胆碱能)两种方式,与外周突触中间神经元(PSI,绿色所示)以及胸-转节肌神经元(TTMn,黄色所示)形成突触连接5。PSI与背纵肌神经元(DLMn,蓝色所示)之间的连接依赖于Dα7烟碱型乙酰胆碱受体亚型6。最后,TTMn和DLMn分别在跳跃肌(TTM,紫色所示)和飞行肌(DLM,紫色所示)上的神经肌肉接头(NMJ)为谷氨酸能性。
注意:巨纤维(GF)到后侧间介神经元(PSI)的连接同时包含电突触和化学突触。然而,在shakB突变体(缺乏缝隙连接)中,当刺激脑内的巨纤维(GF)时,无法在DLM中记录到反应,这表明在缺乏电连接的情况下,仅靠化学突触成分不足以在PSI中引发动作电位5,16-18。由于巨纤维(GF)到后侧间介神经元(PSI)的连接依赖于缝隙连接,为简化起见,本图仅显示突触处的缝隙连接。

图 2.
显微操作仪的设置。
- 采用一种经改进的先前发表方案14,以适配用于同步纳米注射的成对GFS记录的注射显微操作器。将固定好的果蝇标本放置成头部朝向实验者。注射显微操作器(#1)置于实验者前方,位于两个钨刺激电极(#2 和 #3)的操作器之间。两个玻璃记录电极的显微操作器(#4 和 #5)分别置于左侧和右侧。接地用钨电极的显微操作器(#6)置于最后方,可在左侧(如图所示)或右侧。
- 从上方俯视各电极与注射微吸管布局的近景图。
- 正确固定并插入电极和注射微吸管、准备就绪的 D. melanogaster 标本。注意动物身体以胸部水平、双翅展开的方式固定。蜡牢固地包裹住其身体,防止动物移动。此外,接地电极(#6,位于腹部)、玻璃记录电极(#4 和 #5,位于胸部,以深色轮廓标出)以及刺激电极(#2 和 #3,分别插入两只眼睛)均已按先前所述方法插入到位14。注射微吸管(#1)已准确对准三个单眼的中心区域(以圆圈标示),微吸管的插入应定位在此区域。

图3. 斜面注射微吸管。 此处显示的是一个正确斜面处理的微吸管示意图。电极开口应呈45度角斜面,开口直径应在11至17 μm之间。一个合适的斜面注射微吸管对于实现顺畅注射并最大程度减少对果蝇的损伤至关重要。

图4. 纳米注射/电生理实验方案总体示意图。 本图展示了纳米注射/电生理实验方案的代表性流程。首先,通过以100 Hz频率刺激巨纤维(Giant Fibers, GFs),每串包含10个脉冲,共10串(图中仅显示一串),获取基线记录。在注射前,开始以1 Hz频率进行间隔1秒的刺激。在注射期间(此时注射器连接至控制盒),将观察到明显的背景噪声;然而,切勿中断记录。注射完成后(注射器已从控制盒断开),继续以1 Hz频率刺激约1分钟。最后,以100 Hz频率进行10串、每串10个刺激的强刺激以对GFs施加压力,并以此范式每5分钟检测一次GF通路功能,持续至15分钟。注意:本图中的记录经过调整以展示整体方案,并不代表某一特定实验结果。本图未按比例绘制,且并非显示所有记录轨迹。点击此处查看高清大图。
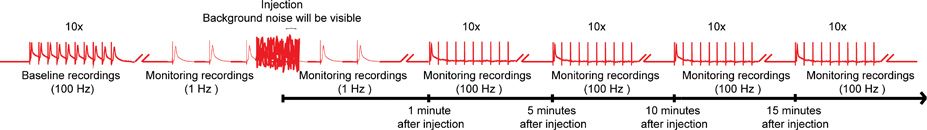

图 5. MLA 在 GFS 中的作用效应。
- 不同浓度(0、0.02、0.04、0.08、0.12 ng/mg;每种化合物处理 n=10;生理盐水处理 n=15)的 α7 nAChR 拮抗剂柠檬酸甲基乌头碱(MLA)对果蝇 GF-DLM 通路作用的图示。注射后仅一分钟,0.04 ng/mg 的 MLA 即表现出显著且立即的作用。在 100 Hz 的 GF 刺激下,0.08 ng/mg 和 0.12 ng/mg 的 MLA 也显示出显著作用。生理盐水对照组与 0.02 ng/mg MLA 之间未观察到显著差异。此外,在测试时间(15 分钟)内,注射后 1 分钟后的效应未见进一步变化。在每个时间点,对生理盐水对照组(0 ng/mg)与不同浓度 MLA 进行了 t 检验。数据以均值 ± 标准误表示,*p < 0.001。
- 在 100 Hz 刺激下 DLM 反应的样本迹线。上部迹线显示脑部 GF 刺激后 MLA 注射前肌肉的反应。可见肌肉在 100 Hz 下能够一对一响应每个刺激。中部迹线显示 MLA 注射后(0.12 ng/mg)DLM 的反应。可见肌肉在 100 Hz 下无法一对一响应每个刺激(星号)。下部迹线显示同一标本(0.12 ng/mg)在胸部直接刺激运动神经元时 DLM 的反应。由于胸部刺激下 DLM 在 100 Hz 仍能一对一响应,因此脑部刺激下反应的失败可归因于胆碱能 PSI-DLMn 连接。
- 不同 MLA 浓度(0、0.02、0.04、0.08、0.12 ng/mg)对 GF-TTM 通路作用的图示。在任何时间点,生理盐水(0 ng/mg)与化合物注射组之间均未观察到显著效应。在每个时间点,对生理盐水对照组(0 ng/mg)与不同浓度 MLA 进行了 t 检验,*p < 0.001。
- 在 100 Hz 刺激下 TTM 反应的样本迹线。上部迹线显示脑部刺激激活 GF 后 MLA 注射前肌肉的反应。可见肌肉在 100 Hz 下能够响应所有刺激。中部迹线显示 MLA 注射后(0.12 ng/mg)DLM 的反应。TTM 肌肉对脑部 GF 刺激的响应仍保持一对一。下部迹线显示同一标本(0.12 ng/mg)在胸部运动神经元 100 Hz 刺激下的 TTM 反应。
访问受限。请登录或开始试用以查看此内容。
讨论
本文所介绍的纳米注射/电生理学生物测定方法可实现对果蝇神经系统中化合物的快速筛选。这是一种新颖的方法 体内 一种仅需少量化合物即可在特征明确的神经环路中对多种分子靶点产生效应的技术。该方法可用于检测不同化合物的生物活性,范围涵盖未知毒素到市售药理学试剂。
在此,我们利用甲基烟碱(MLA)验证了本检测方法的功能,结果显示其对果蝇的巨纤维系统(GFS)产生了影响(图5)。我们发现,MLA选择性地破坏了巨纤维(GF)到背纵肌(DLM)的信号通路,但并未影响GF到胸段胫肌(TTM)的通路。通过胸部刺激直接激活运动神经元的结果表明,GF到DLM通路的缺陷并非源于神经肌肉接头(NMJ)的功能障碍,而是与MLA在PSI-DLMn突触处作用于Dα7烟碱型乙酰胆碱受体(nAChR)亚型所产生的拮抗效应一致(图1)。尽管已证实GF到TTMn的连接为胆碱能性,但目前尚不清楚该突触是否表达Dα7 nAChR亚单位。此外,由于存在电突触,即使缺失胆碱乙酰转移酶(Cha)基因或Dα7 nAChR亚型(Dα7)基因,也不会破...
访问受限。请登录或开始试用以查看此内容。
致谢
我们感谢Mari实验室和Godenschwege实验室的成员,特别是Aline Yonezawa,对本实验方案提出的建议和帮助。本研究由美国国家神经疾病与卒中研究所资助,资助号为R21NS06637,授予F.M.和T.A.G.;A.B.的研究由美国国家科学基金会资助,资助编号为082925,项目名称为“为未来研究人员设立的URM:整合生物学”。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 记录玻璃电极:硼硅酸盐玻璃毛细管 | World Precision Instruments, Inc. | 1B100F-4 | 1.0 mm 外径,0.58 mm 内径 |
| 刺激器 | 草技术公司 | Model S48 | |
| 放大器 | Getting Instruments, Inc. | 5A 型模型 | |
| 数据采集软件:Digidata | Molecular Devices | Model 1440A | |
| 数据采集软件:pCLAMP | Molecular Devices | 版本 10 | |
| 体视显微镜配光纤显微镜环形照明器 | AmScope | SM-4T 型号 HL250-AR | |
| 用于安装的解剖显微镜 | AmScope | SM-2TZ | |
| Kite 手动显微操作仪 &和倾斜底座 | World Precision Instruments, Inc. | 型号 # M3301 风筝:型号 # KITE-M3-L | |
| 黑腹果蝇 野生型10E基因型(野生型菌株) | 布卢明顿果蝇资源中心 | 品系编号 3892 | |
| 垂直式移液器拉制仪 | David Kopf Instruments | Model 700c | |
| 注射玻璃微量移液管:硼硅酸盐玻璃毛细管 | World Precision Instruments, Inc. | 目录编号 # 4878 | 1.14 mm 外径,0.5 mm 内径 |
| 硅油 | Fisher Scientific | 目录编号 S159-500 | |
| Beveler | Sutter Instrument Co. | K.T. 棕色类型 型号 # BV-10 | |
| Nanoliter2000 | World Precision Instruments, Inc. | 目录号 B203XVY | |
| 蓝色食用色素 | McCormick & Co. | N/A | 成分:水、丙二醇、FD&C 蓝 1 和 0.1% 对羟基苯甲酸丙酯(防腐剂)。 |
| 柠檬酸甲基牛扁碱 (MLA) | Tocris Bioscience | 目录编号 1029 | |
| 塑料蜡棒 | Hygenic Corporation(美国俄亥俄州阿克伦) |
参考文献
- Koehn, F. E., Carter, G. T. The evolving role of natural products in drug discovery. Nat. Rev. Drug Discov. 4, 206-220 (2005).
- Miljanich, G. P. Ziconotide: neuronal calcium channel blocker for treating severe chronic pain. Curr. Med. Chem. 11, 3029-3040 (2004).
- Layer, R. T., Wagstaff, J. D., White, H. S. Conantokins: peptide antagonists of NMDA receptors. Curr. Med. Chem. 11, 3073-3084 (2004).
- Lewis, R. J. Conotoxins as selective inhibitors of neuronal ion channels, receptors and transporters. IUBMB Life. 56, 89-93 (2004).
- Allen, M. J., Godenschwege, T. A., Tanouye, M. A., Phelan, P. Making an escape: development and function of the Drosophila giant fibre system. Semin. Cell Dev. Biol. 17, 31-41 (2006).
- Fayyazuddin, A., Zaheer, M. A., Hiesinger, P. R., Bellen, H. J. The nicotinic acetylcholine receptor Dalpha7 is required for an escape behavior in Drosophila. PLoS biology. 4, e63(2006).
- Jan, L. Y., Jan, Y. N. L-glutamate as an excitatory transmitter at the Drosophila larval neuromuscular junction. The Journal of physiology. 262, 215-236 (1976).
- Usherwood, P. N., Machili, P., Leaf, G. L-Glutamate at insect excitatory nerve-muscle synapses. Nature. 219, 1169-1172 (1968).
- Marrus, S. B., Portman, S. L., Allen, M. J., Moffat, K. G., DiAntonio, A. Differential localization of glutamate receptor subunits at the Drosophila neuromuscular junction. The Journal of neuroscience : the official journal of the Society for Neuroscience. 24, 1406-1415 (2004).
- Petersen, S. A., Fetter, R. D., Noordermeer, J. N., Goodman, C. S., DiAntonio, A. Genetic analysis of glutamate receptors in Drosophila reveals a retrograde signal regulating presynaptic transmitter release. Neuron. 19, 1237-1248 (1997).
- Qin, G. Four different subunits are essential for expressing the synaptic glutamate receptor at neuromuscular junctions of Drosophila. The Journal of neuroscience : the official journal of the Society for Neuroscience. 25, 3209-3218 (2005).
- Schuster, C. M. Molecular cloning of an invertebrate glutamate receptor subunit expressed in Drosophila muscle. Science. 254, 112-114 (1991).
- Tanouye, M. A., Wyman, R. J. Motor outputs of giant nerve fiber in Drosophila. Journal of. 44, 405-421 (1980).
- Augustin, H., Allen, M. J., Partridge, L. Electrophysiological Recordings from the Giant Fiber Pathway of D. melanogaster. J. Vis. Exp. (47), e2412(2011).
- Allen, M. J., Godenschwege, T. Drosophila Neurobiology. Zhang, B., Freeman, M. R., Waddell, S. , Cold Spring Harbor Laboratory Press. 215-224 (2010).
- Blagburn, J. M., Alexopoulos, H., Davies, J. A., Bacon, J. P. Null mutation in shaking-B eliminates electrical, but not chemical, synapses in the Drosophila giant fiber system: a structural study. J. Comp. Neurol. 404, 449-458 (1999).
- Thomas, J. B., Wyman, R. J. Mutations altering synaptic connectivity between identified neurons in Drosophila. J. Neurosci. 4, 530-538 (1984).
- Baird, D. H., Schalet, A. P., Wyman, R. J. The Passover locus in Drosophila melanogaster: complex complementation and different effects on the giant fiber neural pathway. Genetics. 126, 1045-1059 (1990).
- Gorczyca, M., Hall, J. C. Identification of a cholinergic synapse in the giant fiber pathway of Drosophila using conditional mutations of acetylcholine synthesis. J. Neurogenet. 1, 289-313 (1984).
- Allen, M. J., Murphey, R. K. The chemical component of the mixed GF-TTMn synapse in Drosophila melanogaster uses acetylcholine as its neurotransmitter. The European journal of neuroscience. 26, 439-445 (2007).
- Mejia, M. A novel approach for in vivo screening of toxins using the Drosophila Giant Fiber circuit. Toxicon. 56, 1398-1407 (2010).
- Stork, T. Organization and function of the blood-brain barrier in Drosophila. J. Neurosci. 28, 587-597 (2008).
访问受限。请登录或开始试用以查看此内容。
重印与许可
