本文介绍了从黑腹果蝇(Drosophila)头部提取和纯化mRNA及代谢物的操作步骤。我们正在应用这些技术以更深入地理解神经元变性过程中潜在的细胞紊乱机制。这些方法可轻松进行规模调整,并适用于其他“组学”研究项目。
本文内容
摘要
摘要
近十年来,我们一直试图利用果蝇(Drosophila)作为模式生物来研究神经元变性的分子和细胞机制。尽管果蝇具有明显的实验优势,但神经退行性疾病的研究在很大程度上仍依赖于传统技术,包括遗传互作分析、组织学、免疫荧光以及蛋白质生物化学。这些技术适用于机制性、假设驱动型研究,有助于深入理解单个基因在明确定义的生物学问题中的作用。然而,神经退行性疾病具有高度复杂性,会随着时间推移影响多个细胞器和细胞过程。新兴技术与组学时代的到来,为理解复杂疾病背后的整体细胞扰动提供了独特机遇。像果蝇(Drosophila)这样灵活的模式生物,因其基因组注释完善且实验可操作性强,非常适于整合这些新技术。然而,使用这类小型动物面临的一个挑战是从高度相关的组织(比如果蝇大脑)中纯化出足够数量的信息分子(DNA、mRNA、蛋白质、代谢物)。其他挑战还包括为实验重复收集大量果蝇(这对统计学稳健性至关重要),以及建立稳定可靠的高质量生物材料纯化流程。本文中,我们描述了收集数千个果蝇头部并提取转录本和代谢物的实验步骤,以探究基因表达和代谢的全局变化如何参与神经退行性疾病的发生发展。这些方法易于扩展,也可应用于蛋白质组学和表观基因组学对疾病贡献的研究。
引言
在过去的一个世纪中,Drosophila 已被证明是研究重大生物学问题不可或缺的实验工具,尤其是在发育生物学、细胞生物学、遗传学和神经生物学领域1。这一成功的原因在于果蝇易于操作,拥有日益丰富的实验工具包18, 21, 31,并具有注释质量高且相对简单的基因组26。这些技术优势,加上果蝇研究群体的智慧与持续创新,促成了广泛的科学贡献,这一点从三次诺贝尔奖的授予(1933年、1995年和2011年)可见一斑。近年来,Drosophila 已成为研究人类疾病的重要模型,主要用于研究发育障碍、先天免疫、癌症以及神经退行性疾病2。我们尤其关注揭示神经退行性疾病的细胞与分子基础。这些复杂而多样的疾病与异常折叠蛋白的聚集体(可能是可溶性寡聚体)有关,因此在果蝇中易于建模。在过去十五年中,所有主要的神经退行性疾病,包括阿尔茨海默病、帕金森病和亨廷顿病、肌萎缩侧索硬化症、多种共济失调、tau蛋白病、朊病毒病以及其他罕见疾病,均已成功在果蝇中建立模型23。果蝇实验室主要通过利用Drosophila遗传学的强大能力,鉴定出参与致病蛋白神经毒性的新基因,从而推动了对这些疾病的理解。一旦鉴定出与神经毒性级联相关的新基因,通常会采用传统方法分析其效应,包括通过组织学确定退行模式、通过免疫荧光确定蛋白分布和细胞病理变化、以及通过生化分析评估异常蛋白构象的数量和类型。最后,行为学分析作为疾病表型的功能性读出。这些成熟的技术已被用于研究一个或少数候选基因在疾病进程中的作用,包括氧化应激和线粒体功能障碍13、转录失调9, 27, 30、轴突运输和突触活动异常14、RNA生物学异常9、细胞信号通路失调29、内质网稳态失衡6、细胞蛋白质稳态受损33以及其他多种机制23。然而,目前尚不清楚这些毒性蛋白如何同时干扰多个相互关联的通路,这些改变发生的时间顺序如何,以及每条通路在致病过程中的相对贡献是什么。数十年来,针对人类和动物模型中单个基因、基于假设的研究方法,导致了对引起神经退行性变的细胞机制的认识仍不完整且令人困惑。目前对这些毒性蛋白聚集体导致神经病理的确切机制理解不足,是开发疾病修饰疗法的主要障碍。
目前,我们关注的是应用新方法来理解这些致病蛋白如何引发全局性的细胞扰动。组学时代的到来使得利用复杂的高通量技术深入探究复杂的生物学问题成为可能,这有望在不久的将来带来有效的疾病治疗方法。随着多个基因组序列的完成,基因表达(转录组学)研究得以建立,因为高质量的注释能够预测大多数转录本。近年来,将高通量测序技术应用于转录分析(RNA-seq)相比微阵列技术展现出新的优势和机遇,包括无偏倚性、更优的定量范围以及更低的成本32。我们希望利用RNA-seq的优势,更深入地理解最常见的常染色体显性遗传性共济失调——脊髓小脑性共济失调3型(SCA3),也称为马查多-约瑟夫病。SCA3是一种单基因显性遗传病,具有完全外显率,由Ataxin3基因(ATXN3)中的CAG三核苷酸重复扩增引起16。该突变导致产生含长段多聚谷氨酰胺(polyQ)序列的Atxn3蛋白,使其易于聚集。由于突变型Atxn3是引发SCA3中所有疾病相关扰动的神经毒性因子,因此该疾病非常适合应用这些新兴的组学方法。此外,SCA3也是最早在果蝇中建立模型的神经退行性疾病之一34。
在建立用于收集大量果蝇头部以进行RNA-seq的实验流程时,我们意识到同样可以利用这些材料对其他信息分子进行全局性研究。在诸多新兴学科中,蛋白质组学、表观基因组学和代谢组学能够以前所未有的深度揭示细胞病理机制,尽管这些领域仍面临诸多挑战。与mRNA不同,目前蛋白质和代谢物的图谱仍相对不完整,这主要是由于预测所有可能的剪接变体存在较大难度,而正常及致病性代谢物的来源则更为复杂且尚不明确。目前,学界正在大力开展针对多种生物体及疾病状态下蛋白质图谱的构建工作。为此,我们希望利用果蝇(Drosophila)这一简单的模式生物,重点研究异常代谢物在脊髓小脑性共济失调3型(SCA3)发病机制中的作用。这一领域相对较新且前景广阔,尤其是近年来核磁共振(NMR)技术的引入,显著提高了实验的可重复性,并且不会破坏样品5, 24。我们提出,代谢物谱分析有望为揭示神经退行性疾病的生物标志物及相关致病机制提供重要线索。
这些组学项目的一个重要考虑因素是,它们需要大量且均一的样本(200个果蝇头部),以及精确的纯化技术,以尽量减少实验变异。我们开始按照此前用于微阵列实验以及近期用于RNA-seq的相同方案收集果蝇12但很快,我们就遇到了一些与SCA3构建体错误表达相关的问题。首先,我们必须为这些实验选择一个Gal4驱动系4,其中用于分析的靶组织为脑组织。显然,选择一种泛神经元驱动子似乎是合理的,因为脊髓小脑性共济失调3型(SCA3)是一种脑部疾病。然而,由于我们计划从整个头部提取mRNA和代谢物,这种方案将导致来自表达与不表达构建物组织的混合材料。为了获得所有细胞均表达构建物的同质样本,我们决定采用一种虽弱但普遍表达的驱动品系, 无女儿(daughterless, da)-Gal4有趣的是,许多与神经退行性疾病相关的基因,包括 ATXN320分布广泛,因此选择泛表达是合适的。随后,我们遇到了第二个问题:泛表达致病性 Atxn3-78Q 会导致发育过程中的致死效应。为了克服这一致死效应,我们引入了 Gal80ts 控制Gal4的时间特异性激活19。这使我们能够收集实验果蝇,使其老化至多20天,冷冻保存,随后处理其冻干的头部,用于RNA(TRIzol法)或代谢物(甲醇-氯仿法)提取图1)。我们已采用该方案获取用于转录组学和代谢组学分析的样本,但该技术还有其他明显应用(例如 蛋白质组学或神经肽组学分析)
实验概述:本方案的总体目标是支持一致地采集果蝇头部样本,用于转录本和代谢物的提取。这些操作的具体目标是获取表达 Atxn3-27Q 和 Atxn3-78Q(分别为非致病性和致病性实验构建体)以及 LacZ(对照构建体)的果蝇,其中单个样本包含 200 个果蝇头部。尽管当前技术已能够分析极小样本,包括单个细胞28,但我们仍汇集了 200 个头部以消除实验、生物学及技术上的变异,从而能够以高度的统计学可信度识别与疾病过程相关的细胞变化。该方法旨在仅检测在群体中一致存在的基因表达变化,引导我们发现驱动神经退行性变的最关键通路。由于我们关注这些果蝇头部随年龄变化的情况,每种基因型均在 1、10 和 20 日龄时分别采集。
这些全局分析的一个基本方面是产生支持稳健统计分析的生物学重复样本。我们之前在微阵列和RNA测序方面的经验表明,对生物样本进行三重重复分析可为数据提供较强的统计显著性11, 12。我们将在第1节中描述如何为每种基因型和每个时间点生成一个单独的生物学重复样本(重复1,Rep 1)。只要每个重复样本均被正确标识,这些操作可重复进行以生成重复2(Rep 2)和重复3(Rep 3),也可平行操作同时完成。尽管目标是三个重复样本,但强烈建议设置第四个(甚至第五个)重复样本,以应对低产量、果蝇在老化过程中丢失,或一个或多个样本中果蝇、头部组织或RNA材料意外损失等问题。
我们发现,十个杂交组合(以字母 A-J 标识的瓶子)产生的后代足以获得每基因型每时间点 200 个头部样本。由于需要大量瓶子才能完成一个重复实验(10 个瓶子 × 3 种基因型 × 3 个时间点 = 90 个瓶子),因此必须格外小心以避免混淆。为此,我们使用基因型、时间点和瓶子字母来标记每个瓶子。例如,SCA3-27Q 20E 表示表达 Atxn3-27Q 且培养 20 天的果蝇的第五个瓶子(共十个)。一旦后代羽化,果蝇将被分别饲养在贴有唯一标识符的独立小管中。
我们使用 Excel 电子表格记录每个样本、每个培养瓶以及每个采集时间点(上午和下午)所获得的果蝇数量。在冷冻前,我们根据死亡率和逃逸个体对每管果蝇的数量进行了修正。根据最终统计结果,可在打开冰箱前快速找到果蝇总数达到 200 只的管子,从而有助于样本的保存。由于来自同一培养瓶的果蝇只能用于一个生物学重复(Rep),因此我们最大限度地利用每个培养瓶的果蝇贡献于单个生物学重复,尽管每个生物学重复均包含来自多个培养瓶的果蝇。我们将未在预定重复中使用的培养瓶中的果蝇保留下来,用于其他生物学重复、作为替换样本,或用于其他相关实验(如 Western blot、qPCR)。
方案
1. 制备重复样本并冷冻果蝇(注意:液氮)
目标:每种基因型/时间点至少收集 200 只雌性个体,并进行速冻。
- 基因型: Gal80ts; da-Gal4,品系用于在控制下普遍表达Gal4 无子代 调控区域和温度敏感型Gal80。作为对照品系,我们使用了 UAS-LacZ,此前已证明不会诱导产生有害效应。UAS-Atxn3-27Q 和 UAS-Atxn3-78Q,分别为非致病性和致病性实验构建体。(该 Y,hs-Hid 此前曾使用该装置以更高效地收集未交配雌性,但我们因其引入过程耗时较长而未采用 Y,hs-Hid 与 Gal80ts; da-Gal4 在II号和III号染色体上.)
- 将所有扩增培养物通过每瓶10只雌蝇和5只雄蝇进行扩增,以避免过度拥挤。所有实验均在Jazz Mix果蝇培养基中进行,该培养基易于制备且有利于果蝇快速生长 果蝇 生长良好且螨虫侵染率低。
- 收集50 Gal80ts;da-Gal4 雄性,以及100 UAS-Atxn3-78Q 每个时间点使用virgins(仅以一个UAS品系为例)。
- 每种基因型/时间点进行十次杂交。用二氧化碳(CO₂)麻醉雄性和雌性果蝇。2)睡眠垫。放置十只未交配的 UAS-Atxn3-78Q 果蝇(不超过五天大)和五只雄性 Gal80ts;da-Gal4 向每个添加了酵母膏(复水干酵母)的大瓶中分别加入,用基因型、时间点和瓶标识符(字母 A-J)标记,并置于 25 °C 培养。
- 两天后,清除瓶中的成虫,加入少量干酵母和一滴水以促进幼虫最佳生长,将瓶子置于18 °C环境下(Gal80有活性,Gal4被抑制)。 不 复制杂交样本可能会引入实验变异,因为受精雌性与未交配雌性所产生的后代存在差异。此外,每个培养瓶中的后代代表独立的生物学重复(每个培养瓶产生独特的后代),而转移的杂交样本(复制)则属于技术重复(具有相同遗传组成的额外后代)。
- 当子代在 18 °C 羽化时,用 CO₂ 麻醉2 睡眠垫/垫片,收集所需基因型的处女蝇,放入小瓶中(每瓶2至12只果蝇)。用瓶子编号标记小瓶。操作 不 将不同瓶子中的果蝇合并。将小管放回18 °C环境中24小时。为获得最大子代数量,需连续在早晨和傍晚进行收集。
- 当每个小瓶在18 °C下完成24小时孵育后,将其转移至29 °C(Gal80失活,Gal4激活)。此为实验的第0天,即外源基因开始表达的起始时间点。
- 每2天将果蝇转移至新的培养管,直至第10天和第20天。
- 当果蝇达到所需日龄(1、10、20天)时,使用小漏斗将果蝇从培养管中转移至预先标记的冻存管中并进行计数。 不 麻醉果蝇。将小瓶倒置放在实验台上。
- 等待30分钟,使果蝇从转移(应激)中恢复,然后将试管浸入液氮中快速冷冻,并存放在预先标记并预冷的冻存盒中。 记住将果蝇按照转移至冻存管的相同顺序进行冷冻,以确保各样本在冻存管中停留的时间一致。
2. 果蝇头部的收集与冻干(在冷室中进行,所有设备预先冷却,注意:液氮和干冰)
目的:快速分离、收集并冻干组织。
- 组装筛子(最大孔径筛网置于上层以收集完整果蝇,次大孔径筛网置于下层以收集头部,底部加盖以收集细小部分),并在 -80 °C 预冷至少 30 分钟。
- 从冻存管中收集 200 只果蝇,尽量使来自同一培养瓶的果蝇数量最大化。为补偿早晨或傍晚采集果蝇之间的差异,确保每个样本使用相同的早晨/傍晚比例(我们采用 47% 早晨 / 53% 傍晚)。注意:两个 100 头样本提取的 RNA 可在后续合并,以生成相当于单个重复中 200 只果蝇的 RNA 量。
- 将一片 Parafilm(约 9 × 14 cm)置于干冰上冷却 5 分钟。
- 分批将冻存管中的完整果蝇倾倒至 Parafilm 上;使用画笔计数果蝇,并将其转移至另一冻存管中,置于干冰上保存,直至达到 100 只果蝇。
- 将筛子浸入液氮中;将 100 只果蝇加入上层筛室,剧烈振荡 1 分钟。再次将筛子浸入液氮,并继续振荡 1 分钟。
- 打开筛子,从下层筛室收集头部至微量离心管中,并置于 -80 °C 保存。
- 打开微量离心管,用 Parafilm 封住管口,并扎若干小孔。
- 将样品放入冷冻干燥机中,至少干燥 2 天。
3. 总RNA提取与mRNA纯化(所有表面均需用RNaseZap处理;频繁更换手套)
目的:匀浆组织以最大化产量,提取总RNA,并纯化mRNA。
- 从冷冻干燥机中取出样品,向每个微量离心管中加入三个小型无菌钢珠。将样品放入Geno/Grinder中,以每分钟1,500次振荡的速度运行1分钟。
- 打开管盖,向每管中加入1 ml TRIzol,用封口膜密封管口。研磨1分钟;如有需要,可将管子倒置轻敲,使钢珠脱离管壁。再研磨1分钟。
- 此时不要对管子进行离心(管子可能较脆)。将混合物(除钢珠外)转移至新的无RNase的微量离心管中。在4 °C下,于台式微量离心机中以12,000 x g离心10分钟,沉淀细胞碎片。
- 将上清液转移至新的微量离心管中。加入0.1倍体积的1-溴-3-氯丙烷(BCP),剧烈振荡15秒。室温孵育3分钟。在4 °C下,于微量离心机中以12,000 x g离心15分钟。注意:许多RNA提取方案在此步骤使用氯仿;BCP旨在通过提高相分离效率来最大化RNA得率。在离心过程中保持样品温度为4 oC,也有助于提高相分离效率,并减少蛋白质和基因组DNA对水相的污染。
- 将上层水相转移至新的微量离心管中。加入0.5倍体积的预冷异丙醇沉淀RNA,倒置混匀6次。室温孵育10分钟。在4 °C下,于微量离心机中以12,000 x g离心10分钟。
注意:除了回收RNA外,还可以从TRIzol的有机层和界面相中提取蛋白质,因此可以在同一样本上同时进行蛋白质组学和转录组学分析。尽管我们在分析中未执行此步骤,但TRIzol提取法能良好地代表可溶性蛋白质,并且相较于大多数缓冲液/去污剂提取法,对膜蛋白和核蛋白的代表性更强。Lee和Lo17描述了一种适用于蛋白质组学分析(包括二维凝胶电泳和液相色谱-串联质谱LC-MS/MS)的TRIzol蛋白质提取方法。
- 弃去上清液。加入1 ml预冷的70%乙醇(使用DEPC处理的水),短暂涡旋混匀。在4 °C下以12,000 × g离心5 min。
- 弃去上清液。将沉淀在空气中干燥至少15 min。向RNA沉淀中加入80 μl DEPC水,55 °C孵育10 min,随后在4 °C下静置过夜。
- 使用NanoDrop分光光度计测定RNA浓度。260 nm与280 nm处吸光度比值应在1.8至2.1之间,以2.1为最佳。
- 取30 μg总RNA,加入4 U DNase I、60 U RNasin、10 μl 10×反应缓冲液,并用DEPC处理的水补足总体积至100 μl。37 °C孵育20 min。
- 使用RNeasy Mini试剂盒纯化RNA。按照生产商说明书操作,但所有离心步骤均设置为30秒,并执行所有“可选”步骤。
- 使用NanoDrop测定RNA浓度,并利用BioAnalyzer上的“total RNA pico”检测评估RNA质量。
- 进行mRNA纯化时,将30 μl Dynabeads转移至无RNase的微量离心管中。
- 将管子置于磁力架上1–2 min,弃去上清液。用15 μl结合缓冲液重悬磁珠,重复一次。
- 以5 μg总RNA起始,用DEPC水调整体积至15 μl。65 °C加热2 min,立即置于冰上。
- 将15 μl总RNA加入已预洗的15 μl磁珠中。每5 min用移液器吹打混匀一次,充分混合30 min,使RNA与磁珠退火结合。置于磁力架上1–2 min,弃去全部上清液。
- 加入35 μl洗涤缓冲液B,轻柔吹打混匀。置于磁力架上,小心吸除上清液。重复洗涤两次。
- 通过加入15 μl冰冷的10 mM Tris-HCl(pH 7.5)并在80 °C加热2 min洗脱mRNA。立即将管子置于磁力架上,将上清液转移至无RNase的管中,于-80 °C冷冻保存。按步骤3.8进行定量。得率应约为总RNA的1–5%。
进行代谢组学分析时,执行方案1和2,然后继续以下步骤4):
4. 甲醇-氯仿法提取代谢物
目的:分离极性与非极性代谢物。
- 将抗氧化剂丁基化羟基甲苯(BHT)加入氯仿中,使其终浓度为 0.1 mg/ml,以防止脂质在提取过程中发生自氧化。后续所有步骤均使用此含 BHT 的氯仿。
- 将 200 个头样转移至预冷并预先称重的锥形螺口聚丙烯管中,于 -80 °C 冻存后进行冷冻干燥。测定干重。
- 在管中加入 5–7 个氧化锆珠,使用珠磨机在 800 Hz 条件下均质化两次,每次 20 秒。
- 根据最重样品的干重,按以下比例加入水、甲醇和氯仿:甲醇为 11.74 × x;水为 10.59 × x;氯仿为 11.74 × x,其中 x 为最重样品的质量(单位:克),计算结果为体积(单位:ml)。将计算所得的全部甲醇以及总水量的 45% 加入含有冻干头样的珠磨管中。
- 再次使用珠磨机均质化两次,每次 20 秒。
- 在冰上将氯仿(100%)和剩余的水(55%)加入锥形玻璃小瓶中。然后将组织混合物(含珠子)转移至该玻璃小瓶中,振荡 10 分钟,并在冰上孵育 10 分钟。
- 在 4 °C 下以 2,000 × g 离心 5 分钟。用巴斯德吸管小心移除极性(上层)相(避免使用塑料制品),转移至另一微量离心管中。
- 将非极性(下层)相保存于小玻璃小瓶中,并在 -80 °C 冻存。在氮气流下干燥;确保从氮气罐引出的管路为高纯度特氟龙管,以避免增塑剂污染提取物。
- 用 620 μl 氘代氯仿复溶非极性相。取 600 μl 转移至标记好的核磁共振(NMR)管中。储存于防爆型 -80 °C 冰箱中。
- 将极性相置于离心真空浓缩仪(Centrivap)中,在 30 °C 下运行至完全干燥(约 7 小时)。
- 用 620 μl 含 1 mM 内标物 TMSP [3-(三甲基硅基)丙酸-2,2,3,3-d4] 的 0.1 M 氘代磷酸钠缓冲液(pH 7.3)复溶极性相。涡旋振荡 30 秒。在 4 °C 下以 10,000 rpm 离心 5 分钟,以沉淀可能干扰核磁共振谱图的色素及其他大分子物质。将 600 μl 上清液转移至标记好的 NMR 管中。
结果
为了规避在da-Gal4驱动下广泛表达扩增型Atxn3所导致的致死效应,我们引入了Gal80ts对Gal4进行时间特异性调控。但在进行大量果蝇的收集与冷冻保存之前,我们希望先明确在Gal80ts和da-Gal4控制下,我们的转基因表达动态。为此,我们进行了杂交,将后代置于18 °C培养,收集成虫后继续在18 °C维持24小时。随后,将果蝇转移至限制性温度(29 °C),并在0、6、12、24、36、48和72小时分别进行孵育。接着,我们依据已发表的方案10,通过单只果蝇的Western印迹检测扩增型polyQ等位基因的累积情况。在温度转换后6小时首次检测到微弱表达,随后表达水平持续上升,至48小时达到饱和状态(图2A)。有趣的是,在48小时后出现了一条高分子量的不溶性polyQ条带,提示蛋白已开始形成大分子聚集体。我们还于每个时间点解剖果蝇大脑,通过免疫荧光检测扩增型polyQ等位基因的分布情况(图2B)。在温度转换后24小时首次检测到该蛋白,但分布不均;在24至48小时之间,蛋白水平持续升高,多个脑区结构变得清晰可见,包括触角叶和蘑菇体投射区域(图2B)。在48至72小时之间,扩增型polyQ等位基因的表达达到最高水平,表明此时Gal4系统已完全激活。基于上述结果,我们选择温度转换后24小时作为后续实验的第一个时间点(第1天)。对于10日龄和20日龄果蝇的收集,其计时也均从温度转换(时间0点)开始,即实验启动时病理性与对照性转基因开始新表达的时刻。
在确认于29 °C条件下,在Gal80ts和da-Gal4的调控下,Atxn3在24小时后可被检测到后,我们进一步探究这些果蝇在20天内是否会表现出神经退行性变的迹象。由于这些果蝇在成虫阶段才开始表达致病蛋白,我们推测其可能需要较长的潜伏期才能显现神经退行性表型。为了评估在此条件下Atxn3-78Q的毒性,我们收集了表达LacZ、Atxn3-27Q和Atxn3-78Q的果蝇,并记录其寿命。结果显示,在20天后,表达LacZ和Atxn3-27Q的果蝇存活率超过90%,而表达Atxn3-78Q的果蝇在第20天时存活率显著降低(仅为30%)(图3)。事实上,Atxn3-78Q果蝇从第10天起便开始死亡(死亡率为7%),到第15天时死亡率已达到显著水平(20%),并在最后五天内死亡速度加快。因此,这些结果表明,成虫期表达致病基因会导致寿命缩短,这是Atxn3-78Q诱导的神经退行性表型的关键特征之一。
该实验方案最关键的环节之一是在冷冻后对样本进行处理和保存,以确保所提取材料的质量。根据NanoDrop测定结果,在DNase处理前,每200个头部可提取15–80 μg的总RNA(具体产量取决于年龄和基因型)。DNase处理后,约三分之一的RNA(6–25 μg)被回收,其纯度较高,表现为260 nm与280 nm处吸光度比值(A260/A280)良好。然而,我们发现评估用于构建RNA-seq cDNA文库的RNA质量的最佳方法是在BioAnalyzer上分析总RNA。幸运的是,BioAnalyzer仅需少量RNA(5 ng),因此不会影响每个样本制备多个文库的能力。例如,我们在BioAnalyzer芯片上运行了两个DNase处理前的总RNA样本,其中一个疑似发生降解(图4A–C)。高质量RNA(样本1)显示出三条清晰的RNA条带,两条略小于2,000个核苷酸(nt),另一条小于200 nt,分别对应核糖体RNA(图4A)。两条约2,000 nt的条带分别代表18S rRNA(较小峰)和28S rRNA的两个片段(较大峰),这是Drosophila中rRNA生物学的一个独特特征(见图4B)。这些特征在BioAnalyzer的电泳图谱中也清晰可见(图4B)。相比之下,降解的RNA样本(样本2)未出现核糖体RNA的清晰峰,而是积累出多个小于500 nt的条带(图4A)。这种片段大小分布可在BioAnalyzer图谱中明显区分(图4C),表现为较短片段形成的宽峰。还需注意的是,两个RNA样本的Y轴单位存在差异,表明降解样本的RNA量较少。只有达到最高质量标准的RNA(NanoDrop测定的260 nm与280 nm吸光度比值在1.8至2.1之间,其中2.1为最佳值,参见实验步骤3.8)才会用于文库构建。
在代谢物提取过程中,我们采用了一种经典的水/甲醇/氯仿(2.0:2.0:1.8)两相提取方法3,分为两个步骤进行,以最大程度地提取极性与非极性代谢物35。在分离极性与非极性相后,我们分别将其重新溶解于氘代水或氘代氯仿中,并加入内标物,用于核磁共振(NMR)分析。采用该提取方法获得的NMR谱图分辨率良好,基线平坦,谱线窄(图5),表明所提取的样品纯度高,适用于代谢谱分析以及大量代谢物的鉴定。图5展示了根据文献中报道的化学位移7鉴定出的若干显著峰,对应于高丰度的代谢物,如葡萄糖和蔗糖,以及两种关键的代谢酸——乳酸和乙酸。化学位移(单位为百万分之一,ppm)表示分子相对于标准分子(TMS,最右侧的第一个峰)的电磁屏蔽程度。屏蔽程度较高的分子其原子核周围的电子密度较高,在谱图中偏向右侧出峰,如烷基;而去屏蔽分子,如酰胺和芳香氢,则偏向谱图左侧出峰。谱图中间较密集的区域(3–4 ppm)富含糖类分子。

图1. 实验流程图。 首先,我们设置杂交以收集具有目标基因型的果蝇(第一行)。随后,将处女蝇转移至29 °C以激活基因表达,并分别培养1、10和20天后进行速冻(第二行)。接着,我们使用微型筛网收集冷冻的头部组织(第三行)。头部组织经冷冻干燥、研磨后,用于RNA(第四行)或代谢物(最末行)的提取。
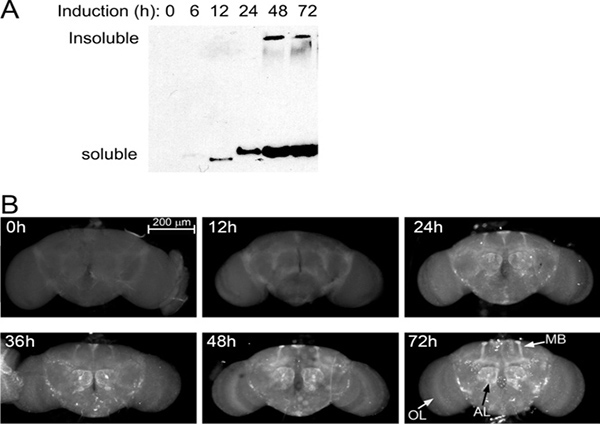
图 2. 表达动力学。(A)Western 印迹显示果蝇中 Atxn3-78Q 的表达(Gal80ts; da-Gal4 /UAS-Atxn3-78Q),果蝇在 29 °C 下培养 0 至 72 小时。诱导后 6 小时首次检测到微弱条带,48 小时后达到饱和。(B)相同果蝇全脑的免疫荧光染色。脑组织经解剖、固定后,使用识别扩展多聚谷氨酰胺(polyQ)蛋白的抗体进行染色。该蛋白最初在蘑菇体(MB)投射区和触角叶(AL)中被检测到。在 48 至 72 小时之间,表达水平达到峰值,在神经支配丰富的脑区尤为明显。单个神经元中的表达水平较弱,如在视叶(OL)中所见,仅在视叶与中央脑之间少数大型神经元中较强。
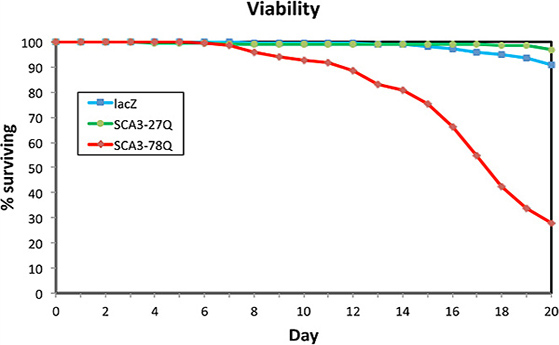
图3. Atxn3-78Q 缩短寿命。在成虫阶段全身性表达LacZ、Atxn3-27Q和Atxn3-78Q的果蝇(Gal80ts; da-Gal4)在29 °C条件下监测其寿命。表达LacZ(蓝色)和Atxn3-27Q(绿色)的果蝇至第20天时死亡率较低。相比之下,表达Atxn3-78Q(红色)的果蝇从第10天起即出现明显死亡率。至第15天时,其存活率已下降20%,随后在接下来的五天内死亡速度加快,到第20天时死亡率达到70%。
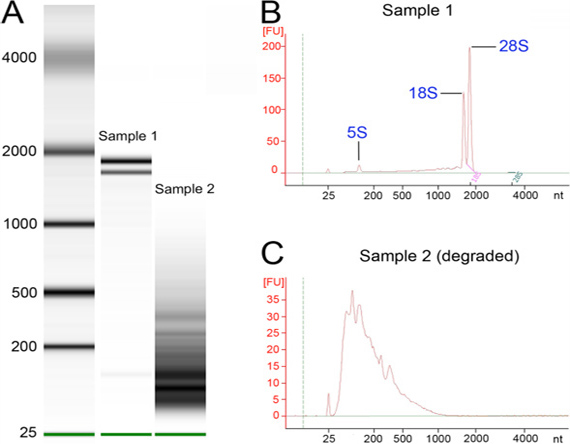
图4. RNA质量评估。 使用BioAnalyzer芯片对高质量和已降解样品的RNA进行检测。(A) BioAnalyzer检测结果,显示高质量RNA(样品1)和已降解RNA(样品2)与左侧大小标记物的对比。注意中间泳道中对应于核糖体RNA的三个清晰峰。(B) 样品1的BioAnalyzer图谱,显示在2,000 nt略下方有两个明显的强峰,另一个峰在200 nt以下。(C) 样品2的BioAnalyzer图谱,其RNA主要处于降解状态。注意图B与图C中y轴单位的差异。
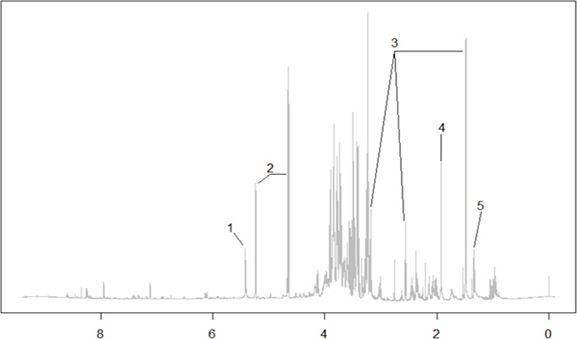
图 5. 极性代谢物的一维核磁共振谱图代表性示例。 来自果蝇(Drosophila)的极性代谢物的一维质子核磁共振谱图,以及用于峰归属的互补二维COSY(相关谱)和HSQC(异核单量子相干)实验。根据已知的化学位移鉴定出的代谢物:1:蔗糖;2:葡萄糖;3:β-丙氨酸;4:乙酸盐;5:乳酸。
讨论
基于我们在转录组学11, 12、代谢组学15以及神经退行性疾病6, 8方面的前期研究经验,本文提出了一种新方案,用于收集表达致病基因的成年果蝇头部数千只,并分别纯化mRNA和代谢物以进行RNA-seq和核磁共振(NMR)波谱分析。此类实验的性质要求在果蝇收集前引入若干创新步骤,包括选择泛表达的Gal4品系以及采用基因表达的时间调控策略。关于Gal4系统,外源基因的泛表达至关重要,原因有二。首先,许多参与神经退行性疾病的基因,如ATXN3、Huntingtin、Amyloid precursor protein和Superoxide dismutase 1等,在神经元和胶质细胞中广泛表达,同时也存在于神经系统以外的其他细胞类型中。我们希望通过对泛表达后果的分析,准确模拟这些致病基因在生物学上的真实表达特征,而非仅局限于神经组织表达。其次,大规模收集果蝇脑组织在技术上不可行,但我们能够高效获取果蝇头部(每种条件可重复三次,每次超过200个)11, 12。由于整个头部的匀浆会混合神经与非神经组织,因此实现外源基因在所有细胞中的均匀表达,对于从表达相同外源基因的细胞群体中获得一致的RNA和代谢物至关重要。值得注意的是,我们选择da-Gal4是因其表达分布较为均匀,而非因其表达水平高;尽管最近有报道称da-Gal4可能并非完全泛表达25。我们此前曾考虑使用其他泛表达Gal4品系,如arm-、Tub-和Act-Gal4,但它们在成年中枢神经系统和肌肉中均表现出复杂的表达模式,因而不太适用于本研究。事实上,成年果蝇脑组织的免疫荧光结果显示,da-Gal4诱导的是广泛但微弱的表达,仅在由数千条轴突组成的脑区以及少数大型神经元中积累至较高水平(图2)。尽管构建体的表达水平较低,但这些条件仍以多聚谷氨酰胺(polyQ)依赖的方式显著降低了果蝇的存活率。这种表达动态满足了我们的实验需求,同时保持了较低的表达水平,这对于观察神经毒性蛋白所诱导的缓慢、进行性细胞改变尤为重要。
诱导神经毒性蛋白广泛表达的一个可预见的后果是导致果蝇在成虫羽化前死亡。幸运的是,通过使用Gal80ts可规避这一问题。如上所述,基因表达水平在温度转换后约48小时达到峰值,这与实验的时间框架非常吻合。使用Gal80ts的另一个额外优势在于,与在神经系统中持续表达神经毒性蛋白的实验相比,该系统在神经系统发育过程中不表达这些蛋白。因此,Gal80ts的使用建立了一个“干净”的背景,使神经系统在敏感的发育阶段不会暴露于这些神经毒性蛋白的毒性作用。我们认为,在成虫阶段激活基因表达,为这类成年期发病的疾病提供了更理想的模型。然而,Gal80ts也带来了与温度变化相关的若干复杂因素。其一是,在较低温度(18–20 °C)下培养果蝇会延缓其生命周期,显著延长实验周期。此外,众所周知,在较高温度(29–31 °C)下培养果蝇会加快其新陈代谢,这一点可通过与25 °C下培养的果蝇相比寿命缩短而得到印证。由于转录和代谢研究将在高温下培养的果蝇中进行,我们预期会观察到细胞应激通路和能量代谢的重要变化。正因如此,在实验中引入两个对照组至关重要:一个是表达非致病性Atnx3-27Q的对照,另一个是表达无关蛋白LacZ的对照。这些对照将为高温相关的基因表达和代谢变化提供基线,从而帮助我们识别出直接与毒性Atxn3表达相关的改变。总体而言,我们对果蝇品系的收集引入了多项改进,为研究成年期发病、进行性疾病的机制提供了诸多优势,同时也存在一些不足之处(如温度相关问题及下一段所述内容)。
尽管使用Gal80进行时间调控ts 是一个有益的补充,但也引入了一个意想不到的复杂情况。在培育同时携带两种遗传修饰的果蝇时 Gal80ts 和 da-Gal4 在稳定品系中构建时,我们注意到对两个构建均为双纯合的果蝇虽可存活但不育。由于纯合子 Gal80ts 和 da-Gal4 菌株单独存在时具有活力且可育,但尚不清楚为何组合后会出现育性降低的现象。长期以来已知Gal4对细胞具有轻微毒性 果蝇 组织22因此,酵母转录抑制因子Gal80的异源表达可能通过干扰内源性转录机制,进而加剧Gal4的毒性。这种毒性可能因Gal4在广泛性启动子控制下的普遍分布而进一步加重 da,一个在早期发育和性别决定中起关键作用的基因。无论不育的根本原因如何,我们均扩展了 Gal80ts; da-Gal4 通过保持平衡染色体来维持果蝇品系 da-Gal4 同时保持纯合性 Gal80ts,表明Gal4对不育性的影响更为关键。这一解决方案至关重要,因为我们每隔一周就需要使用数百只此类雄性果蝇与各个UAS转基因品系进行杂交。然而,携带平衡染色体的杂交在筛选合适子代时增加了额外工作量。仅有四分之一(25%)的子代被收集(即雌性、非平衡染色体个体),这延长了筛选时间,降低了每瓶的产量,并增加了获得每基因型/重复/时间点至少200只果蝇所需的瓶数。总体而言,尽管由于所需样本量较大导致果蝇收集过程耗时较长,但我们确信,在广泛诱导致病基因表达仅数小时后即研究细胞变化,将有助于发现与进行性神经元丢失相关的新颖且重要的生物学过程。
在完成基因设计后,我们特别关注可能引入生物学变异的实验操作。首先,我们仅收集处女雌蝇以确保样本的均一性,尽管这意味着需要丢弃雄蝇,并且每天检查两次子代。在衰老过程中,每个试管中饲养的果蝇不超过12只,以避免过度拥挤和应激。此外,在冷冻前,果蝇被转移至冻存管中且未使用麻醉剂,并在转移后静置恢复30分钟。这些看似微不足道的因素可能影响基因表达和代谢,从而在最终分析中引入与实验目的无关的变异。
为了确保冷冻样品(头部、RNA 和代谢物)的质量,我们特别关注了可能导致组织降解的每一个细节。由于果蝇是以少量(每管最多 12 只)转移至冻存管中的,因此在收集 200 个头部时需要取出大量冻存管。这些操作均在低温环境中使用干冰和液氮极其小心地进行。果蝇的收集、头部的分离以及信息分子的纯化过程耗时较长,若在流程结束时才发现材料已降解,将造成巨大损失。除确保样品质量外,本方案还包含多个可最大化 RNA 和代谢物得率的步骤,如冷冻干燥和珠磨破碎。这些步骤在对整只果蝇进行常规 RT-PCR 或定量 PCR 提取时并非必需,但对于从果蝇头部等微量样本中稳定纯化分子则至关重要。我们发现其他一些步骤也会影响 RNA 的得率。例如,无论基因型如何,老年果蝇产生的 RNA 显著少于年轻果蝇。该观察结果提示,高温下的衰老过程会引发显著变化。此外,从 100 个头部提取 RNA 的效率实际上高于从 200 个头部提取,因此我们选择将每个样本分为两批各 100 个头部分别纯化,待通过 BioAnalyzer 验证质量后再合并。同时,mRNA 纯化柱似乎容易饱和,因此每根柱子所用的总 RNA 量需进行优化。
代谢物是一类多样化的有机小分子,因此其质量控制比DNA、RNA或蛋白质更为困难。目前尚无任何动物模型的完整代谢物目录,但随着核磁共振(NMR)波谱技术和液相色谱-质谱联用(LC-MS)等技术的广泛应用,这一状况可能在今后几年内得到改善。尽管NMR的灵敏度低于质谱(MS),但它展现出诸多显著优势,例如不破坏样品、无需引入分析偏差的前处理步骤(如液相色谱),以及高度的可重复性,从而允许对重复样本和多种实验条件进行统计学比较24。因此,样品可被重复检测以验证观察结果,或通过LC-MS重新分析以验证NMR数据。本文中,我们展示了利用果蝇获得的初步NMR数据,这些数据正被用于构建黑腹果蝇(Drosophila)代谢物的目录。该信息对于阐明致病基因的表达如何改变正常代谢过程至关重要,将为深入理解神经退行性疾病的细胞机制打开新的窗口。
新兴的组学技术为研究神经退行性疾病提供了前所未有的精细水平。在这些高通量研究中,最大的挑战可能是如何可靠地收集可重复的样本,以便利用高灵敏度方法进行分析。本文介绍的实验流程可实现这种一致性,从而获得易于在不同数据集之间比较的结果。尽管我们的主要研究兴趣在于基因表达和代谢物变化的检测,但所获得的果蝇样本也可用于蛋白质组学或表观基因组学分析。神经退行过程中发生的蛋白质组学和表观基因组学改变,同样可能对疾病进程具有至关重要的意义。当科学界最终全面鉴定出影响疾病进程的全部分子变化时,我们将真正实现对疾病的系统性理解。在此基础上,疾病修饰疗法终将成为现实。
披露
作者声明不存在竞争性财务利益。
致谢
我们感谢Janice Santiago、Gabriel Figueroa和Jose Herrera提供的技术协助以及Bloomington 果蝇 果蝇品系由印第安纳大学品系中心提供。DH和CW的研究得到了美国国家科学基金会(NSF-IOS-1051890)基金的支持。PF-F和LMM的研究得到了佛罗里达大学机会种子基金的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 爵士混合 果蝇 食物 | Fisher Scientific | AS-153 | |
| 冻存管 | 康宁公司 | 430658 | |
| 微量离心管 | Axygen | MCT-175-C-S | |
| RNaseZap | Ambion | AM9786 | 处理所有表面 |
| 5/32" 研磨珠,不锈钢 | OPS Diagnostics | GSS 156-5000-01 | |
| TRIzol | Ambion | 15596018 | |
| 1-溴-3-氯丙烷 | Sigma | B9673-200ML | |
| 异丙醇 | Fisher Scientific | A416-500 | |
| DEPC处理水 | Fisher Scientific | BP561-1 | |
| DNase I | Promega | M6101 | |
| RNasin 核糖核酸酶抑制剂 | Promega | N2111 | |
| RNeasy Mini Kit | Qiagen | 74104 | |
| Dynabeads mRNA 纯化试剂盒 | Invitrogen | 610-06 | |
| 锥形螺口管 | Fisher Scientific | 02-681-344 | |
| 带O型圈的螺口盖 | Fisher Scientific | 02-681-364 | |
| 2.0 mm 氧化锆珠 | BioSpec 产品 | 11079124zx | |
| 甲醇,HPLC级 | Fisher Scientific | A4524 | |
| 氯仿,HPLC级 | Acros Organics | AC39076 | |
| <强>果蝇 库存 | |||
| da-Gal4 | 布卢明顿果蝇资源中心 | 5460 | |
| Gal80[ts] | 布卢明顿果蝇资源中心 | 7108 | |
| UAS-MJD-27Q | 布卢明顿果蝇资源中心 | 8149 | |
| UAS-MJD-78Q | 布卢明顿果蝇资源中心 | 8150 | |
| UAS-LacZ | 布卢明顿果蝇资源中心 | 8529 | |
| <强>仪器设备 | |||
| Inject+Matic Sleeper | INJECT+MATIC | ||
| 微筛套装 | Fisher Scientific | 3410531 | 使用两个最大的网孔 |
| Geno/Grinder 2000 | SPEX样品制备 | SP2100-115 | |
| Sorvall Legend 微型离心机 | 赛默飞世尔科技 | 75002436 | |
| FreeZone Plus 2.5 L Cascade 冷冻干燥系统 | LabConco | 7670041 | |
| BioAnalyzer v. 2.6 | 安捷伦 | 2100 | |
| DynaMag-2 磁力架 | Invitrogen | 123-21D | |
| NanoDrop 分光光度计 | 赛默飞世尔科技 | ||
| Fast Prep 匀浆器 | 赛默飞世尔科技 | FP120 | |
| Centrivap Vacufuge Plus | Labconco | 022820001 |
参考文献
- Bellen, H. J., Tong, C., Tsuda, H. 100 years of Drosophila research and its impact on vertebrate neuroscience: a history lesson for the future. Nat. Rev. Neurosci. 11, 514-522 (2010).
- Bier, E. Drosophila, the golden bug, emerges as a tool for human genetics. Nat. Rev. Genet. 6, 9-23 (2005).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction and purification. Can. J. Biochem. Physiol. 37, 911-917 (1959).
- Brand, A. H., Perrimon, N. Targeted gene expression as a means of altering cell fates and generating dominant phenotypes. Development. 118, 401-415 (1993).
- Bundy, J. G., Papp, B., Harmston, R., Browne, R. A., Clayson, E. M., Burton, N., Reece, R. J., Oliver, S. G., Brindle, K. M. Evaluation of predicted network modules in yeast metabolism using NMR-based metabolite profiling. Genome Res. 17, 510-519 (2007).
- Casas-Tinto, S., Zhang, Y., Sanchez-Garcia, J., Gomez-Velazquez, M., Rincon-Limas, D. E., Fernandez-Funez, P. The ER stress factor XBP1s prevents amyloid-beta neurotoxicity. Hum. Mol. Genet. 20, 2144-2160 (2011).
- Fan, T. W. M. Metabolite Profiling by One and Two-Dimensional NMR Analysis of Complex Mixtures. Proress in Nuclear Magnetic Resonance Spectroscopy. 28, 161-219 (1996).
- Fernandez-Funez, P., Casas-Tinto, S., Zhang, Y., Gomez-Velazquez, M., Morales-Garza, M. A., Cepeda-Nieto, A. C., Castilla, J., Soto, C., Rincon-Limas, D. E. In vivo generation of neurotoxic prion protein: role for hsp70 in accumulation of misfolded isoforms. PLoS Genet. 5, e1000507(2009).
- Fernandez-Funez, P., Nino-Rosales, M. L., de Gouyon, B., She, W. C., Luchak, J. M., Martinez, P., Turiegano, E., Benito, J., Capovilla, M., Skinner, P. J., McCall, A., Canal, I., Orr, H. T., Zoghbi, H. Y., Botas, J. Identification of genes that modify ataxin-1-induced neurodegeneration. Nature. 408, 101-106 (2000).
- Fernandez-Funez, P., Zhang, Y., Casas-Tinto, S., Xiao, X., Zou, W. Q., Rincon-Limas, D. E. Sequence-dependent prion protein misfolding and neurotoxicity. J. Biol. Chem. 285, 36897-36908 (2010).
- Graze, R. M., McIntyre, L. M., Main, B. J., Wayne, M. L., Nuzhdin, S. V. Regulatory divergence in Drosophila melanogaster and D. simulans, a genomewide analysis of allele-specific expression. Genetics. 183, 547-561 (2009).
- Graze, R. M., Novelo, L. L., Amin, V., Fear, J. M., Casella, G., Nuzhdin, S. V., McIntyre, L. M. Allelic imbalance in Drosophila hybrid heads: exons, isoforms, and evolution. Mol. Biol. Evol. 29, 1521-1532 (2012).
- Greene, J. C., Whitworth, A. J., Kuo, I., Andrews, L. A., Feany, M. B., Pallanck, L. J. Mitochondrial pathology and apoptotic muscle degeneration in Drosophila parkin mutants. Proc. Natl. Acad. Sci. U.S.A. 100, 4078-4083 (2003).
- Gunawardena, S., Goldstein, L. S. Disruption of axonal transport and neuronal viability by amyloid precursor protein mutations in Drosophila. Neuron. 32, 389-401 (2001).
- Hahn, D. A., Denlinger, D. L. Energetics of insect diapause. Annu. Rev. Entomol. 56, 103-121 (2011).
- Kawaguchi, Y., Okamoto, T., Taniwaki, M., Aizawa, M., Inoue, M., Katayama, S., Kawakami, H., Nakamura, S., Nishimura, M., Akiguchi, I., et al. CAG expansions in a novel gene for Machado-Joseph disease at chromosome 14q32.1. Nat. Genet. 8, 221-228 (1994).
- Lee, F. W., Akiguchi, S. C. The use of Trizol reagent (phenol/guanidine isothiocyanate) for producing high quality two-dimensional gel electrophoretograms (2-DE) of dinoflagellates. J. Microbiol. Methods. 73, 26-32 (2008).
- Matthews, K. A., Kaufman, T. C., Gelbart, W. M. Research resources for Drosophila: the expanding universe. Nat. Rev. Genet. 6, 179-193 (2005).
- McGuire, S. E., Le, P. T., Osborn, A. J., Matsumoto, K., Davis, R. L. Spatiotemporal rescue of memory dysfunction in Drosophila. Science. 302, 1765-1768 (2003).
- Paulson, H. L., Das, S. S., Crino, P. B., Perez, M. K., Patel, S. C., Gotsdiner, D., Fischbeck, K. H., Pittman, R. N. Machado-Joseph disease gene product is a cytoplasmic protein widely expressed in brain. Ann. Neurol. 41, 453-462 (1997).
- Pfeiffer, B. D., Ngo, T. T., Hibbard, K. L., Murphy, C., Jenett, A., Truman, J. W., Rubin, G. M. Refinement of tools for targeted gene expression in Drosophila. Genetics. , 186-735 (2010).
- Rezaval, C., Werbajh, S., Ceriani, M. F. Neuronal death in Drosophila triggered by GAL4 accumulation. Eur. J. Neurosci. 25, 683-694 (2007).
- Rincon-Limas, D., Jensen, K., Fernandez Funez, A. Drosophila models of proteinopathies: the little fly that could. Curr. Pharm. Des. 18, 1108-1122 (2012).
- Robinette, S. L., Ajredini, R., Rasheed, H., Zeinomar, A., Schroeder, F. C., Dossey, A. T., Edison, A. S. Hierarchical Alignment and Full Resolution Pattern Recognition of 2D NMR Spectra: Application to Nematode Chemical Ecology. Anal. Chem. , (2011).
- Simon, A. F., Daniels, R., Romero-Calderon, R., Grygoruk, A., Chang, H. Y., Najibi, R., Shamouelian, D., Salazar, E., Solomon, M., Ackerson, L. C., Maidment, N. T., Diantonio, A., Krantz, D. E. Drosophila vesicular monoamine transporter mutants can adapt to reduced or eliminated vesicular stores of dopamine and serotonin. Genetics. 181, 525-541 (2009).
- Smith, C. D., Shu, S., Mungall, C. J., Karpen, G. H. The Release 5.1 annotation of Drosophila melanogaster heterochromatin. Science. 316, 1586-1591 (2007).
- Steffan, J. S., Bodai, L., Pallos, J., Poelman, M., McCampbell, A., Apostol, B. L., Kazantsev, A., Schmidt, E., Zhu, Y. Z., Greenwald, M., Kurokawa, R., Housman, D. E., Jackson, G. R., Marsh, J. L., Thompson, L. M. Histone deacetylase inhibitors arrest polyglutamine-dependent neurodegeneration in Drosophila. Nature. 413, 739-743 (2001).
- Tang, F., Barbacioru, C., Nordman, E., Li, B., Xu, N., Bashkirov, V. I., Lao, K., Surani, M. A. RNA-Seq analysis to capture the transcriptome landscape of a single cell. Nat. Protoc. 5, 516-535 (2010).
- Tare, M., Modi, R. M., Nainaparampil, J. J., Puli, O. R., Bedi, S., Fernandez-Funez, P., Kango-Singh, M., Singh, A. Activation of JNK signaling mediates amyloid-ss-dependent cell death. PLoS One. 6, e24361(2011).
- Taylor, J. P., Taye, A. A., Campbell, C., Kazemi-Esfarjani, P., Fischbeck, K. H., Min, K. T. Aberrant histone acetylation, altered transcription, and retinal degeneration in a Drosophila model of polyglutamine disease are rescued by CREB-binding protein. Genes Dev. 17, 1463-1468 (2003).
- Venken, K. J., Bellen, H. J. Transgenesis upgrades for Drosophila melanogaster. Development. , 134-3571 (2007).
- Wang, Z., Gerstein, M., Snyder, M. RNA-Seq: a revolutionary tool for transcriptomics. Nat. Rev. Genet. 10, 57-63 (2009).
- Warrick, J. M., Chan, H. Y., Gray-Board, G. L., Chai, Y., Paulson, H. L., Bonini, N. M. Suppression of polyglutamine-mediated neurodegeneration in Drosophila by the molecular chaperone HSP70. Nat. Genet. 23, 425-428 (1999).
- Warrick, J. M., Paulson, H. L., Gray-Board, G. L., Bui, Q. T., Fischbeck, K. H., Pittman, R. N., Bonini, N. M. Expanded polyglutamine protein forms nuclear inclusions and causes neural degeneration in Drosophila. Cell. 93, 939-949 (1998).
- Wu, H., Southam, A. D., Hines, A., Viant, M. R. High-throughput tissue extraction protocol for NMR- and MS-based metabolomics. Anal. Biochem. 372, 204-212 (2008).
重印与许可
