一种用于小鼠脊髓成像的新型ex vivo制备方法。该方案可实现对整个脊髓内活细胞相互作用的双光子成像。
本文内容
摘要
摘要
双光子(2P)显微技术被用于揭示活体完整组织深层的细胞动态及其相互作用。本文介绍一种在小鼠脊髓中进行活细胞成像的方法。该技术特别适用于分析神经前体细胞(NPC)在移植后,于发生神经炎症性脱髓鞘疾病脊髓中的动态行为。移植的NPC可迁移至轴突损伤部位,增殖并分化为少突胶质细胞,直接参与髓鞘再形成,因此在治疗慢性脱髓鞘疾病方面具有良好的治疗前景。由于移植的NPC会迁移至脊髓腹侧的损伤区域,传统的活体双光子成像难以实现,以往仅能通过组织化学染色方法获得静态相互作用的信息。尽管本方法最初旨在对脊髓腹侧移植的NPC进行成像,但它也可广泛应用于整个脊髓中移植细胞及内源性细胞的多种研究。本文中,我们展示了对表达增强型黄色荧光蛋白的轴突以及表达增强型绿色荧光蛋白的移植NPC的脊髓样本进行制备与成像的全过程。
引言
脱髓鞘疾病的小鼠模型,包括实验性自身免疫性脑脊髓炎(EAE)和神经适应性小鼠肝炎病毒(MHV)颅内感染,是研究与疾病相关的分子通路和细胞相互作用的优秀工具。这些模型已推动并支持了美国食品药品监督管理局(FDA)批准的药物疗法的有效性,主要靶向抑制自身免疫和炎症反应1。然而,一旦内源性再髓鞘化失败,目前获批的疗法无法有效修复中枢神经系统中的脱髓鞘病灶。因此,在疾病这一阶段,以修复为导向的治疗对于缓解慢性症状和改善生活质量至关重要。近年来,神经前体细胞(NPCs)作为一种潜在的再生治疗手段,逐渐成为研究热点,可用于靶向炎症和脱髓鞘区域。多项研究已证实,NPCs 能够诱导内源性再髓鞘化,并直接参与再髓鞘化过程2-8。由于 NPCs 参与直接再髓鞘化,因此必须深入了解其在移植后与内源性细胞的动力学行为及相互作用。移植后,NPCs 会向腹侧迁移至白质损伤区域,随后相对于移植位点向头端和尾端扩散5,9。迁移动力学因环境信号的不同而有所差异;移植到未受损脊髓中的 NPCs 迁移速度高于移植到受损脊髓中的 NPCs6。在迁移阶段之后,移植的 NPCs 会广泛增殖,在受损脊髓中的增殖速率高于完整脊髓中的增殖速率6。最终,大多数 NPCs 分化为少突胶质细胞,并启动直接再髓鞘化4,6,9。
脱髓鞘病灶结构复杂,可能包含处于不同活化阶段的多种细胞群体。例如,活动性多发性硬化(MS)病灶中可能含有大量活化的T细胞、M1型小胶质细胞和M1型巨噬细胞,而慢性静止性MS病灶则主要由反应性星形胶质细胞构成,炎症细胞较少10-13。由于效应细胞种类多样,利用脱髓鞘小鼠模型进行双光子(2P)成像成为研究病灶内局部细胞间相互作用的极为有用的工具。在MS及许多广泛使用的MS研究模型中,大多数病灶位于脊髓腹侧,该区域因病灶深度较大以及脊髓富含脂质,无法通过活体双光子成像进行观察。为克服这些问题,并研究脊髓腹侧病灶内的细胞间相互作用,我们建立了一种简便的离体(ex vivo)双光子成像制备方法6。
本研究延续了之前的一项方法学发表,该研究展示了在JHMV株鼠肝炎病毒(MHV)诱导脱髓鞘后,将表达增强型绿色荧光蛋白(eGFP)的神经前体细胞(NPCs)移植至小鼠脊髓的操作步骤14。五周龄小鼠感染JHMV后,在感染后第14天于胸椎第9节水平移植eGFP-NPCs。本文所述方案详细介绍了如何提取脊髓、制备脊髓的离体琼脂糖标本,并对移植的eGFP-NPCs与表达增强型黄色荧光蛋白(eYFP)的轴突之间的相互作用进行成像。本实验中使用了在神经元特异性Thy1启动子驱动下表达eYFP的小鼠15。仅部分轴突表达eYFP,因此适用于对单个轴突进行成像观察。本文展示的是移植后7天取出的脊髓样本;然而,脊髓可在移植后的任意时间点取出。尽管本文主要展示NPCs与受损轴突之间的相互作用,但本方案也可与其他细胞类型的遗传荧光标记联合使用,以研究小鼠脊髓内发生的多种细胞间相互作用。
方案
注意:伦理声明:动物操作方案已获得加州大学欧文分校机构动物护理和使用委员会(IACUC)的批准,方案编号 #2010-2943。
1. 脊髓的摘除
- 在安乐死容器中放置用约100%液态异氟烷(USP)浸湿的纸巾,并在上方覆盖干燥的纸巾。将小鼠置于干燥纸巾上,确保小鼠不直接接触异氟烷,并盖好容器。呼吸停止后至少等待一分钟,以确认小鼠已安乐死。
- 进行颈部脊髓横断以确保小鼠死亡。不要采用颈椎脱位法,以免损伤脊髓。
- 用70%乙醇喷洒小鼠体表,使毛发湿润。
- 使用锋利的精细剪刀去除小鼠背部的毛发和皮肤,暴露从大约第一颈椎椎板(C1)至第四骶椎椎板(S4)的脊柱区域。
- 使用带有#10刀片的解剖刀,在脊柱左右两侧做切口,分离肌肉和脂肪组织,以便更易于取出脊髓。
- 可选:可使用弯头卢尔咬骨钳刮除多余的软组织。
- 用带齿的Graefe镊子夹住脊柱上端,在C1处将弯曲面朝上的钛制弯头Vannas剪刀插入暴露的脊柱内,注意避免触碰脊髓。
- 将钛制弯头Vannas剪刀完全滑至右侧并进行一次小幅度剪切,剪断椎骨时应能听到并感受到轻微的“咔嚓”声。在脊髓最左侧重复此剪切操作。注意动作不宜过快或剪切幅度过大,以免剪刀损伤脊髓。
- 当椎骨两侧被剪断后,可用镊子将单个椎板轻轻提起。重复此步骤,逐个处理每个椎板直至S4,持续夹持并后拉脊柱椎骨。
注:移植部位上方的椎骨在切割至移植部位时通常会自然脱落。请从移植部位稍下方开始继续操作。 - 可选:将椎骨平放,观察并确定移植部位位置,测量并在移植部位头侧和尾侧各截取约20 mm的脊髓段。
注:若移植神经前体细胞(NPCs),通常无需更长的组织,因为移植的NPCs迁移距离一般不超过15 mm。所需脊髓长度取决于实验设计及所移植细胞类型的迁移特性。在移植部位头侧和尾侧进行等距切割有助于在成像过程中更易定位移植位点。 - 使用带有#11刀片的解剖刀,从头端开始,小心地切除脊髓腹侧左右两侧的神经节,以便更顺利地将脊髓从腹侧椎骨中取出。
注:若快速完成步骤1.7–1.11,脊髓不会干燥。但也可向脊髓滴加1×PBS以保持其湿润。 - 将小鼠翻转并提起,使脊髓朝下。用闭合的带齿Graefe镊子小心地将脊髓剥离取出。在不划伤脊髓的前提下,剪断任何残留的神经节,使脊髓能够完整无损地被整体取出。
- 确保脊髓置于RPMI-1640培养基中,并将其放置于冰上,以便运输至双光子显微镜进行成像。
2. 成像用脊髓的制备
- 将脊髓包埋于琼脂糖中
- 成像前,将分离的脊髓置于冰上预冷的RPMI-1640培养基中保存。
- 称取琼脂糖(低凝胶温度),用5 ml 1× PBS配制5%溶液。将5%琼脂糖溶液放入微波炉加热15秒以溶解琼脂糖,随后让溶液冷却至37 °C。
- 将脊髓腹侧朝上放置于一片Parafilm膜上,进行脊髓样品准备。
- 用移液器将约5 ml的5%琼脂糖溶液覆盖在脊髓腹侧表面。通过冷却至室温使琼脂糖凝固,完全凝固约需5分钟。
- 在一块22 mm见方的盖玻片表面薄薄涂上一层组织粘合剂。
- 将包埋好的脊髓翻转,使腹侧朝下贴于Parafilm膜上,此时背侧朝上。将盖玻片粘附于脊髓背侧,并将琼脂糖包埋的脊髓与盖玻片整体浸入RPMI培养基中,以固化粘合剂。使用刀片去除多余的已凝固琼脂糖。
- 将脊髓安装至显微镜载物台上
- 在盖玻片底部涂抹一层凡士林,以在灌流过程中稳定样品。
- 将脊髓样品置于显微镜载物台的成像槽中,腹侧朝上,正对25倍浸入式物镜。定制的成像槽深度约为20 mm,长50 mm,宽50 mm。
- 在持续灌流温热(37 °C)、充氧(95:5 氧气:二氧化碳混合气—碳酰气)且不含血清的RPMI-1640培养基的条件下进行成像。
- 将培养基在水浴中预热至37 °C,并通过将管路插入培养基瓶中连接至蠕动泵。
- 在管路与成像槽连接处使用加热装置维持培养基温度为37 °C。通过连接至蠕动泵的管路以3 ml/min的流速向成像槽内持续灌流培养基(图1B)。
3. 腹侧脊髓的双光子成像
- 显微镜设置
- 使用调谐至900 nm的Chameleon Ultra Ti: Sapphire激光器获取Thy1-eYFP脊髓的图像。将样品处的激光功率衰减至<5%,以确保光毒性最小化16。通过单个串联溶液加热器持续灌注含氧RPMI-1640培养基,并维持恒定的37 °C温度,以保证成像稳定,并防止组织漂移和细胞损伤。
- 为分离eGFP和eYFP荧光信号,将520 nm单边二向色镜和560 nm单边二向色镜分束器串联放置,将双光子发射分为三个通道,有意拆分绿色发射以增强可见性。
注意:这些通道分别称为蓝绿色(发射波长<520 nm)、绿黄色(520–560 nm)和红色(发射波长>560 nm)。每个通道的发射光由光电倍增管检测。
- 定位感兴趣成像区域
- 使用目镜和明场光源,将浸入式物镜聚焦于脊髓腹侧边缘,以设定参考点。
- 确保环境光源关闭,并通过打开激光快门切换至双光子激发模式。
- 如条件允许,在搜索组织中的感兴趣区域时,应采用比最终图像采集时更低的分辨率、更大的成像体积(无数字放大)和更高的扫描速率。本系统在搜索感兴趣区域时的典型设置为:分辨率:256像素;成像体积:x = 600 μm,y = 600 μm,z = 0–300 μm。
- 观察脊髓腹侧边缘附近的eYFP轴突。胶原蛋白产生的二次谐波信号(蓝色)在脊髓组织边缘最明亮。eYFP轴突位于胶原蛋白二次谐波信号背侧稍远处,其信号在绿黄色通道中可见。
- 在脊髓标本的纵向中心定位移植部位14。对于移植eGFP-NPC后1天的小鼠,通过将光路在z轴方向深入组织内部聚焦来定位移植部位。不同动物间移植部位略有差异,但通常位于距腹侧边缘约200 μm处。在移植后第1天以后的小鼠中,可在白质纤维束中观察到eGFP-NPC的细胞簇,位置更靠近腹侧和外侧边缘。
- 采集最终图像
- 使用Slidebook 6软件采集分辨率为512像素、成像体积为x = 270 μm、y = 212 μm、z = 100 μm的图像。以2.5 μm为步长连续采集焦平面,构建z轴层扫图像堆栈。
- 采用适当的交错偏移进行双向扫描,以快速量化脊髓中迁移物体的运动情况。确保用于测定脊髓内细胞运动速度的理想采集帧率约为每秒1帧。
注意:可根据用户个人偏好调整成像参数,例如采集帧率、成像分辨率和成像体积。在给定分辨率下,较大的成像体积通常需要更长的采集时间。 - 使用图像分析软件(如Bitplane Imaris 7.7)对Slidebook图像文件进行分析、裁剪、平滑和伪彩处理。通过Slidebook和Imaris中的自动化流程整合连续的成像体积,生成最终的延时视频。
结果
尽管离体脊髓成像方案可用于观察脊髓内的任何荧光信号,但我们展示的结果重点呈现了表达eGFP的神经前体细胞(NPC)与表达eYFP的轴突之间的相互作用。图1A展示了包埋后的腹侧脊髓组织制备样本。接着,图1B展示了双光子显微镜的装置及其关键组件。图2显示了在腹侧脊髓单个z轴层扫图像中eGFP与eYFP的荧光信号。连续采集的多个z轴层扫图像可整合生成延时视频,用于分析完整组织内细胞动态的实时变化。根据本方案所述,使用520 nm单边二向色镜和560 nm单边二向色分光镜,可有效分离eGFP与eYFP信号。通过成像软件,可将各个通道分别伪彩为绿色和黄色。
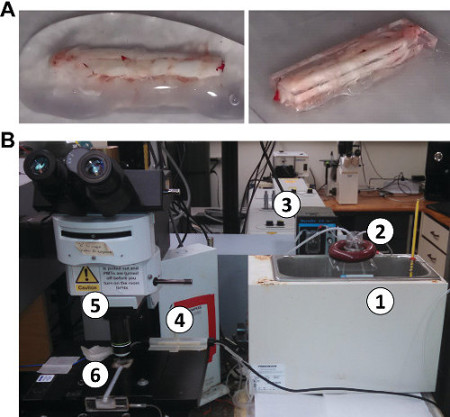
图1:脊髓及显微镜装置。(A) 包埋在5%琼脂糖凝胶中的脊髓(左),去除多余琼脂糖后固定在盖玻片上(右)。(B) 显微镜装置图,标注了关键组件:1. 设定为37 °C的水浴装置;2. 预先加温的RPMI-1640培养基;3. C/L可调速蠕动泵;4. 单通道溶液加热器;5. 浸入式物镜;6. 数字温度计。请点击此处查看该图的放大版本。
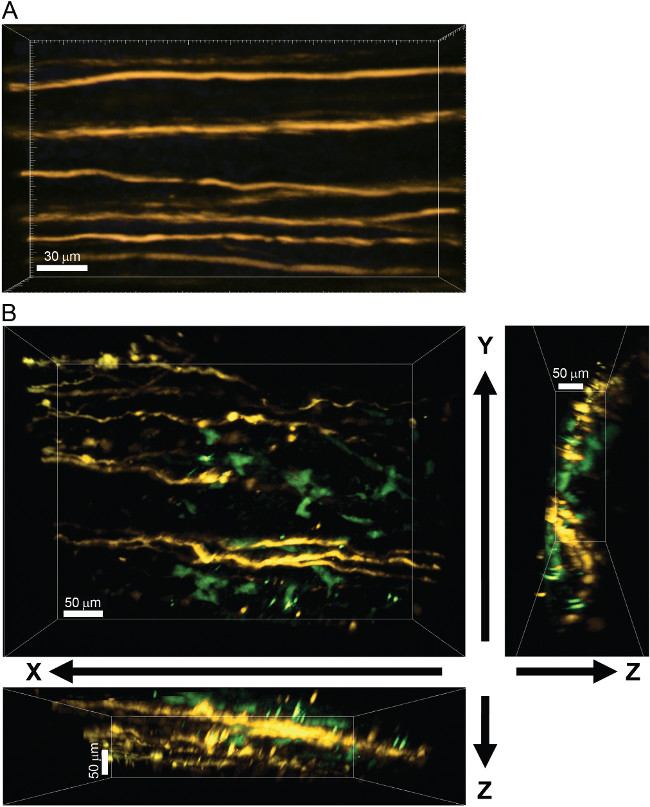
图 2:在脊髓腹侧内部获取的双光子成像示例。 移植了 eGFP 标记的神经前体细胞(NPCs)后,来自 Thy1-eYFP 小鼠的未感染、无损伤 (A) 和 JHMV 感染后脱髓鞘 (B) 脊髓腹侧的三维重建图像。荧光标记的轴突以黄色伪彩显示,NPCs 以绿色伪彩显示。图像分辨率:512 像素;图像体积:(A) x = 239 µm,y = 259 μm,z = 65 µm,由 26 层间距为 2.5 µm 的 z 轴堆栈图像构建;(B) x = 497 µm,y = 389 µm,z = 127.5 µm,由 51 层间距为 2.5 µm 的 z 轴堆栈图像构建。
讨论
为了研究神经前体细胞(NPC)在移植到脱髓鞘小鼠脊髓后其动力学行为和相互作用,需要对完整组织进行实时双光子(2P)成像。活体双光子成像通常用于在活体小鼠中检测脊髓背侧的细胞动态,并已被用于研究脱髓鞘疾病中的背侧脱髓鞘过程17-19。然而,由于移植的NPC会迁移至腹侧白质,而该区域过深,无法通过双光子显微镜在体内原位成像,因此需要采用离体(ex vivo)制备方法。本实验室已使用该方法来确定移植到受损和未受损脊髓中的NPC的迁移能力及再髓鞘化动力学6。离体制备技术不仅允许对脊髓进行纵向扫描,还可从腹侧进行横向扫描6,20,从而能够分析细胞在移植部位、邻近移植部位以及距离移植部位不同位置处的运动差异(速度与方向)及其相互作用6。尽管我们最初设计该制备方法是为了成像移植至脊髓腹侧的eGFP标记NPC,但通过调整脊髓的安装方向,该方法也可用于对腹侧、背侧或侧方的任何荧光标记或染色细胞进行成像。与活体成像相比,该制备方法的优势在于可实现腹侧成像,并且无需麻醉和存活手术——而使用“玻璃窗”装置的新一代活体成像技术仍需进行麻醉和手术,尽管其允许在无需重复手术的情况下进行多次成像19,21。需要注意的是,与结合“玻璃窗”装置的活体成像方法相比,该方法的一个局限性在于无法从同一只小鼠获取多个时间点的数据,因为脊髓被取出后小鼠即被实施安乐死。
双光子成像非常适合解析完整组织内单个细胞的动态过程22,23。双光子激发利用近红外光子,可在最小光毒性的条件下实现长时间的深层组织成像。双光子激发发生在荧光分子同时吸收两个光子时。实现双光子激发所需的高光子浓度,是通过对双光子激光输出在单一焦平面进行时空压缩而达到的。这将荧光激发限制在焦点位置,进一步减少了焦平面以外脊髓区域的光毒性。近红外光子的散射也较少,使得能够从脊髓腹侧进行深度达约300 µm的成像16。
然而,与任何新技术一样,离体脊髓的双光子成像也存在一些必须注意的局限性。本成像方案使用520 nm的二向色镜,可通过将eGFP发射光引导至通常用于蓝光的荧光通道,从而实现eGFP与eYFP荧光的有效分离。脊髓中胶原产生的二次谐波也会出现在蓝光通道中,但可轻易与eGFP标记的细胞区分开来,因为在本实验体系中,eGFP标记的细胞在该通道中明显更亮,并且其部分发射光可在绿-黄光通道中被识别,而胶原则无此特征。这种利用特定二向色镜对发射光谱不同部分进行通道混合与分离的技术,通常有助于对发射光谱相近或几乎重叠的单个荧光团进行视觉或自动识别。光毒性是本双光子成像方案的另一项局限性。单个成像体积内的细胞对光毒性敏感,因此实验人员应高度警惕光毒性的迹象。光毒性通常首先表现为细胞运动能力的降低或丧失,随后出现光漂白和/或局部组织的形态学改变。多种因素可能损伤组织,导致光毒性或使组织不适合活细胞成像。必须严格监控激光功率以及灌流RPMI-1640培养基的温度和氧合状态。同时,必须确保在取出小鼠脊髓时操作得当,避免过度拉伸或压迫脊髓,且不得使用刀片切割脊髓。若操作得当,离体脊髓标本的活性可维持长达十小时,依据是在脊髓腹侧区域可观测到持续活跃的细胞运动,且在取出后十小时仍未见减弱。多种离体组织常被长时间成像并被认为具有活性23-26。因此,可在单个脊髓内的多个区域对细胞动态进行定量分析。最后需要指出的是,绝大多数未被荧光标记的细胞在本实验条件下无法被观察到(除非其本身具有天然自发荧光),并且必须认识到,被标记的细胞实际上正与大量未标记、看似不可见的内源性细胞及结构成分所构成的复杂微环境相互作用。
致谢
本工作部分得到了美国国立卫生研究院(NIH)基金项目 R01 GM-41514(资助 M.D.C.)、R39 GM-048071(资助 I.P.)和 R01 NS-074987(资助 T.E.L.),以及美国国家多发性硬化症协会(NMSS)协作中心研究奖 CA1058-A-8(资助 C.M.W.、T.E.L. 和 M.D.C.)、NMSS 基金项目 RG4925、NIH 培训基金 T32-AI-060573(资助 M.L.G.)、NMSS 博士后奖学金 FG 1960-A-1(资助 J.G.W.)和乔治·E·休伊特医学研究基金会(M.P.M.)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 异氟烷,USP | Piramal Critical Care, Inc | N/A | |
| 精细剪刀 | Fine Science Tools | 14060-09 | 锋利 |
| 10号手术刀片 | Fine Science Tools | 10010-00 | |
| 手术刀柄 | Fine Science Tools | 10003-12 | |
| 鲁尔咬骨钳 | Fine Science Tools | 16001-15 | |
| 格拉费镊子 | Fine Science Tools | 11052-10 | |
| 万纳斯剪刀 | Fine Science Tools | 15615-08 | |
| 11号手术刀片 | Fine Science Tools | 10011-00 | |
| RPMI-1640 培养基 | Gibco | 12-115F | |
| 低凝胶温度琼脂糖 | Sigma | A9414-25G | |
| 帕拉菲尔膜(Parafilm) | Fisher Scientific | 13-374-12 | |
| Vetbond(组织粘合剂) | 3M | 1469SB | |
| 22 mm 方形盖玻片 | Fisher Scientific | 12-547 | |
| 25倍浸入式物镜,1.1 数值孔径 | Nikon | CFI Apo LWD 25XW | |
| 单通道可调速管路泵 | Warner Instruments | 64-0102 | |
| 520 nm 单边二向色分光镜 | Semrock | FF520-Di02-25x36 | Brightline |
| 560 nm 单边二向色分光镜 | Semrock | FF560-FDi01-25x36 | Brightline |
| 光电倍增管 | Hamamatsu | R928 | |
| C/L 可变速蠕动泵 | Masterflex | 77122-22 | |
| 数字温度计 | Comar Instruments | 3501 | |
| Chameleon Ultra Ti:Sapphire 激光器 | Coherent | N/A | |
| Slidebook 6 软件 | 3i | N/A | |
| Imaris 7.7 软件 | Bitplane | N/A |
参考文献
- Robinson, A. P., Harp, C. T., Noronha, A., Miller, S. D. The experimental autoimmune encephalomyelitis (EAE) model of MS: utility for understanding disease pathophysiology and treatment. Handb Clin Neurol. 122, 173-189 (2014).
- Pluchino, S., Zanotti, L., Brini, E., Ferrari, S., Martino, G. Regeneration and repair in multiple sclerosis: the role of cell transplantation. Neurosci Lett. 456 (3), 101-106 (2009).
- Hatch, M. N., Schaumburg, C. S., Lane, T. E., Keirstead, H. S. Endogenous remyelination is induced by transplant rejection in a viral model of multiple sclerosis. J Neuroimmunol. 212 (1-2), 74-81 (2009).
- Totoiu, M. O., Nistor, G. I., Lane, T. E., Keirstead, H. S. Remyelination, axonal sparing, and locomotor recovery following transplantation of glial-committed progenitor cells into the MHV model of multiple sclerosis. Exp Neurol. 187 (2), 254-265 (2004).
- Tirotta, E., Carbajal, K. S., Schaumburg, C. S., Whitman, L., Lane, T. E. Cell replacement therapies to promote remyelination in a viral model of demyelination. J Neuroimmunol. 224 (1-2), 101-107 (2010).
- Greenberg, M. L., et al. Two-photon imaging of remyelination of spinal cord axons by engrafted neural precursor cells in a viral model of multiple sclerosis. Proc Natl Acad Sci U S A. 111 (22), E2349-E2355 (2014).
- Whitman, L. M., Blanc, C. A., Schaumburg, C. S., Rowitch, D. H., Lane, T. E. Olig1 function is required for remyelination potential of transplanted neural progenitor cells in a model of viral-induced demyelination. Exp Neurol. 235 (1), 380-387 (2012).
- Pluchino, S., et al. Injection of adult neurospheres induces recovery in a chronic model of multiple sclerosis. Nature. 422 (6933), 688-694 (2003).
- Weinger, J. G., et al. MHC mismatch results in neural progenitor cell rejection following spinal cord transplantation in a model of viral-induced demyelination. Stem Cells. 30 (11), 2584-2595 (2012).
- Vogel, D. Y., et al. Macrophages in inflammatory multiple sclerosis lesions have an intermediate activation status. J Neuroinflammation. 10, 35(2013).
- Coyle, P. K. Ch. 3. Clinical Neuroimmunology: Multiple Sclerosis and Related Disorders. Rizvi, S. A., Coyle, P. K. 3, Springer. 43-70 (2011).
- McManus, C., et al. MCP-1, MCP-2 and MCP-3 expression in multiple sclerosis lesions: an immunohistochemical and in situ hybridization study. J Neuroimmunol. 86 (1), 20-29 (1998).
- Calderon, T. M., et al. A role for CXCL12 (SDF-1alpha) in the pathogenesis of multiple sclerosis: regulation of CXCL12 expression in astrocytes by soluble myelin basic protein. J Neuroimmunol. 177 (1-2), 27-39 (2006).
- Carbajal, K. S., Weinger, J. G., Whitman, L. M., Schaumburg, C. S., Lane, T. E. Surgical transplantation of mouse neural stem cells into the spinal cords of mice infected with neurotropic mouse hepatitis virus. J Vis Exp. 53, e2834(2011).
- Feng, G., et al. Imaging neuronal subsets in transgenic mice expressing multiple spectral variants of GFP. Neuron. 28 (1), 41-51 (2000).
- Nguyen, Q. T., Callamaras, N., Hsieh, C., Parker, I. Construction of a two-photon microscope for video-rate Ca(2+) imaging. Cell Calcium. 30 (6), 383-393 (2001).
- Nikic, I., et al. A reversible form of axon damage in experimental autoimmune encephalomyelitis and multiple sclerosis. Nat Med. 17 (4), 495-499 (2011).
- Fenrich, K. K., Weber, P., Rougon, G., Debarbieux, F. Implanting glass spinal cord windows in adult mice with experimental autoimmune encephalomyelitis. J Vis Exp. 82, e50826(2013).
- Farrar, M. J., et al. Chronic in vivo imaging in the mouse spinal cord using an implanted chamber. Nat Methods. 9 (3), 297-302 (2012).
- Pakan, J. M., McDermott, K. W. A method to investigate radial glia cell behavior using two-photon time-lapse microscopy in an ex vivo model of spinal cord development. Front Neuroanat. 8, 22(2014).
- Fenrich, K. K., et al. Long-term in vivo imaging of normal and pathological mouse spinal cord with subcellular resolution using implanted glass windows. J Physiol. 590 (Pt 16), 3665-3675 (2012).
- Germain, R. N., Robey, E. A., Cahalan, M. D. A decade of imaging cellular motility and interaction dynamics in the immune system. Science. 336, 1676-1681 (2012).
- Miller, M. J., Wei, S. H., Parker, I., Cahalan, M. D. Two-photon imaging of lymphocyte motility and antigen response in intact lymph node. Science. 296 (6089), 1869-1873 (2002).
- Dzhagalov, I. L., Melichar, H. J., Ross, J. O., Herzmark, P., Robey, E. A. Two-photon imaging of the immune system. Curr Protoc Cytom. Chapter 12 (Unit12 26), (2012).
- Matheu, M. P., et al. Toll-like receptor 4-activated B cells out-compete Toll-like receptor 9-activated B cells to establish peripheral immunological tolerance. Proc Natl Acad Sci U S A. 109 (20), E1258-E1266 (2012).
- Matheu, M. P., et al. Three phases of CD8 T cell response in the lung following H1N1 influenza infection and sphingosine 1 phosphate agonist therapy. PLoS One. 8 (3), e58033(2013).
重印与许可
标签
