我们展示了遥感数据以及新开发的辅助生境建模软件(Software for Assisted Habitat Modeling, SAHM)在预测景观尺度上外来物种分布方面的应用价值。在美国科罗拉多州东南部,通过后续野外验证评估,一组集成预测模型生成了柽柳(Tamarix spp.)入侵的高精度分布图。
本文内容
摘要
摘要
早期发现入侵植物物种对于自然资源管理和生态系统过程保护至关重要。尽管利用卫星遥感技术绘制入侵植物分布图正变得越来越普遍,但传统的成像软件和分类方法已被证明可靠性不足。本研究测试并评估了五种物种分布模型技术结合卫星遥感数据用于绘制科罗拉多州东南部阿肯色河流域入侵性柽柳(Tamarix spp.)分布图的效果。所测试的模型包括提升回归树(BRT)、随机森林(RF)、多变量自适应回归样条(MARS)、广义线性模型(GLM)以及Maxent模型。这些分析使用了一款新开发的软件包——栖息地建模辅助软件(Software for Assisted Habitat Modeling, SAHM)进行。所有模型均基于499个存在点、10,000个伪缺失点以及在八个月期间从Landsat 5专题制图仪(TM)传感器获取的预测变量进行训练,通过检测物候差异来区分柽柳与本地河岸植被。从Landsat影像中,我们使用了单个波段,并计算了归一化植被指数(NDVI)、土壤调节植被指数(SAVI)以及缨帽变换。基于独立地点数据,采用阈值无关和阈值依赖的评估指标,所有五个模型均成功识别出景观上当前的柽柳分布。为考虑各模型之间的特异性差异,我们生成了这五个模型的集成图,地图输出突出显示了模型一致区域和不确定性区域。我们的结果表明,物种分布模型在分析遥感数据方面具有实用价值,集成制图方法具有应用优势,并展示了SAHM在预处理和运行多个复杂模型方面的功能能力。
引言
美国西南部的河岸带和湿地生态系统正受到外来木本灌木柽柳(Tamarix spp.)入侵的威胁,该物种于19世纪从欧亚大陆引入1。柽柳具有多种生理机制,使其能够高效利用水资源,排挤本土物种,并改变生态系统过程1-2。为评估环境影响并制定有效的控制策略,绘制柽柳分布图已成为资源管理者的重要任务。尽管地面调查仍被常规使用,但由于人力、时间和后勤成本高昂,在面积极大的区域开展地面调查并不可行。
卫星遥感在柽柳入侵的检测与制图中发挥了重要但有限的作用。传统的分类分析和遥感软件效果甚微3-5。近年来一些研究探索了利用遥感数据检测外来入侵植物的非传统方法1,6。柽柳与许多入侵植物类似,在整个生长季表现出与本地河岸植物不同的物候特征。例如,在某些地区,柽柳的展叶时间早于部分本地河岸植物,并且其叶片保留时间比其他本地物种更长。通过使用整个生长季卫星数据时间序列中的光谱波段和光谱指数,我们可以基于这些物候差异将柽柳与本地植物区分开来1,6。在Evangelista et al. 20091研究的基础上,本研究整合了Landsat 5专题制图仪(TM)卫星影像时间序列的第1至第7波段,并基于这些波段计算了归一化植被指数(NDVI)、土壤调节植被指数(SAVI)以及缨帽变换。归一化植被指数(NDVI)是最常用的光谱指数之一,用于估算植被生物量、冠层覆盖度和叶面积指数8-9,它是可见光(红光)波段与近红外波段比值的非线性变换10。土壤调节植被指数(SAVI)是对NDVI的改进,旨在减少土壤背景对植被指数的影响11。缨帽变换是将六个Landsat波段加权组合成三个正交波段,分别反映土壤亮度(缨帽,波段1)、植被绿度(缨帽,波段2)以及土壤/植被湿度(缨帽,波段3),常用于区分植被组成、年龄等级和结构12-14。本研究中所有缨帽变换均采用Crist(1985)15报告的系数。
在本研究中,我们利用从美国科罗拉多州东南部阿肯色河下游的陆地卫星5号TM数据中提取的光谱波段和植被指数时间序列,测试了五种物种分布模型,以绘制柽柳的分布图。阿肯色河全长2,364公里(1,469英里),是密苏里-密西西比河水系的第二大支流。其流域面积达435,123平方公里2 (168,002 英里2)发源于科罗拉多州落基山脉。该河起始于海拔2,965米处,流经科罗拉多州普韦布洛附近时地势显著降低,随后蜿蜒穿过农田与短草草原。阿肯色河易发生季节性洪水,并为洛克福德、拉琼塔和拉马尔等城镇提供市政及农业用水,之后继续流经堪萨斯州、俄克拉荷马州和阿肯色州,最终汇入密西西比河。1913年,R. Niedrach 在现今拉马尔镇附近首次观测到柽柳(Tamarisk)出现在阿肯色河流域16如今,据估计柽柳的覆盖面积已超过100 km2 在美国普韦布洛与堪萨斯州边界之间,另有60公里2 沿阿肯色河的支流17研究区域包括灌溉沟渠、湿地、农田以及多条支流的交汇处,这些区域均受到不同程度的柽柳入侵。毗邻河岸廊道的主要土地利用方式为畜牧业和农业,作物以苜蓿、干草、玉米和冬小麦为主。
物种分布模型依赖于地理参考的物种出现记录(即纬度、经度),以识别物种出现与环境之间的关系18。环境数据可包括多种遥感数据及其他空间图层。我们测试的五种物种分布模型包括提升回归树(BRT)19、随机森林(RF)20、多元自适应回归样条(MARS)21、广义线性模型(GLM)22和Maxent23。这五种模型算法是物种分布建模中最常用的算法之一,已有大量研究证明其有效性24-25。我们使用SAHM(Software for Assisted Habitat Modeling,辅助栖息地建模软件)v. 2.0模块来运行这五种模型,这些模块集成于VisTrails v.2.2.226可视化与处理软件中。使用SAHM进行比较建模具有多项优势。除了能够规范化建模流程并实现可追溯的记录外,SAHM还允许用户同时使用多种物种分布模型算法,而这些算法单独使用时往往具有不同的界面、软件环境和文件格式27。SAHM可生成一致的、不依赖阈值和依赖阈值的评估指标,用于评价模型性能。其中之一是受试者工作特征曲线下面积(Area Under the Receiver Operating Characteristic Curve, AUC),这是一种不依赖阈值的指标,用于评估模型区分物种出现点与背景点的能力28。AUC值为0.5或更低表明模型预测效果不比随机更好或更差;0.5至0.70之间的值表示模型性能较差;而从0.70到1.0逐渐增加的值则表示模型性能逐步提高。另一个指标是正确分类百分比(PCC),这是一种依赖阈值的指标,根据用户定义的阈值综合考虑敏感性与特异性;其中敏感性衡量被判定为适宜生境的观测出现点所占的百分比,特异性衡量被判定为不适宜生境的背景点所占的百分比。还有一个指标是真正技能统计量(True Skill Statistic, TSS = 敏感性 + 特异性 - 1),该指标对模型的敏感性赋予比特异性更高的权重,取值范围为-1至1,其中> 0的值表示模型性能优于随机预测29。
为了利用模型输出绘制柽柳的分布图,我们采用使灵敏度与特异度相等的阈值,构建了二元分类,以界定柽柳的存在或缺失。随后将这些由单个模型生成的分布图进行累加,以生成集成图谱30。集成图谱通过整合多个物种分布模型的预测结果,生成一张分类图,用以表示所测试模型在空间上的一致性程度。例如,集成图中像元值为1表示仅有一个模型将该像元判定为适宜栖息地,而像元值为5则表示所有五个模型均将其判定为适宜栖息地。该方法的一个优势在于,集成图谱的平均误差低于任意单个模型。此外,该方法还允许用户直观比较每个测试模型的表现。我们的总体目标是详细描述这些方法,以便根据实际需求调整,用于建模物种在景观尺度上的当前分布情况。
方案
1. 野外数据采集
- 从2005年和2006年由柽柳联盟(Tamarisk Coalition)在全州范围内调查所收集的矢量多边形数据集中提取柽柳的野外数据17.
注意:数据来自一次密集的实地调查,现场技术人员利用全球定位系统(GPS)和航拍照片,对阿肯色河沿岸的所有柽柳群落进行了测绘。 - 在这些多边形内生成 499 个随机点(即,存在性)来训练模型。对随机点施加两组约束条件:(1)每个点必须 > 距离多边形边缘30米,以确保在Landsat 5 TM分辨率下位于柽柳灌丛内部;(2)各点之间需相距至少60米,以确保研究区域内分布充分且减少空间自相关性。
- 在 Microsoft Excel 文件中将野外数据整理为三列,并标注列标题 "反应", "X",以及 "Y",其中响应值为 (1) 表示存在,UTM 东坐标表示 X,UTM 北坐标表示 Y。将此文件保存为 .csv 格式,供 SAHM 使用。野外数据 模块)
- 在中国台湾的Tamarisk Coalition的柽柳多边形内生成额外的100个随机点,另在多边形外生成100个随机点,作为独立测试数据以评估模型结果。将此文件保存为.csv格式,供SAHM使用野外数据 模块)
2. 预测变量
- 从美国地质调查局全球可视化查看器/地球探测器(http://earthexplorer.usgs.gov/)下载Landsat 5地表反射率L4-5 TM影像(Path 32,Row 34)。这些影像覆盖了科罗拉多柽柳联盟在2005年和2006年采样的区域17。为确定模型所用的月份,选择云量较少(即,云覆盖< 10%)且能代表柽柳物候特征可区分月份的影像;这些月份包括2004年10月、2005年4月、2005年5月、2005年6月、2005年7月、2005年9月、2006年4月、2006年5月、2006年6月、2006年7月、2006年8月、2006年9月和2006年11月。
- 从以下网址下载遥感指数推导工具:
https://github.com/rander38/Remote-Sensing-Indices-Derivation-Tool。 - 运行该工具中的Python脚本,可选择GDAL或Arcpy版本;推荐使用GDAL版本。
- 选择合适的卫星传感器、所需指数,并设置输入影像文件及输出文件夹(图1)。我们导出了各个波段,并使用从每景Landsat TM影像中提取的NDVI、SAVI以及缨帽变换的亮度、绿度和湿度指数。注意,通过修改Sensors_Formulas_RSIDT.ini文件,可对任意指数进行修改或添加。
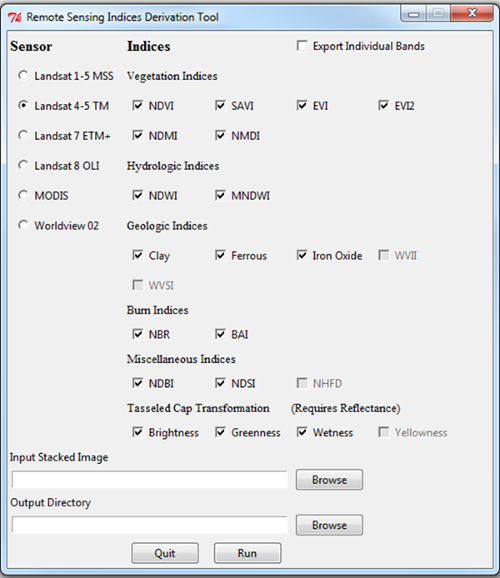
图1. 遥感指数推导工具图形用户界面。
- 运行该工具,并在 ArcMap v. 10.0(ESRI,美国加利福尼亚州雷德兰兹)或其他地理信息系统软件中目视验证输出文件。
3. 辅助生境建模软件(SAHM)(图2)
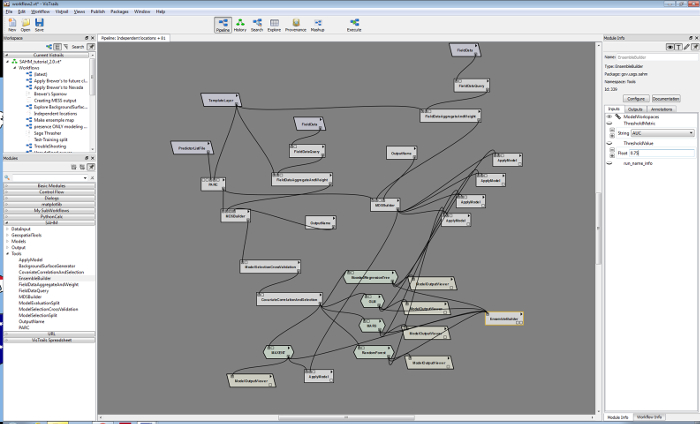
图2. 整个SAHM工作流程包括输入数据、预处理、初步模型分析与决策、相关性模型以及输出程序。
- 运行 SAHM 之前,首先从美国地质调查局网站 https://my.usgs.gov/catalog/RAM/SAHM 下载相关文件(包括 VisTrails)。有关 SAHM 的下载与安装详细说明,请参考该网站提供的用户指南。请注意,该网站还提供 SAHM 教程及数据,以供进一步指导。
- 为了建立柽柳物种分布模型,使用 SAHM_tutorial_2.0.vt 随软件包下载附带的文件(位于SAHM示例文件夹中)。在 历史 查看,选择 独立位置 工作流程。其他工作流程示例可根据研究目标进行选择;每个示例均附有相应说明。选择 管道.
- 设置输出文件夹,方法是进入 Packages,然后 SAHM > 更改会话文件夹在工作流程开发过程中,通过选择各步骤和选项可查看详细的说明。 文档记录 位于 SAHM 查看器屏幕右侧的标签。以下方法中列出的所有模块均可在 SAHM 窗口左侧找到 SAHM 表。
- 接下来,将SAHM指向用于训练物种分布模型的野外数据。
- 点击 模板层 模块。浏览并选择将用作掩膜的栅格数据,以定义分析的投影、像元大小和范围。
- 点击 野外数据 工作流程左侧的模块。浏览至 .csv(即,field data 模块中的野外数据(存在点或存在与缺失点)的 training.csv 文件。
- 点击 预测因子列表文件 模块并浏览至 .csv 文件列表(例如,包含模型中使用的所有预测变量完整路径的文件——参见用户指南。
- 接下来,进行预处理步骤。
- 点击 FieldDataQuery 模块并在响应列中填写响应的列标题(即字段数据.csv 中的列名)、X 列和 Y 列。
- 点击 MDSBuilder 模块将 backgroundPointField 设置为 10,000。
注意:如果您使用的是目标物种的存在与缺失数据,则无需更改 backgroundPointField;您应将这些位置及其响应值(0)包含在 Field Data.csv 文件中。设置一个 背景概率表面 如果希望将背景点的选择范围限制在某个区域内,可通过指向一个像元值范围为0到100的栅格表面来实现(这些值表示当随机生成的点落入某一特定像元时被保留的概率)。在本研究中,使用一个 背景概率表面 在距阿肯色河5,000米缓冲区内的区域取值为100,缓冲区外区域取值为0(依据柽柳联盟采样的总面积)。
- 接下来,确定将要使用的物种分布模型算法。
- 请注意 提升回归树, 广义线性模型, MARS,以及 随机森林 模块已在独立位置工作流程中设置好。添加 MAXENT 将模块添加到工作流中以测试全部五个模型。将其连接至 协变量相关性与选择 模块
注意:所有模型均从默认设置开始;可根据研究目标进行修改(详见模型文档)。 - 添加一个 模型输出查看器 模块并将其连接到 MAXENT 模块;将列更改为 5,行更改为 1。 模型输出查看器 生成一个可用于模型结果比较的电子表格。
- 点击 输出名称 模块并输入子文件夹名称。
- 请注意 提升回归树, 广义线性模型, MARS,以及 随机森林 模块已在独立位置工作流程中设置好。添加 MAXENT 将模块添加到工作流中以测试全部五个模型。将其连接至 协变量相关性与选择 模块
- 接下来,添加一个模块以生成模型输出的集成结果。该模块生成两幅输出图:一幅为所有包含输出结果的平均连续概率图,另一幅为具有正向二元概率的模型数量计数图。
- 添加一个 EnsembleBuilder 模块添加到工作流中。设置阈值度量是可选的;本研究中选择AUC,并将阈值保留默认值0.75。这将确保仅包含AUC值大于或等于0.75的模型进入集成图输出。连接 提升回归树, 广义线性模型, MARS, 随机森林, 和 MAXENT 模块到 EnsembleBuilder.
- 接下来,将模型应用于独立测试数据。
- 点击另一个 实地数据 模块(工作流程右侧)并浏览至包含模型验证数据的 .csv 文件。这些数据为 PROTOCOL 第 1.4 步骤中生成的 200 个存在与缺失点。
- 点击 FieldDataQuery 模块,并确保响应变量、x 和 y 列与野外数据 .csv 文件中的列相对应。
- 添加一个 ApplyModel 模块并将其连接到 MAXENT 模块。添加一个 ModelOutputViewer 模块并将其连接到该 ApplyModel 模块;将列更改为 5,行更改为 1。在菜单中选择 包装 -> SAHM -> 更改处理模式. 由于您希望运行多个模型,请选择 单个模型依次运行(每个模型使用 n - 1 个核心)这将通过利用多核计算机的并行计算能力来加快模型的执行速度。
- 接下来,执行物种分布模型。
- 保存 .vt 文件,然后单击 执行.
- 当 协变量相关性与筛选 小工具图3) 出现时,对于相关系数为 |r| ≥ 0.7 的每一对相关变量,取消选择其中的一个变量(基于 % 偏差解释度 来自该控件左侧所示的单变量广义可加模型(图3)并为生态决策提供科学依据;本研究优先选择每月至少一个协变量,以捕捉柽柳的物候变化。 绘图数量 在查看窗口中,可通过输入数字(默认值为 8)并点击 更新.
- 完成协变量筛选后,点击协变量相关性与筛选小部件底部的“OK”按钮图3)。本研究保留了以下9个变量:July_30_2006_Brightness、June_09_2005_SAVI、Sept_16_2006_SAVI、May_24_2005_B4、Oct_28_2004_NDVI、April_22_2005_Brightness、April_09_2006_SAVI、Aug_31_2006_B4 和 Nov_19_2006_SAVI。选择“OK”后,物种分布模型将开始运行。
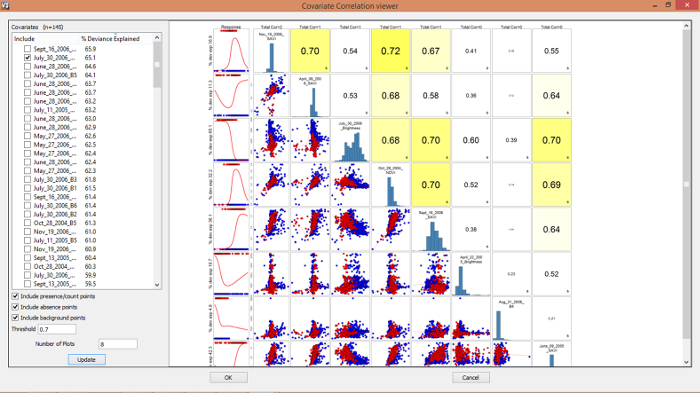
图3. 协变量相关性分析与SAHM界面变量选择
- 结果输出。
注意:模型运行完成后,将出现 VisTrails Spreadsheet 界面用于模型比较(图4)- 比较各模型的 AUC 曲线图、文本输出结果、响应曲线、校准图、混淆矩阵、残差图以及响应曲线。
注意:SAHM 模型的输出包括协变量相关性输出图(CovariateCorrelationOutputMDS)、混淆矩阵、残差图、校准图、模型评估图、变量重要性图、一个响应曲线文件夹、一个扩展输出文件夹,以及二值图(bin map)、消息图(mess map)、模式不确定性图(MoD map)、概率图(prob map)、残差图(residual map)和一个 output.txt 文件;更多详细说明请参见 SAHM 用户指南。
- 比较各模型的 AUC 曲线图、文本输出结果、响应曲线、校准图、混淆矩阵、残差图以及响应曲线。
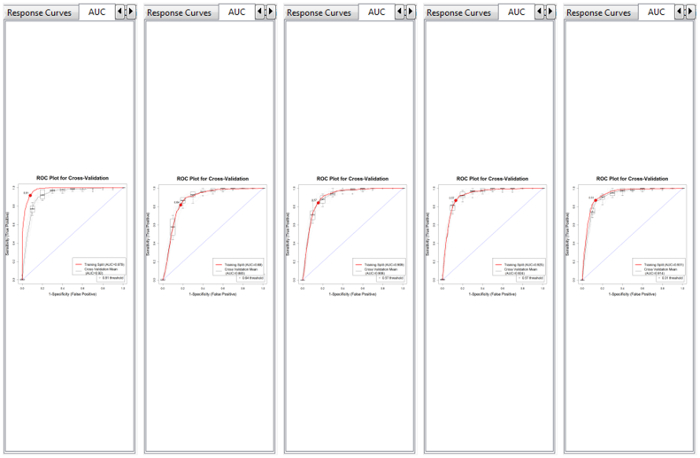
图4. VisTrails 电子表格可用于评估模型输出。此图为训练数据的 AUC 模型比较结果;从左至右分别为 BRT、GLM、MARS、RF 和 Maxent 模型。
结果
基于独立测试数据集对BRT、RF、MARS、GLM和Maxent模型的统计评估结果表明,这五种模型在柽柳检测方面均表现出较好的性能;各模型在阈值无关和阈值依赖的评估指标之间差异较小。AUC值为 > 0.88,正确分类的百分比值为 > 77%,敏感性和特异性分别为 > 0.77,且TSS为 > 0.54 (表1)一组二元模型输出结果显示出在阿肯色河流域区域具有较高的模型一致性 (图5)每个模型输出的MESS(多变量环境相似性表面)图表明,研究区域的可用环境得到了充分采样 (图6),进一步增强了我们对集成方法的信心。
| 模型 | AUC | PCC | 敏感性 | 特异性 | TSS |
| BRT | 0.91 | 85 | 0.85 | 0.85 | 0.70 |
| RF | 0.92 | 85 | 0.85 | 0.85 | 0.70 |
| MARS | 0.90 | 82 | 0.82 | 0.82 | 0.64 |
| GLM | 0.88 | 77 | 0.77 | 0.77 | 0.54 |
| Maxent | 0.92 | 84 | 0.83 | 0.84 | 0.67 |
表1. 基于柽柳分布 presence 和 absence 独立测试数据集拟合的BRT、RF、MARS、GLM和Maxent模型的阈值无关(AUC)和阈值依赖(PCC、敏感性、特异性及TSS)评估指标。
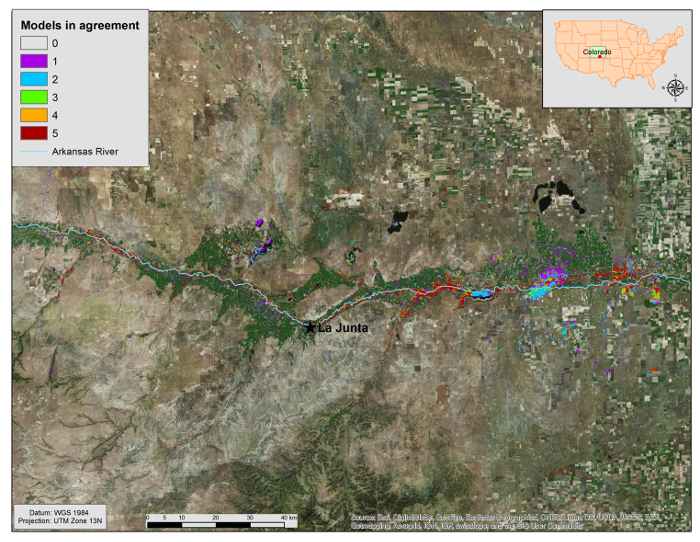
图5. 在ArcGIS中整合BRT、GLM、MARS、RF和Maxent二值输出图的集成结果。区域颜色表示一致预测的模型数量,范围从0(无颜色)到5(红色)。请注意预测图西北角的着色区域;该线条是Landsat影像的伪影,因此该区域的模型结果应谨慎使用。请点击此处查看此图的放大版本。
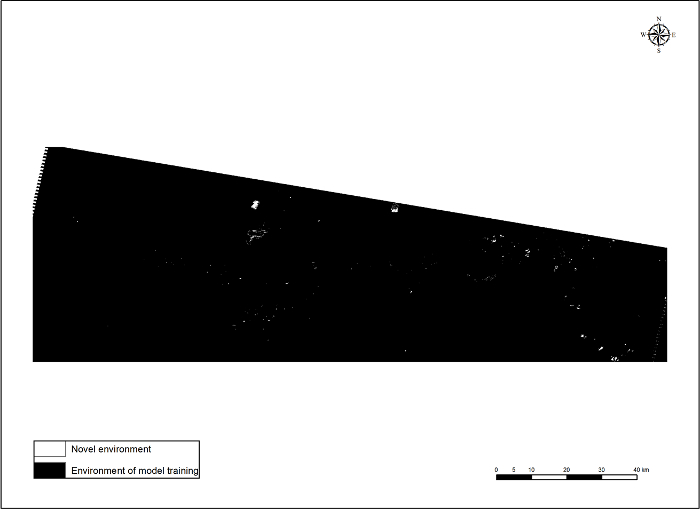
图6. 多变量环境相似性表面(MESS)输出结果。 请点击此处查看此图的放大版本。
在所使用的九个预测因子中,2006年6月30日的亮度是对全部五个模型而言最重要的变量 (表2). 这是基于逐步Akaike信息准则(AIC;在SAHM中这是GLM模型选择的默认方法)被GLM保留的唯一变量,但需要注意的是,该模型还包含了此变量的平方项。RF和Maxent默认保留所有变量。
| 预测因子 | BRT | RF | MARS | GLM | Maxent |
| 2006年7月30日 亮度 | 41.60 | 34.11 | 76.78 | 100 | 67.27 |
| 2006年8月31日 第4波段 | 6.35 | 5.87 | 5.16 | 0 | 2.82 |
| 2005年6月9日 SAVI | 13.67 | 14.09 | 9.14 | 0 | 9.75 |
| 2005年4月22日 亮度 | 6.29 | 6.30 | 0 | 0 | 0.43 |
| 2004年10月28日 NDVI | 5.66 | 8.25 | 0 | 0 | 2.94 |
表2. 各模型中预测因子的相对重要性。
讨论
我们的结果表明,利用柽柳的存在点位数据以及时间序列的 Landsat 遥感卫星影像数据,对 BRT、RF、MARS、GLM 和 Maxent 模型进行拟合,能够在景观尺度上有效区分柽柳分布,是传统单景分类方法的一种有效替代方案。从结果可以看出,在我们的研究区域内,6 月是检测柽柳尤为关键的时期;这与 Evangelista 等 20091 的研究一致,该研究基于 Landsat 影像时间序列拟合的 Maxent 模型指出,6 月湿润度是该地区柽柳分布最重要的预测因子。
BRT、RF、MARS 和 Maxent 模型中包含的其他光谱指数和波段可能进一步区分柽柳与土壤基质、其他落叶树种(包括杨树(Populus spp.)和柳树(Salix spp.))以及在阿肯色河下游流域常见的灌溉农业。其他地理信息系统(GIS)图层,例如地形、土壤类型或气候数据,也可作为协变量纳入这些模型,但我们建议,如果目标是检测物种在景观上的当前分布,而非预测其潜在发生范围或适宜生境,则应尽量减少此类变量的使用。
本研究测试的模型提供了强大的分析能力和多种评估结果的选项。将所有这些相关模型整合于单一框架(如 SAHM)中,有助于对建模过程进行规范化和可操作的记录。SAHM 对响应变量和预测变量的预处理与后处理进行了标准化,从而实现更优且高效的模型比较,同时工作流程记录了分析的每一步骤,便于修改、迭代和重复验证。
集成制图旨在结合多种相关模型的优势,同时尽量减少任一模型的弱点30。我们认为本研究中正是如此;然而,我们提醒,表现不佳的模型(即,预测不足或预测过度)可能会削弱整体结果。尽管文献中集成制图的应用尚有限,但已取得较为理想的效果,但这些方法大多致力于"预测"物种分布,而非"检测"。此外,集成制图可对不同建模方法之间的不确定性进行可视化评估,识别模型间的一致性水平。通常情况下,建模方法的选择(例如,GLM 与 BRT)对模型结果的影响最为显著,其可量化影响往往超过建模过程中其他决策(如位置数据的不确定性)31。尽管我们认为五种模型均一致的区域最能准确反映柽柳的分布,但仍建议进一步测试并采用多种集成制图方法(例如,按 AUC 加权)32,并通过独立的野外观测进行最佳验证。总之,这些方法可轻松调整,用于在 SAHM 中基于特定研究区域的环境变量建模其他物种的分布。
披露
作者没有相互竞争的经济利益或利益冲突。
致谢
作者谨此感谢美国地质调查局、科罗拉多州立大学自然资源生态实验室、科罗拉多州林业局以及柽柳联盟在后勤支持、数据提供、设施使用和专业技术方面给予的帮助。此外,我们感谢Shelly Simmons、Lane Carter、John Moore和Chandra Reed为本研究做出的贡献。Thomas J. Stohlgren的部分工作得到了落基山生物能源联盟(BANR)、美国农业部紫外线-B监测与研究计划以及美国农业部CSREES/NRI 2008-35615-04666项目的支持。文中所提及的任何贸易、产品或公司名称仅用于描述性目的,并不意味着美国政府对此表示认可。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 地球探测器 | USGS | http://earthexplorer.usgs.gov | 开放获取:是 |
| 遥感指数推导工具 | github | https://github.com/rander38/Remote-Sensing-Indices-Derivation-Tool | 开放获取:是 |
| 辅助生境建模软件 | USGS | https://my.usgs.gov/catalog/RAM/SAHM | 开放获取:否 |
| ArcGIS v.10.3 | Esri | https://www.arcgis.com/features/ | 开放获取:否 |
参考文献
- Evangelista, P. H., Stohlgren, T. J., Morisette, J. T., Kumar, S. Mapping invasive tamarisk (Tamarix): a comparison of single-scene and time-series analyses of remotely sensed data. Remote Sensing. 1, 519-533 (2009).
- DiTomaso, J. M. Impact, biology, and ecology of saltcedar (Tamarix spp.) in the southwestern United States. Weed Technology. 12, 326-336 (1998).
- Evangelista, P., Kumar, S., Stohlgren, T., Crall, A., Newman, G. Modeling above-ground biomass of Tamarisk ramosissima in the Arkansas River Basin of Southeastern Colorado, USA. Western North American Naturalist. 67 (4), 503-509 (2007).
- Hirano, A., Madden, M., Welch, R. Hyperspectral image data for mapping wetland vegetation. Wetlands. 23 (2), 436-448 (2003).
- Ge, S., Carruthers, R., Gong, P., Herrera, A. Texture analysis for mapping Tamarix pariviflora using aerial photographs along Cache Creek, California. Environmental Monitoring and Assessment. 114, 65-83 (2006).
- Hamada, Y., Stow, D. A., Coulter, L. L., Jafolla, J. C., Hendricks, L. W. Detecting tamarisk species (Tamarisk spp.) in riparian habitats of Southern California using high spatial resolution hyperspectral imagery. Remote Sensing of Environment. 109, 237-248 (2007).
- York, P., Evangelista, P., Kumar, S., Graham, J., Flather, C., Stohlgren, T. A Habitat Overlap Analysis derived from Maxent for Tamarisk and the Southwestern Willow Flycatcher. Frontiers of Earth Science. 5 (2), 120-129 (2011).
- Myneni, R. B., Ramakrishna, R., Nemani, R., Running, S. W. Estimation of global leaf area index and absorbed par using radiative transfer models. Geoscience and Remote Sensing. 35 (6), 1380-1393 (1997).
- Todd, S. W., Hoffer, R. M., Milchunas, D. G. Biomass estimation on grazed and ungrazed rangelands using spectral indices. International Journal of Remote Sensing. 19 (3), 427-438 (1998).
- Rouse, J. W., Haas, R. H., Schell, J. A., Deering, D. W. Monitoring vegetation systems in the Great Plains with ERTS. Proceedings of the Third Earth Resources Technology Satellite-1 Symposium. , (1974).
- Huete, A. R. A Soil-Adjusted Vegetation Index (SAVI). Remote Sensing of Environment. 25, 295-309 (1988).
- Kauth, R. J., Thomas, G. S. The tasselled cap - a graphic description of the spectral-temporal development of agricultural crops as seen in Landsat. Proceedings of the Symposium on Machine Processing of Remotely Sensed Data. , LARS, Purdue University. West Lafayette, Indiana. 41-51 (1976).
- Cohen, W. B., Spies, T. A., Fiorella, M. Estimating the age and structure of forests in a multi-ownership landscape of western Oregon, USA. International Journal of Remote Sensing. 16, 721-746 (1995).
- Jin, S., Sader, S. Comparison of time series tasselled cap wetness and the normalized difference moisture index in detecting forest disturbances. Remote Sensing of Environment. 94 (3), 364-372 (2005).
- Crist, E. P. A TM Tasseled Cap equivalent transformation for reflectance factor data. Remote Sensing of Environment. 17 (3), 301-306 (1985).
- Lindauer, I. E. A comparison of the plant communities of the South Platte and Arkansas River drainages in eastern Colorado. The Southwestern Naturalist. 28 (3), 249-259 (1983).
- Riparian Restoration: Assessment of alternative technologies for tamarisk control, biomass reduction and revegetation. , Tamarisk Coalition. Available from: http://www.tamariskcoalition.org (2008).
- Guisan, A., Zimmerman, N. Predictive habitat distribution models in ecology. Ecological Modeling. 135, 147-186 (2000).
- Friedman, J. H., Hastie, T., Tibshirani, R. Additive logistic regression: a statistical view of boosting. Annals of Statistics. 28 (2), 337-407 (2000).
- Breiman, L. Random forests. Machine Learning. 45 (1), 5-32 (2001).
- Friedman, J. H. Multivariate adaptive regression splines. Annals of Statistics. 19 (1), 1-141 (1991).
- McCullagh, P., Nelder, J. A. Generalized Linear Models, 2nd ed. , Chapman and Hall. London. (1989).
- Phillips, S. J., Anderson, R. P., Schapire, R. E. Maximum entropy modeling of species geographic distributions. Ecological Modelling. 190 (3-4), 231-259 (2006).
- Araujo, M. B., New, M. Ensemble forecasting of species distributions. Trends in Ecology and Evolution. 22, 42-47 (2007).
- Elith, J., Graham, C. H. Do they? How do they? Why do they differ? On finding reasons for differing performances of species distribution models. Ecography. 32, 66-77 (2009).
- Freire, J., Silva, C., Callahan, S., Santos, E., Schedegger, C. Managing rapidly-evolving scientific workflows. International Provenance and Annotation Workshop (IPAW). Moreau, L., Foster, I. , Springer. 10-18 (2006).
- Morisette, J. T., Jarnevich, C. S., Holcombe, T. R., Talbert, C. B., Ignizio, D., Talbert, M. K., et al. VisTrails SAHM: visualization and workflow management for species habitat modeling. Ecography. 36 (2), 129-135 (2013).
- Fielding, A. H., Bell, J. F. A review of methods for the assessment of prediction errors in conservation presence/absence models. Environmental Conservation. 24, 38-49 (1997).
- Allouche, O., Tsoar, A., Kadmon, R. Assessing the accuracy of species distribution models: prevalence, kappa and the true skill statistic (TSS). Journal of Applied Ecology. 43 (6), 1223-1232 (2006).
- Stohlgren, T. J., Ma, P., Kumar, S., Rocca, M., Morisette, J., Jarnevich, C. S. Ensemble habitat mapping of invasive plant species. Risk Analysis. 30, 224-235 (2010).
- Dormann, C. F., Purschke, O., Marquez, J. R. G., Lautenbach, S., Schrader, B. Components of uncertainty in species distribution analysis: A case study of the great grey shrike. Ecology. 89, 3371-3386 (2008).
- Marmion, M., Parviainen, M., Luoto, M., Heikkinen, R. K., Thuiller, W. Evaluation of consensus methods in predictive species distribution modelling. Diversity and Distributions. 15, 59-69 (2009).
重印与许可
