细胞衰老是慢性年龄相关性疾病发生的关键因素。靶向衰老细胞的治疗策略在延长健康寿命方面展现出广阔前景。本文介绍一种基于单细胞水平检测衰老相关β-半乳糖苷酶活性的新型筛选方法,用于鉴定senotherapeutics(抗衰老药物)。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
基于SA-β-半乳糖苷酶的筛选实验用于识别衰老细胞清除药物
* These authors contributed equally
本文内容
摘要
摘要
细胞衰老是已知会负面影响健康寿命的衰老标志之一。能够在细胞培养中特异性清除衰老细胞的药物被称为衰老细胞裂解剂(senolytics),其可降低体内衰老细胞的负荷并延长健康寿命。迄今为止,已发现多种类型的衰老细胞裂解剂,包括HSP90抑制剂、Bcl-2家族抑制剂、胡椒碱(piperlongumine)、FOXO4抑制肽以及达沙替尼与槲皮素的联合用药(Dasatinib/Quercetin)。在溶酶体pH升高的条件下检测SA-β-Gal活性,是目前表征最充分的衰老细胞检测标志物之一。利用荧光底物C12FDG对衰老相关β-半乳糖苷酶(SA-β-Gal)活性进行活细胞检测,并结合使用DNA嵌入染料Hoechst测定总细胞数量,使得研究人员能够筛选出具有抗衰老作用的药物:这类药物可通过清除衰老细胞从而降低整体SA-β-Gal活性(即衰老细胞裂解剂),或通过抑制SA-β-Gal及其他衰老细胞表型发挥作用(即衰老细胞表型调节剂,senomorphics)。采用高内涵荧光成像与分析平台,可实现对药物库在SA-β-Gal活性、细胞形态及细胞数量等方面效应的快速、高通量筛选。
引言
细胞衰老现象首次由 Leonard Hayflick 和 Paul Moorhead 描述,他们发现正常细胞在培养条件下增殖能力有限1。衰老细胞即使在营养物质、生长因子存在且无接触抑制的情况下也无法增殖,但仍保持代谢活性2。这一现象被称为复制性衰老,至少在人类细胞中主要归因于端粒缩短3。后续研究表明,细胞还可因其他刺激而进入衰老状态,例如癌基因应激(癌基因诱导的衰老,OIS)、DNA 损伤、细胞毒性药物或辐射(应激诱导的衰老,SIS)4,5,6。当发生DNA损伤(包括端粒损耗)时,若损伤无法修复,细胞可能进入衰老状态、启动不受控的细胞增殖,或发生凋亡。在此情况下,细胞衰老似乎具有益处,因其发挥肿瘤抑制作用2。相反,随着年龄增长,由于包括DNA损伤在内的细胞损伤不断累积,衰老细胞数量增加。由于衰老细胞能够分泌细胞因子、基质金属蛋白酶和生长因子,这种现象被称为衰老相关分泌表型(SASP),因此与年龄相关的细胞衰老及SASP的增加会导致组织稳态下降,进而促进衰老过程。此外,衰老负荷的年龄依赖性增加已被证实可诱导代谢性疾病、应激敏感性升高、早衰综合征以及愈合能力受损7,8,并在一定程度上导致多种与年龄相关的疾病,如动脉粥样硬化、骨关节炎、肌肉退化、溃疡形成和阿尔茨海默病9,10,11,12,13。清除衰老细胞有助于预防或延缓组织功能障碍,并延长健康寿命14。这一点已在转基因小鼠模型中得到验证14,15,16,同时也通过使用衰老细胞清除药物(senolytic drugs)及药物组合得以实现,这些药物是通过针对衰老细胞特异性激活通路的药物筛选和生物信息学分析而发现的17,18,19,20,21,22。发现更优的抗衰老治疗药物,以更有效地减轻衰老细胞负担,是开发健康衰老治疗策略的重要下一步。
衰老细胞在体外培养和体内均表现出特征性的表型和分子特征。这些衰老标志物可能是细胞衰老诱导的原因或结果,也可能是这些细胞中分子变化的副产物。然而,目前尚未发现仅特异性存在于衰老细胞中的单一标志物。目前,衰老相关β-半乳糖苷酶(SA-β-Gal)检测是体外和体内测定细胞衰老最明确且最成熟的一种基于单细胞的检测方法。SA-β-Gal是一种溶酶体水解酶,在pH 4时具有最佳酶活性。由于衰老细胞的溶酶体活性增强,因此可在pH 6条件下检测其活性23,24。对于活细胞,可通过使用液泡型H+-ATP酶抑制剂巴佛洛霉素A1(Bafilomycin A1)或内体酸化抑制剂氯喹(chloroquine)使溶酶体碱化,从而提高溶酶体的pH值25,26。5-十二烷酰氨基荧光素二-β-D-半乳糖吡喃糖苷(C12FDG)被用作活细胞中的底物,因其含有12个碳的亲脂性基团,可将酶切产物保留在细胞内25。重要的是,SA-β-Gal活性本身与已知的任何衰老细胞通路无直接关联,也不是诱导细胞衰老所必需的。通过该检测方法,即使在异质性细胞群体和衰老组织(如老年人的皮肤活检样本)中也能识别出衰老细胞。该方法已被用于证明细胞衰老与机体衰老之间的相关性23,因其在多种生物体和条件下均是检测衰老细胞的可靠标志物27,28,29,30。本文介绍了一种基于荧光底物C12FDG的高通量SA-β-Gal筛选实验,使用原代小鼠胚胎成纤维细胞(MEFs),并诱导其产生强烈的氧化应激以引发细胞衰老,同时讨论了该方法的优缺点。尽管该实验可用于多种不同类型的细胞,但使用DNA修复功能受损的Ercc1缺陷型MEFs可在氧化应激条件下更快地诱导细胞衰老。在小鼠中,DNA修复内切酶ERCC1-XPF表达降低会导致DNA修复功能受损、内源性DNA损伤加速积累、活性氧(ROS)水平升高、线粒体功能障碍、衰老细胞负荷增加、干细胞功能丧失以及早衰,这些特征与自然衰老过程相似31,32。同样,Ercc1缺陷型MEFs在体外培养中也更快进入衰老状态17。衰老MEF检测的一个重要特点是每个孔中均含有衰老与非衰老细胞的混合物,从而能够清晰展示衰老细胞特异性的效应。然而,尽管我们认为在原代细胞中利用氧化应激诱导衰老更具生理相关性,该检测方法也可用于其他细胞系,例如通过使用依托泊苷(etoposide)或辐射等DNA损伤剂诱导细胞衰老的实验体系。
访问受限。请登录或开始试用以查看此内容。
方案
动物实验已获得斯克里普斯佛罗里达分校机构动物护理和使用委员会的批准。
1. 小鼠胚胎成纤维细胞(MEF)衰老模型的制备——12-15天
- 分离野生型和 Ercc1-/- 如前所述,取自妊娠13天(E13)雌性小鼠的MEFs33.
注意:以下所有步骤均须在超净工作台中以无菌操作条件进行,并使用无菌器械。 - 在眼睛上方切除胚胎头部。
- 去除红色组织(心脏和肝脏),必要时用于基因分型。
- 配制 500 mL 含 10% 胎牛血清、1× 非必需氨基酸、青霉素和链霉素的 Dulbecco 改良 Eagle 培养基(DMEM)与 Ham’s F10 培养基 1:1 混合液作为生长培养基,并将其预热至 37 °C 每次使用前约15分钟取出,恢复至室温。将培养基储存在 4 °C.
- 将剩余的胚胎用0.25%胰蛋白酶/EDTA孵育10分钟。
- 将胚胎切碎成1 mm大小的组织块,并用移液器反复吹打组织数次。
- 加入10 mL培养基,将每枚胚胎的组织接种至直径10 cm的细胞培养皿中(每皿接种一枚胚胎组织)(第0代)。
- 在培养箱中培养细胞 37 °C,3% O₂2,5% CO₂2.
注意:在此条件下,仅有MEF细胞能够贴附于未包被的组织培养板。 - 在传代0代期间每天更换培养基,以去除未贴壁的组织和细胞碎片。
注意:根据胚胎的大小和分离质量,细胞通常在2至3天后达到汇合。 - 胰蛋白酶消化
- 小心吸去培养基,用 10 mL 1× PBS 洗涤细胞两次。
- 向直径10 cm培养皿中的细胞加入2 mL 0.025%胰蛋白酶/EDTA溶液,孵育于 37 °C 2-3 分钟。
- 在显微镜下观察细胞,确保细胞已从培养表面脱离。
- 通过加入等量的生长培养基终止胰蛋白酶消化。
- 将细胞转移至锥形管中,在200 x g条件下离心细胞 g 3 分钟后弃去上清液。
- 轻轻重悬细胞于新鲜培养基中,计数细胞,并按预期的细胞密度接种至新培养板中。
- 对于非衰老细胞的传代,将汇合的细胞按1:4比例分瓶,并在3% O₂条件下继续培养至下一次传代2, 37 °C 以获得更多细胞(传代1)。
注意:此时细胞可继续在培养体系中维持培养,也可分装至冻存管中,每管约含100万个细胞,于液氮中保存以备后续使用。此步骤还可将来自不同动物的细胞混合制备成一批细胞,以减少单个动物分析所带来的实验变异。 - 为诱导细胞衰老,将第1代细胞按1:4的比例接种于分裂后的汇合细胞中,并在20% O₂条件下培养。2, 37 °C,5% CO₂2 培养3天;这些培养条件的氧气环境为大气氧浓度。
注意:当DNA损伤修复功能受损时,在常氧浓度下培养细胞和胚泡会特异性升高细胞衰老标志物34,35,36. - 重复此步骤,再进行2次传代。
- 通过使用先进的库尔特细胞计数系统,在每次胰酶消化步骤中测量细胞直径和细胞体积的逐渐增加,以监测细胞衰老。
- 通过使用以下公式测定群体倍增数(PD),评估细胞增殖的减少程度
PDT = (t2- t1)/3.32 × (log n2 – log n1)
注意:群体倍增时间仅用于非衰老细胞。 - 使用早期传代的野生型或 Ercc1-/- 保持在3% O₂条件下的MEF细胞2, 37 °C,5% CO₂2 作为非衰老对照细胞。
2. 衰老相关β-半乳糖苷酶筛选实验——2-3天
- 将所有待测药物用DMSO配制成10 mM的储存液,并将分装样品储存于-80 °C。避免反复冻融储存液,以免降低药物活性。
注意:本实验中使用HSP90抑制剂17DMAG作为能够特异性杀伤衰老细胞的促衰老细胞清除药物17。 - 实验当天取出分装样品解冻,用新鲜培养基稀释药物,并以1:1的比例加入含有条件培养基的细胞中,以获得生长培养基中的终浓度。
- 使用96孔预稀释板进行系列稀释和药物组合实验。
注意:对于MEF细胞,经实验证实DMSO浓度不应超过2%,每次实验均应包括用最高DMSO浓度处理的非药物对照组细胞。 - 在处理前至少6小时,于96孔板中每孔接种5 × 10³个衰老细胞或3 × 10³个非衰老细胞,接种体积为100 µL生长培养基,并在20% O2、37 °C、5% CO2条件下培养。
注意:处理前细胞融合度应约为80%。 - 使用黑色壁/透明底的组织培养处理型96孔板,以最小化荧光信号串扰和背景干扰。
注意:然而,透明板也已被成功测试使用。 - 将药物稀释液加入MEF细胞中,在20% O2、37 °C、5% CO2条件下孵育24至48小时。
- 将非衰老细胞维持在3% O2、37 °C、5% CO2条件下。
- 为实现溶酶体碱化,配制10 mM巴佛洛霉素A1溶液,分装后于-20 °C保存。
- 为进行SA-β-半乳糖苷酶活性的荧光分析,配制2 mM C12FDG储存液,于-20 °C保存,并避光。
- 实验当天用生长培养基配制100 µM C12FDG工作液。
注意:所有涉及C12FDG的操作(包括孵育步骤)均应在避光条件下进行。 - 移除药物溶液,用100 µL 1× PBS洗涤细胞一次。
- 在20% O2、37 °C、5% CO2条件下,用90 µL用新鲜细胞培养基配制的100 nM巴佛洛霉素A1溶液预处理细胞1小时,以诱导溶酶体碱化。
- 向培养基中加入10 µL 100 µM C12FDG工作液(终浓度为10 µM)。
- 将细胞孵育2小时。
- 向培养基中加入2 µL 100 µg/mL的Hoechst 33342染料(终浓度为2 µg/mL),孵育20分钟。
- 移除培养基,加入100 µL新鲜生长培养基。
3. 定量高内涵荧光图像分析
- 使用高内涵荧光图像采集与分析平台,获取细胞在适合检测 Hoechst 和 C12FDG 荧光的两个通道中的荧光图像(例如,分别采用 DAPI 和 FITC 通道预设)。
注意:采集方案需要设定多个与实验相关的变量。采集方案的目的是获取足够数量的、处于焦平面内的荧光图像,并包含足够多的细胞,以供后续进行定量分析。 - 通过选择各个通道并调整一个或多个选择性标准,建立合适的分析方案,以定义每个通道中感兴趣特征的判定条件。
- 对于细胞核,使用现有的分割预设(例如,核分割、囊泡分割、胞质分割),基于形态、大小和信号强度等多个标准识别细胞器。调整这些标准以包含细胞核,同时排除可能具有信号但例如过大或过小而不属于细胞核的核碎片和碎片物质。
- 检查 FITC 通道中的信号,该信号来自裂解的 C12FDG,代表细胞中衰老相关 β-半乳糖苷酶的活性水平。
注意:衰老细胞的衰老相关 β-半乳糖苷酶活性高于非衰老细胞;然而,C12FDG 荧光信号是连续而非离散的,因此需要设定一个阈值,以区分 C12FDG 阳性细胞与 C12FDG 阴性细胞。 - 利用 commercially available analytical software(商用分析软件),统计围绕细胞核定义区域(假定为单个细胞)与高于阈值的 C12FDG 信号至少重叠一次的实例数量。
注意:分析软件通过目标关联功能自动完成计数。此即本实验对衰老、C12FDG 阳性细胞的实际定义。
- 对所有样品进行三次重复实验,每孔检测 3–5 个视野,并据此计算平均值和标准差。
- 使用以下公式计算衰老细胞的百分比:
衰老细胞 (%) =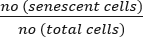 × 100
4. 检测方法验证参数
- 针对所有样本,使用以下公式计算批内和批间变异系数(%CV):
批内变异系数(n = 10,同一次实验中重复测量10次)= × 100 (%)
批间变异系数(n = 5,5次独立实验)= × 100 (%) - 用于筛选目的时,测定Z’值——一种用于评估实验质量的统计参数,数据来源于在20% O2、37 °C、5% CO2条件下经200 nM雷帕霉素处理24小时的细胞(作为senotherapeutic药物的阳性对照)以及未经处理的衰老细胞(阴性对照)。
注:Z’值的计算方法依据Zhang等人的文献37。Z’值介于0.5至1之间时,表明该实验适用于药物筛选。
访问受限。请登录或开始试用以查看此内容。
结果
SA-β-半乳糖苷酶活性可在多种因素诱导下发生衰老的细胞中被检测到,这些因素包括复制性耗竭、基因毒性与氧化应激以及癌基因激活23,25,38。在当前使用Ercc1缺陷型小鼠胚胎成纤维细胞的模型中,常氧培养条件(20% O2)在经过数次传代后足以诱导细胞衰老。野生型MEF细胞也会发生衰老,但在20% O2条件下需要更多的传代次数。图1展示了筛选实验的工作流程,从分离Ercc1缺陷型小鼠胚胎的原代MEF细胞开始,经氧化应激诱导细胞衰老,最终利用高内涵荧光显微镜分析所获得的显微图像数据。图2展示了MEF细胞培养的代表性图像,包括非衰老(年轻)细胞(图2
访问受限。请登录或开始试用以查看此内容。
讨论
SA-β-Gal 是一种明确的细胞衰老生物标志物,最初由 Dimri et al.(1995)发现,研究表明,在 pH 6 条件下检测时,衰老的人成纤维细胞的 SA-β-Gal 活性较增殖细胞显著升高23。此后,针对不同类型细胞和组织的体外及体内 SA-β-Gal 检测方法已被建立25,39,40。本方案中描述的基于荧光的单细胞活细胞检测 SA-β-Gal 的方法,是筛选影响细胞衰老药物的优良初筛工具17。然而,尽管 SA-β-Gal 被认为是检测衰老细胞最便捷的标志物之一,仍需结合其他细胞衰老标志物作为确证性检测,以评估药物的抗衰老潜力40,这些标志物包括细胞周期调控蛋白 p16Ink4A 和 p2141、衰老相...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了美国国立卫生研究院(NIH)资助项目AG043376(项目2和核心A,PDR;项目1和核心B,LJN)和AG056278(项目3和核心A,PDR;项目2,LJN)以及Glenn基金会资助项目(LJN)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMEM | Corning | 10-013-CV | 培养基 |
| Ham's F10 | Gibco | 12390-035 | 培养基 |
| 胎牛血清 | 组织培养生物制品公司 | 101 | 血清 |
| 1× 非必需氨基酸 | Corning | 25-025-Cl | 氨基酸 |
| bafilomycin A1 | Sigma | B1793 | 溶酶体抑制剂 |
| C12FDG | Setareh Biotech | 7188 | β-半乳糖苷酶底物 |
| Hoechst 33342 | Life Technologies | H1399 | DNA嵌插剂 |
| 17DMAG | Selleck Chemical LLC | 50843 | HSP90抑制剂 |
| InCell6000 细胞成像系统 | GE Healthcare | 高内涵成像系统 |
参考文献
- Hayflick, L., Moorhead, P. S. The serial cultivation of human diploid cell strains. Experimental Cell Research. 25, 585-621 (1961).
- Campisi, J., di Fagagna, F. D. Cellular senescence: when bad things happen to good cells. Nature Reviews Molecular Cell Biology. 8 (9), 729-740 (2007).
- Harley, C. B., Futcher, A. B., Greider, C. W. Telomeres shorten during ageing of human fibroblasts. Nature. 345 (6274), 458-460 (1990).
- Zhu, J., Woods, D., McMahon, M., Bishop, J. M. Senescence of human fibroblasts induced by oncogenic Raf. Genes and Development. 12 (19), 2997-3007 (1998).
- Dimri, G. P., Itahana, K., Acosta, M., Campisi, J. Regulation of a senescence checkpoint response by the E2F1 transcription factor and p14(ARF) tumor suppressor. Molecular and Cellular Biology. 20 (1), 273-285 (2000).
- Michaloglou, C., et al. BRAFE600-associated senescence-like cell cycle arrest of human naevi. Nature. 436 (7051), 720-724 (2005).
- Niedernhofer, L. J. Tissue-specific accelerated aging in nucleotide excision repair deficiency. Mechanisms of Ageing and Development. 129 (78), 408-415 (2008).
- Gitenay, D., et al. Glucose metabolism and hexosamine pathway regulate oncogene-induced senescence. Cell Death & Disease. 5, e1089(2014).
- Erusalimsky, J. D., Kurz, D. J. Cellular senescence in vivo: its relevance in ageing and cardiovascular disease. Experimental Gerontology. 40 (8-9), 634-642 (2005).
- Kassem, M., Marie, P. J. Senescence-associated intrinsic mechanisms of osteoblast dysfunctions. Aging Cell. 10 (2), 191-197 (2011).
- Campisi, J., Andersen, J. K., Kapahi, P., Melov, S. Cellular senescence: A link between cancer and age-related degenerative disease. Seminars in Cancer Biology. 21 (6), 354-359 (2011).
- Golde, T. E., Miller, V. M. Proteinopathy-induced neuronal senescence: a hypothesis for brain failure in Alzheimer's and other neurodegenerative diseases. Alzheimers Research & Therapy. 1 (2), 5(2009).
- Telgenhoff, D., Shroot, B. Cellular senescence mechanisms in chronic wound healing. Cell Death & Differentiation. 12 (7), 695-698 (2005).
- Baker, D. J., et al. Clearance of p16Ink4a-positive senescent cells delays ageing-associated disorders. Nature. 479 (7372), 232-236 (2011).
- Baker, D. J., et al. Naturally occurring p16-positive cells shorten healthy lifespan. Nature. , (2016).
- Childs, B. G., et al. Senescent intimal foam cells are deleterious at all stages of atherosclerosis. Science. 354 (6311), 472-477 (2016).
- Fuhrmann-Stroissnigg, H., et al. Identification of HSP90 inhibitors as a novel class of senolytics. Nature Communications. 8 (1), 422(2017).
- Zhu, Y., et al. New agents that target senescent cells: the flavone, fisetin, and the BCL-XL inhibitors, A1331852 and A1155463. Aging. 9 (3), Albany NY. 955-963 (2017).
- Zhu, Y., et al. Identification of a Novel Senolytic Agent, Navitoclax, Targeting the Bcl-2 Family of Anti-Apoptotic Factors. Aging Cell. , (2015).
- Zhu, Y., et al. The Achilles' heel of senescent cells: from transcriptome to senolytic drugs. Aging Cell. , (2015).
- Baar, M. P., et al. Targeted Apoptosis of Senescent Cells Restores Tissue Homeostasis in Response to Chemotoxicity and Aging. Cell. 169 (1), 132-147 (2017).
- Jeon, O. H., et al. Local clearance of senescent cells attenuates the development of post-traumatic osteoarthritis and creates a pro-regenerative environment. Nature. , (2017).
- Dimri, G. P., et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proceedings of the National Academy of Sciences USA. 92 (20), 9363-9367 (1995).
- Itahana, K., Campisi, J., Dimri, G. P. Methods to detect biomarkers of cellular senescence: the senescence-associated beta-galactosidase assay. Methods in Molecular Biology. 371, 21-31 (2007).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-[beta]gal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Cahu, J., Sola, B. A sensitive method to quantify senescent cancer cells. Journal of Visualized Experiments. 78 (78), (2013).
- Collado, M., et al. Tumour biology: Senescence in premalignant tumours. Nature. 436 (7051), 642(2005).
- Krishnamurthy, J., et al. Ink4a/Arf expression is a biomarker of aging. The Journal of Clinical Investigation. 114 (9), 1299-1307 (2004).
- Mishima, K., et al. Senescence-associated beta-galactosidase histochemistry for the primate eye. Investigative Ophthalmology, Visual Science. 40 (7), 1590-1593 (1999).
- Melk, A., et al. Expression of p16INK4a and other cell cycle regulator and senescence associated genes in aging human kidney. Kidney International. 65 (2), 510-520 (2004).
- Niedernhofer, L. J., et al. A new progeroid syndrome reveals that genotoxic stress suppresses the somatotroph axis. Nature. 444 (7122), 1038-1043 (2006).
- Wang, J., Clauson, C. L., Robbins, P. D., Niedernhofer, L. J., Wang, Y. The oxidative DNA lesions 8,5′-cyclopurines accumulate with aging in a tissue-specific manner. Aging Cell. 11 (4), 714-716 (2012).
- Jozefczuk, J., Drews, K., Adjaye, J. Preparation of mouse embryonic fibroblast cells suitable for culturing human embryonic and induced pluripotent stem cells. Journal of Visualized Experiments. (64), (2012).
- Jagannathan, L., Cuddapah, S., Costa, M. Oxidative stress under ambient and physiological oxygen tension in tissue culture. Current Pharmacology Reports. 2 (2), 64-72 (2016).
- Meuter, A., et al. Markers of cellular senescence are elevated in murine blastocysts cultured in vitro: molecular consequences of culture in atmospheric oxygen. J Assist Reprod Genet. 31 (10), 1259-1267 (2014).
- Robinson, A. R., et al. Spontaneous DNA damage to the nuclear genome promotes senescence, redox imbalance and aging. Redox Biology. 17, 259-273 (2018).
- Zhang, J. H., Chung, T. D., Oldenburg, K. R. A Simple Statistical Parameter for Use in Evaluation and Validation of High Throughput Screening Assays. Journal Of Biomolecular Screening. 4 (2), 67-73 (1999).
- Zhao, H., Darzynkiewicz, Z. Biomarkers of cell senescence assessed by imaging cytometry. Methods in Molecular Biology. 965, 83-92 (2013).
- Yang, N. -C., Hu, M. -L. A fluorimetric method using fluorescein di-β-d-galactopyranoside for quantifying the senescence-associated β-galactosidase activity in human foreskin fibroblast Hs68 cells. Analytical Biochemistry. 325 (2), 337-343 (2004).
- Zhao, J., et al. Quantitative Analysis of Cellular Senescence in Culture and In Vivo. Current Protocols in Cytometry. 79, (2017).
- Capparelli, C., et al. CDK inhibitors (p16/p19/p21) induce senescence and autophagy in cancer-associated fibroblasts, "fueling" tumor growth via paracrine interactions, without an increase in neo-angiogenesis. Cell Cycle. 11 (19), 3599-3610 (2012).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Pathology. 5, 99-118 (2010).
- Mah, L. J., El-Osta, A., Karagiannis, T. C. GammaH2AX as a molecular marker of aging and disease. Epigenetics. 5 (2), 129-136 (2010).
- Hewitt, G., et al. Telomeres are favoured targets of a persistent DNA damage response in ageing and stress-induced senescence. Nature Communications. 3, 708(2012).
- Narita, M., et al. Rb-mediated heterochromatin formation and silencing of E2F target genes during cellular senescence. Cell. 113 (6), 703-716 (2003).
- Georgakopoulou, E. A., et al. Specific lipofuscin staining as a novel biomarker to detect replicative and stress-induced senescence. A method applicable in cryo-preserved and archival tissues. Aging-Us. 5 (1), 37-50 (2013).
- Severino, J., Allen, R. G., Balin, S., Balin, A., Cristofalo, V. J. Is β-Galactosidase Staining a Marker of Senescence in Vitro and in Vivo? Experimental Cell Research. 257 (1), 162-171 (2000).
访问受限。请登录或开始试用以查看此内容。
重印与许可
