我们提出了一种利用CRISPR/Cas9和重组腺相关病毒6型对恒河猴原代B细胞进行培养和基因编辑的方法,用于B细胞治疗的研究。
本文内容
摘要
摘要
B细胞及其后代是高表达抗体的来源。它们具有高效的蛋白质表达能力,且数量丰富、易于获取 通过 外周血以及易于进行简单的过继转移,使B细胞成为基因编辑表达重组抗体或其他治疗性蛋白的理想靶标。对小鼠和人原代B细胞的基因编辑效率较高,且已有相应的小鼠模型 体内 研究表明具有潜力,但迄今为止,尚无证据证实其在较大动物模型中的可行性和可扩展性。因此,我们开发了一种用于编辑食蟹猴原代B细胞的实验方案 体外 以支持此类研究。我们报告了相关实验条件 体外 利用CRISPR/Cas9技术从外周血单个核细胞或脾细胞中培养并进行基因编辑的恒河猴原代B细胞。实现大片段的靶向整合<4.5 kb)表达盒,本研究包含了一种快速高效的方案,利用四环素可调控的自沉默腺病毒辅助载体,制备重组腺相关病毒6型作为同源定向修复模板。这些方案使得在恒河猴中开展潜在B细胞治疗药物的研究成为可能。
引言
B细胞是体液免疫的基础。在同源抗原和第二信号的激活下,初始B细胞可分化为生发中心B细胞、记忆B细胞和浆细胞1。其中浆细胞是目前大多数可用疫苗所诱导的保护性抗体的来源2。浆细胞被称为“抗体工厂”,因其可向血清中大量分泌抗体——约2 ng/天/细胞3,总量可达7–16 g/L血清,使抗体成为血清中含量最丰富的三种蛋白质之一4。B细胞在血液中含量丰富,因此易于获取并可回输给个体。
这些特性使得B细胞成为细胞治疗的研究靶点,可通过基因编辑B细胞受体(BCR)并表达针对人类免疫缺陷病毒(HIV)5,6,7,8,9,10,11,12,13,14,15以及其他蛋白16,17,18,19,20,21的广谱中和抗体(bNAbs)。此类方法在多种小鼠的体内研究中已显示出潜力in vivo7,8,10,11,16,22。然而,要实现临床转化仍需克服若干障碍9,15,23,其中包括治疗效果的安全性、持续时间、强度,以及向非人灵长类动物(NHPs)等更大体型动物的扩展。事实上,非人灵长类动物,尤其是猕猴,在抗体和HIV研究中具有长期的应用历史24,25,是测试这些参数最合适的模型。
本文中,我们开发了可解决上述问题的实验方案。迄今为止,极少有研究尝试对恒河猴B细胞进行离体(ex vivo)培养 ,且仅有关于使用CD20进行阳性筛选以纯化恒河猴B细胞的报道26,27,28。我们建立了一种通过负向耗竭其他细胞类型来分离未受触动的恒河猴B细胞的方案。此外,我们明确了针对恒河猴B细胞进行基因编辑的培养条件。本方案阐述了使用CRISPR/Cas9核糖核蛋白复合物(RNPs)以及重组腺相关病毒6型(rAAV6)作为同源定向修复模板(HDRT),对培养的恒河猴B细胞进行基因编辑的方法。采用 该方案,可实现高达40%的编辑效率,并成功插入较大片段(约1.5 kb)。我们还提供了一种快速且经济高效的方法,利用四环素诱导的自沉默腺病毒辅助系统29生产rAAV6,从而能够快速测试此类形式的HDRT。综合而言,这些方案描述了一个高效的恒河猴B细胞基因编辑工作流程(图1),为在非人灵长类动物(NHP)模型中评估B细胞疗法提供了可能。
实验开始时,供体材料可从商业渠道订购,或通过静脉采血或脾切除术获得。本研究中,静脉采血和血液采集按照先前所述方法进行30,使用抗凝剂EDTA。为获取脾源性恒河猴原代B细胞,采用此前报道的技术实施部分(25%-50%)或全脾切除术31。动物在手术前需禁食过夜。简言之,手术过程中,腹部剃毛后交替使用氯己定和70%异丙醇擦拭消毒三次。在腹部做一5-10 cm切口,以识别并分离脾脏。脾脏血管使用缝线或血管夹结扎。切口以4-0 PDS聚二氧杂环己酮缝线分两层缝合关闭。每只动物仅进行一次脾切除术。通过细胞筛研磨恒河猴脾组织制备单细胞悬液。利用密度梯度离心法从血液和脾细胞悬液中分离单个核细胞,并储存于液氮中。
方案
所有动物操作和实验均按照美国国家过敏和传染病研究所(NIAID)机构动物护理和使用委员会批准的方案进行。以下方案的摘要见图1。来自印度遗传背景、年龄为2至8岁的雄性和雌性恒河猴(Macaca mulatta)在生物安全二级设施中饲养和管理,遵循“实验动物护理和使用委员会”的相关指南。
警告:所有实验均按照血液传播病原体的通用预防措施进行 病原体,需在超净工作台中采用无菌/无菌操作技术,并配备适当的生物安全二级设备。
1. rAAV6 的制备
- 准备用于rAAV6生产的试剂。
- 在 pAAV 载体中 AAV2 的反向末端重复序列(ITRs)之间,使用标准技术设计并克隆同源定向修复模板。确保同源臂在两侧至少约为 250 bp,尽管短至 60 bp 也可能足够,但如果载体设计允许,优先使用较长的同源臂。若所用 sgRNA 的任何靶序列存在于 HDRT 中,应通过沉默突变将其去除,此类突变在原间隔序列邻近基序或靶位点的种子区域最为有效。
注意:基因合成与Gibson组装相结合可实现高效克隆32 可以进行操作。为转染准备一个正确克隆的质粒大提。对于sgRNA设计,使用CHOPCHOP33 建议使用,并可在以下位置找到更多工具列表: https://zlab.bio/guide-design-resourcesAAV 的最大包装容量(包括 ITRs)约为 4.7 kb。AAV6 是编辑造血细胞(尤其是 B 细胞)最常用的血清型。9其他AAV血清型尚未用于食蟹猴B细胞的基因编辑,但AAV28 和 AAV-DJ10,11 已用于小鼠研究。 - 根据以下步骤配制293AAV培养基和生产培养基 表1 和 表 2经0.2 µm聚醚砜(PES)膜滤器无菌过滤。4 °C保存。
- 配制1x聚乙烯亚胺(PEI)溶液(1 mg/mL,100 mL)。
- 在250 mL玻璃烧杯中,加热约70 mL H2在微波炉中加热约30秒,然后加入100 mg PEI。放入磁力搅拌子,搅拌至PEI基本溶解。
- 用 1 M HCl 将 pH 调至 7,然后用 H₂O 定容至 100 mL2O,等待10分钟,再次检查pH值,必要时进行调节。
- 使用0.2 µm PES膜滤器对PEI溶液进行无菌过滤,分装后于−20 °C保存。解冻后,溶液可在4 °C保存长达2个月。
- 制备5倍浓度的聚乙二醇(PEG)/氯化钠(NaCl)溶液。
- 称取 400 g PEG 8,000 和 24 g NaCl。
- 将磁力搅拌器放入2 L玻璃烧杯中,加入称量好的PEG 8,000和NaCl,并用约550 mL去离子水冲洗。
- 加热搅拌,直至完全溶解,煮沸或升温至80–90 °C。
- 用 1 M NaOH 将 pH 调至约 7.4,然后用量筒定容至 1 L,并转移至含磁力搅拌子的 2 L 玻璃瓶中。
- 将瓶子、磁力搅拌器和溶液在121 °C的水浴中高压灭菌30分钟。
- 高压灭菌后,在冷室中使用磁力搅拌器持续搅拌以冷却溶液,防止其分离成不同相。必要时分装,并于4 °C保存。
- 配制配方缓冲液。
- 将500 mL DPBS与50 µL 10% Pluronic F-68混合。使用0.2 µm PES膜滤器无菌过滤,室温(RT)保存。
- 在 pAAV 载体中 AAV2 的反向末端重复序列(ITRs)之间,使用标准技术设计并克隆同源定向修复模板。确保同源臂在两侧至少约为 250 bp,尽管短至 60 bp 也可能足够,但如果载体设计允许,优先使用较长的同源臂。若所用 sgRNA 的任何靶序列存在于 HDRT 中,应通过沉默突变将其去除,此类突变在原间隔序列邻近基序或靶位点的种子区域最为有效。
- 用于rAAV6生产的细胞培养、转染与转导
- 按照制造商说明,使用上述293AAV培养基和胰蛋白酶-EDTA消化液对293AAV细胞进行复苏、培养和冻存。建议冻存部分早期代次的细胞,并在细胞代次未超过40代时用于AAV的生产。
- 对于rAAV6的生产,用5 × 10⁶个细胞接种四个15 cm细胞培养皿6 细胞接种于各30 mL培养液中。通常在接种后1-2天,当细胞融合度达到80%-90%时,即可进行转染。
- 解冻含有待包装至 AAV6 的 HDRT 的 pAAV 质粒大提物。将 85.6 µg pAAV 质粒重悬于 3 mL 纯 DMEM 培养基中。
- 将342 µL浓度为1 mg/mL的PEI溶液溶解于3 mL纯DMEM培养基中。将两种溶液在室温下孵育10分钟。
- 将两个3 mL离心管中的液体混入一个约6.4 mL的转染混合液管中,室温孵育20分钟。
- 同时,将含有四环素诱导的自沉默辅助载体 RepCap6 从 −80 °C 冰箱中取出,置于 37 °C 水浴中解冻。转导 293AAV 细胞时,以半数组织培养感染剂量(TCID₅₀)为基准,按感染复数(MOI)为 25 的比例加入辅助载体50)并假设为 1.15 × 10⁷ 细胞/培养皿;通常每个15 cm培养皿使用2–10 µL。轻轻摇晃并旋转培养皿以均匀分布。
- 孵育转染混合物后,将1.6 mL混合物逐滴加入四个15 cm培养皿中,每皿加1.6 mL。于37 °C、5% CO₂条件下孵育2 过夜。
注意:或者,如果目标 rAAV6 载体已具备,可直接使用这些载体提供待包装的病毒基因组,从而无需在此系统中使用任何质粒,且可获得相当的 rAAV6 滴度。采用该方法时,将 293AAV 细胞与目标 rAAV6(基于 rAAV6 基因组拷贝数 [GC]/mL,MOI 为 50)和辅助载体共同转导。 - 次日,小心吸除并弃去培养基,加入30 mL预热的生产培养基。继续培养96小时后收获。为最大化产量,不建议再更换培养基。
- 从培养基中收获与纯化重组 AAV6
- 在不从培养皿中移除细胞的情况下,将所有细胞上清液收集至滤器装置中,滤器需配备聚醚砜(PES)膜,孔径0.2 µm,且滤膜面积至少比待过滤培养基体积大50%。随后过滤上清液。
注意:如果希望获得更高的rAAV6产量,可收集细胞,并使用商业试剂盒或已建立的实验方案从细胞沉淀中提取rAAV34,35由于AAV6主要分泌到培养基中36仅使用上清液,减少了劳动强度、成本和时间。 - 向过滤后的上清液中加入占收集体积25%的5× PEG/NaCl溶液;若使用四个15 cm培养皿,每个加入30 mL,则通常为30 mL。
- 充分颠倒混匀,然后于 4 °C 过夜孵育以沉淀病毒颗粒。
注意:AAV 颗粒在此溶液中可稳定保存长达 2 天。 - 将带有250 mL管插件的水平转子离心机预冷至4 °C。准备一个截留分子量为100 kDa的4 mL离心过滤装置和一个0.22 µm亲水性聚醚砜(PES)注射器滤器,分别用2 mL 10% Pluronic F-68在室温下预处理膜至少1 h。
- 将 AAV-PEG/NaCl 混合物转移至 250 mL 离心管中,于 2,500 x g 4 °C下孵育1小时,然后小心吸去全部上清液。
- 将米色至白色的病毒沉淀物在4 mL 1 M HEPES中涡旋振荡,直至完全重悬。如有必要,静置5分钟,再次涡旋振荡。使用5 mL血清移液管重悬,并将全部体积转移至15 mL离心管中。
- 在通风橱中,向病毒悬液中加入等体积的氯仿,通常为 4 mL。
- 剧烈涡旋振荡2分钟,然后在室温下以1,000 × g离心5分钟。
- 收集上层(含AAV的上清液)至新的50 mL离心管中,弃去下层(氯仿)。
警告:含氯仿的溶液属于危险废物。请遵循机构规定进行处置。 - 将含有 AAV 的上清液置于通风橱中,让剩余的氯仿挥发 30 分钟。
- 同时,清洗预处理过的离心过滤装置和注射器滤器。
- 向预处理的离心过滤装置中加入 1.5 mL 配方缓冲液。在 3,500 x g 在15 °C下,以摆桶转子离心10分钟。用4 mL配制缓冲液重复此步骤,以洗涤膜。
- 用5 mL注射器,以5 mL制剂缓冲液将注射器滤器冲洗两次。
- 将氯仿抽提所得的约 4 mL 含 AAV 上清液装入 5 mL 注射器,连接已清洗的注射器滤器,直接过滤至离心过滤装置中。
- 3,500 x 离心 g 在15 °C下离心25分钟,然后确认滤器中的AAV溶液体积约为50–100 µL。如果溶液的体积是 >100 µL,继续离心。
- 去除滤液后,向离心过滤装置的滤杯中加入 4 mL 配方缓冲液,用移液器吹打混匀溶液。在 3,500 x g 在15 °C下离心25分钟,然后确认滤器中的AAV溶液体积在50–100 µL之间。如果溶液的体积是 >100 µL,继续离心。重复此步骤进行另一次洗涤。
- 最后一次离心后,确认溶液体积为50–70 µL;若不足,继续离心。将制备物转移至1.5 mL离心管中。如需分装,可进行分装,并于−80 °C保存。
- 在不从培养皿中移除细胞的情况下,将所有细胞上清液收集至滤器装置中,滤器需配备聚醚砜(PES)膜,孔径0.2 µm,且滤膜面积至少比待过滤培养基体积大50%。随后过滤上清液。
- 通过qPCR测定重组AAV6滴度
注意:qPCR 引物结合于 ITR 区域,因此应适用于所有克隆至 pAAV 的构建体。- 解冻一份待测定滴度的 rAAV6 样品和一份 AAV6 参考品。AAV6 参考品的浓度应接近 4 x 10¹¹ GC/mL;否则,相应调整稀释倍数。
- 用2.0 µL样品或AAV6参考物质与15.6 µL无核酸酶的H2O混合,加入2.0 µL DNase I,进行DNase I消化,以去除rAAV6制备物中残留的游离质粒DNA2O、2.0 µL 10x DNase I 缓冲液和 0.4 µL DNase I。
- 轻轻混匀,在 37 °C 下孵育 30 分钟,然后转移至冰上。此为稀释液 1(见 表3).
- 将所有样品和AAV6参考物质进行五倍系列稀释,步骤同前 表3 用水冲洗下方。
- 配制SYBR Green qPCR预混液。每孔加入4.7 µL无核酸酶水、10 µL SYBR Green预混液、0.15 µL 100 µM ITR正向引物和0.15 µL 100 µM ITR反向引物,混匀。
注意:每个样本设两个复孔,参考标准品设16个孔,每个样本8个孔,无模板对照设2个孔。为弥补移液误差,配制时主混合液应多准备10%。 - 在光学96孔或384孔反应板中,每孔加入15 µL的SYBR Green qPCR预混液。
- 接下来,加载5 µL的样品以及AAV6参考物质,或在无模板对照中加入无核酸酶水。对于AAV6参考标准品,加载稀释度2至稀释度9;对于样品,加载稀释度5至稀释度8。每个稀释度重复测定两次。避免产生气泡。
- 用光学透明膜密封加样后的孔板,在800 × g条件下离心 g 室温孵育1分钟,将酶标板装入qPCR仪,并设置相应的96孔或384孔反应程序。
- 使用 SYBR 检测法设置并运行 qPCR 仪,循环条件如下:98 °C 预变性 3 min,然后进行 40 个循环(98 °C 变性 15 s,58 °C 退火延伸 30 s),最后进行熔解曲线分析。
- 使用仪器配套软件,以每毫米基因组拷贝数(GC/mL)为单位的AAV6参考物质浓度作为标准曲线进行数据分析(参见 表3)。通过乘以稀释倍数来计算样品的最终浓度。
- 确保标准曲线 R2 接近1.0,PCR扩增效率为90%–110%,基线已扣除,熔解曲线显示单一峰,Ct 数值随稀释度变化,且重复样本间的差异在0.5 C以内t;否则,剔除异常值。产量预期如 图2.
2. 准备B细胞培养基和刺激物
- 配制解冻培养基:将 RPMI-1640 与 20% FCS 混合,使用 0.2 µm PES 膜滤器进行无菌过滤,4 °C 保存。
- 配制 B 细胞培养基:按 表 4 中的试剂配制,然后使用 0.2 µm PES 膜滤器进行无菌过滤,4 °C 保存。
- 将 表 5 中列出的每种 B 细胞刺激剂用 B 细胞培养基重悬至储存浓度,CpG ODN 除外,其应使用无核酸酶水重悬。−80 °C 保存。
- 若进行非 B 细胞阴性去除非必需步骤(可选步骤 4),配制含 2% FCS 的 DPBS(不含钙、镁)(DPBS 2% FCS),使用 0.2 µm PES 膜滤器进行无菌过滤,4 °C 保存。
3. 恒河猴B细胞的制备与培养
注意:使用冻存的恒河猴外周血单个核细胞(PBMCs)或脾细胞建立细胞培养30,31。
- 将解冻培养基和B细胞培养基在37 °C水浴中预热。将表5中的B细胞刺激剂在冰上解冻。
- 准备一个合适大小的离心管,加入预热的解冻培养基。其体积应至少为解冻后细胞体积的10倍以上。
- 每次在37 °C水浴中解冻一至两支冻存管的PBMC或脾细胞,并将其倒入装有预热培养基的离心管中。冲洗冻存管以回收全部细胞。
- 在室温下以200 × g离心10分钟。
注意:该离心条件可在保留PBMC得率的同时减少血小板污染。也可使用更高的转速,例如350 × g离心5分钟。 - 用10 mL解冻培养基重悬细胞以进行洗涤。
- 重复步骤3.4和步骤3.5,共进行三次离心以彻底去除冻存液。最后一次离心后,将细胞重悬于B细胞培养基中,浓度约为5 × 10⁶ 个细胞/mL。
注意:上述方案培养的是含有其他细胞污染的完整PBMC或脾细胞制备物。若需要更纯的B细胞培养(尽管总B细胞得率显著降低),请继续进行步骤4。两种方法在编辑效率上未观察到差异。 - 根据需要,用B细胞培养基稀释10 µL细胞样品用于计数。使用血细胞计数板和台盼蓝染色进行计数,将重悬的细胞与0.4%台盼蓝溶液等体积混合。
- 根据细胞计数结果,用B细胞培养基将细胞浓度调整至3 × 10⁶ 个细胞/mL。然后根据表5加入B细胞刺激剂至其终浓度,并混匀。
- 将细胞转移至合适的细胞培养皿中。总体推荐密度为0.6 × 10⁶–0.7 × 10⁶ 个细胞/cm2。在37 °C、5% CO2条件下孵育48小时±2小时。
4. 非B细胞的可选阴性去除非必需步骤
注意:产量和纯度取决于外周血单个核细胞(PBMC)中B细胞的输入比例,而该比例在不同个体的恒河猴之间可能存在显著差异27。从1 × 10⁷个PBMC中,预期可获得80%–95%的纯度、60%的回收效率以及1 × 10⁶–1.5 × 10⁶个细胞。
- 最后一次洗涤后(步骤 3.6),用含 2% FCS 和 1:200 稀释的人源 Fc 阻断剂的 DPBS 重悬细胞,细胞浓度为 1 × 10⁸ 个细胞/mL。细胞计数依据冻存后复苏的细胞数量。
- 冰上孵育 15 分钟以阻断 Fc 受体,然后加入表 6中的生物素标记抗体,再于冰上孵育 20 分钟。
- 用 DPBS 2% FCS 补充管内液体体积,于 4 °C 下以 200 × g 离心 10 分钟。
- 将细胞重悬于 DPBS 2% FCS 中,体积为步骤 4.1 中体积的 80%(即每 1 × 10⁷ 个细胞加入 80 µL)。
- 向细胞悬液中加入磁珠偶联的链霉亲和素,加入体积为步骤 4.1 中体积的 20%(即每 1 × 10⁷ 个细胞加入 20 µL 磁珠)。
- 冰上孵育 15 分钟,期间偶尔轻轻振荡。
- 同时,每 1 × 10⁸ 个细胞,准备一个配备大容量磁性去除非目标细胞柱和预分离滤器的磁力分选装置。通过重力流用 2 mL DPBS 2% FCS 冲洗预分离滤器和分选柱,弃去流出液。安装一个 15 mL 收集管。
注意:使用其他类型的分选柱(如阳性分选柱)或其他磁珠纯化系统可能会显著降低纯度。 - 孵育结束后,若体积 <0.5 mL,则用 DPBS 2% FCS 补充至 0.5 mL;若体积 ≥0.5 mL,则直接进行下一步。
- 将细胞悬液加载至已准备好的分选柱上的预分离滤器中,收集流出液至 15 mL 管中。
- 通过向预分离滤器中加入 1 mL DPBS 2% FCS,两次洗脱未结合的富集 B 细胞。利用重力流将未结合的细胞收集至同一收集管中。
注意:额外洗脱可能略微提高得率。可通过流式细胞术检测上样细胞、富集细胞以及滞留在分选柱上的细胞来评估纯度和分选效率。如需获取滞留在柱上的细胞,可将分选柱从磁架上取下,使用提供的推杆冲洗 3 mL DPBS 2% FCS。如有需要,可使用表 7中的试剂,参照图 3的方法通过流式细胞术评估纯度。 - 于 4 °C 下以 200 × g 离心 10 分钟,收集富集的 B 细胞。
- 将细胞重悬于 B 细胞培养基中,浓度约为 5 × 10⁶ 个细胞/mL,并继续进行步骤 3.7。
5. 恒河猴原代B细胞基因编辑
- 在激活恒河猴B细胞48小时±2小时后,准备电穿孔和转导所需的试剂。
- 将电穿孔试剂盒中的DMSO、无核酸酶双链缓冲液、缓冲液T以及缓冲液E(10 µL电穿孔试剂盒)或E2(100 µL电穿孔试剂盒)预热至室温。
- 解冻 rAAV6 HDRT 和 B 细胞刺激剂 表5 置于冰上。
- 将CRISPR-Cas9 sgRNA用双链缓冲液重悬至100 µM浓度。室温下孵育10分钟以完成复性,通过涡旋和轻弹管壁混匀。复性后的sgRNA置于冰上保存并尽快使用。长期储存请置于−80 °C。
注意:CRISPR-Cas9 sgRNA 可通过多种在线工具进行设计(参见 1.1.1),其切割效率可能存在显著差异。建议通过 TIDE 等检测方法对切割效率进行实证测试37 或 ICE38. - 每10 µL电穿孔,准备550 µL含表5中所有刺激物的B细胞培养基,并加入1% DMSO。对于100 µL电穿孔,按10倍比例放大体积。可选地,可将该培养基的10%配制时不加抗生素-抗真菌剂,以略微提高转染后的细胞存活率。
- 每10 µL电穿孔反应,准备一个48孔细胞培养板的孔,加入50 µL含刺激物但不含抗生素-抗真菌剂的B细胞培养基(若使用该培养基)。对于100 µL电穿孔反应,将500 µL培养基移入6孔板的孔中。
- 向孔中培养基添加 rAAV6 HDRT,体积最多为孔内培养基体积的 20%。目标 MOI 范围为 1 × 10⁵-1 × 10⁶ 根据每次转染的细胞数量(10 µL 电穿孔:5 x 10⁵ 细胞;100 µL 电穿孔:5 x 10⁶ 细胞)以及rAAV6制备物中的GC含量。rAAV6储存液的高浓度可达5 x 10¹³ GC/mL 至 5 × 10¹⁴ 建议使用 GC/mL 以在低体积下实现高 MOI。
注意:较低的MOI可能导致编辑效率降低,而MOI为5 x 10⁵ 通常接近我们所观察到的最大编辑效率。不同MOI对B细胞活力的影响尚未观察到。建议设置不含rAAV6 HDRT、不含RNP转染以及两者均不含的对照组。 - 将已准备好的培养皿和剩余培养基转移至37 °C、5% CO₂的培养箱中预热2.
- 每10 µL电穿孔反应,准备1.15 µL核糖核蛋白(RNP):将0.4 µL的61 µM Cas9与0.75 µL的100 µM sgRNA在双链缓冲液中混合。考虑到移液误差以及加样至电穿孔枪头时避免产生气泡,建议额外多准备30%的量。若使用100 µL枪头,则按10倍比例放大配制。
- 室温孵育RNP至少15分钟后再与细胞混合。孵育完成后,若需同时靶向多个位点,可将多个RNP混合。同时靶向最多三个位点时,未观察到效率有显著差异。
- 同时,准备进行电穿孔的细胞。全程将细胞保持在室温,以避免温度冲击。培养 48 小时 ± 2 小时后,将细胞收集至适当的容器中。用 DPBS 冲洗培养皿,以收集尽可能多的细胞。
- 以 200 x g 离心细胞 g 室温孵育10分钟。弃去上清液,将细胞重悬于DPBS中,浓度约为2 × 10⁶ cells/mL
- 将10 µL 0.4%台盼蓝溶液与10 µL细胞悬液混合,用血细胞计数板进行计数。
注意:由于收获和洗涤过程中的损失,此时细胞数量约为48小时±2小时前接种培养时的60%。 - 同时,以 200 x g 室温孵育10分钟。弃去上清液,注意尽量减少残留的DPBS。将细胞重悬于预温(室温)的缓冲液T中,浓度为5.55 × 10⁷ 细胞/mL,基于上述细胞计数。
- 将仪器开启并设置为1,350 V、15 ms、1次脉冲,以建立转染系统。将移液工作站置于超净工作台内
- 每进行10次电穿孔实验,准备一支含有3 mL缓冲液E(用于10 µL转染)或E2(用于100 µL转染)的转染管。将该管插入移液工作站。
- 每10 µL电穿孔体系,将1.15 µL RNP与9 µL细胞混合。确保总体积充足(增加30%),以避免吸入空气至电穿孔尖端。电穿孔前于室温孵育1–2分钟。
- 吸取10 µL或100 µL RNP与细胞混合物至适当规格的电穿孔枪头中,将装有样品的枪头插入电穿孔仪的枪头座,启动电穿孔程序。确保枪头内无任何气泡,以防止产生电弧。电穿孔过程中需密切观察,确认未发生电弧现象。
- 立即将电穿孔后的细胞吹入已准备好的、预热的少量培养基中,培养基可含或不含rAAV6,置于48孔板(10 µL转染)或6孔板(100 µL转染)内。对剩余样品重复步骤5.15–5.17。向培养孔中加入未转染的对照样品。
- 在 37 °C、5% CO₂ 条件下培养细胞2 孵育4小时±2小时,然后加入已配制并预热的含刺激剂、DMSO及抗生素/抗真菌剂的B细胞培养基:10 µL转染体系加450 µL,100 µL转染体系加4.5 mL。
- 继续在37 °C、5% CO₂条件下孵育2 孵育12-24小时。若需延长培养,更换为含有刺激因子和抗生素/抗真菌剂但不含DMSO的B细胞培养基。基因组DNA分析可在24小时后进行。可使用数字滴定PCR,以外源同源臂外侧引物和插入片段内侧引物扩增,以定量编辑效率。39进行PCR扩增插入位点,并通过Sanger测序验证编辑的正确性。
- 为分析蛋白水平,在电穿孔后培养细胞40–48小时,以使蛋白表达发生改变,并使用以下试剂通过流式细胞术进行分析 表7.
结果
使用四环素诱导型自沉默腺病毒辅助系统生产rAAV6,平均可获得4 × 10¹⁰ GC/mL细胞培养液,产量比标准的无辅助病毒三质粒转染法高出30-40倍(图2)。
食蟹猴B细胞的可选纯化步骤可有效去除绝大多数CD3+ T细胞以及CD14+和/或CD16+髓系细胞,通常可获得纯度为80%–95%的CD20+ B细胞(图3)。基于我们此前在小鼠B细胞中的设计7,我们开发了一种方法,可在编辑食蟹猴B细胞B细胞受体特异性的同时,通过破坏内源性抗体轻链的恒定区实现轻链基因的等位排斥,从而在绝大多数B细胞中维持该特性。我们构建了一个无启动子的HDRT(同源定向修复模板),将其插入食蟹猴B细胞IGH基因座中最后一个IGHJ基因与Eµ增强子之间(图4)。该构建体利用成熟B细胞中天然重排的上游VDJ区域自身的VH启动子驱动表达,因此不会在游离型AAV基因组中表达。此外,该构建体需与下游抗体重链恒定区进行剪接,方可表达于细胞表面。因此,流式细胞术检测到的细胞表面特异性抗原结合信号表明靶位点的正确整合以及插入序列的功能性。
我们将编码抗体 Ab1485(一种源自恒河猴的抗 HIV 广谱中和抗体40)的构建体包装到 rAAV6 中,并用于编辑经活化的原代恒河猴脾细胞或外周血单个核细胞(PBMC)培养物,如上文所述(图 5A)。该方案在维持高细胞存活率(约 90%)的同时,可在约 80% 的 B 细胞中实现轻链表达的敲除。大部分 B 细胞仍表达 IgM 同种型(图 5B)。加入编码 Ab1485 HDRT 的 rAAV6 后,在 16%–21% 的 B 细胞中实现了基因编辑及 Ab1485 的表面表达(图 5A),但其抗体链的荧光强度低于未经编辑的 B 细胞(图 5A 右图,图 5C)。这可能是由于流式细胞术中用于检测表面 BCR 的抗原染色剂与单克隆抗体之间存在表位竞争,以及由于 HDRT 的多顺反子结构和剪接效率较低导致的实际蛋白表达量下降。添加 1% DMSO 并延长 rAAV6 HDRT 的高浓度孵育时间,通常可提高编辑效率(图 6A-C)。采用该特定方法,编辑效率通常为 5%–20%,最高可达 40%,具体数值取决于个体恒河猴(图 5A,图 6A-E)以及 rAAV6 HDRT 制剂批次的质量(图 6E)。总体而言,我们提供了高效的 rAAV6 生产方案,以及恒河猴 B 细胞的培养、纯化和基因编辑方法。
| 试剂 | 体积 | 储存浓度 | 终浓度 |
| DMEM, High Glucose | 500 mL | 1 x | ~ 88.5% |
| FCS, heat-inactivated | 50 mL | 1 x | ~ 8.85% |
| Antibiotic/Antimycotic | 5 mL | 100 x | 1 x |
| Glutamine | 5 mL | 200 mM | 2 mM |
| Sodium Pyruvate | 5 mL | 100 mM | 1 mM |
表1:293AAV细胞培养基。
| 试剂 | 体积 | 储存液浓度 | 终浓度 |
| DMEM, High Glucose | 500 mL | 1 x | ~ 95.2% |
| FCS, heat-inactivated | 10 mL | 1 x | ~ 1.9% |
| Antibiotic/Antimycotic | 5 mL | 100 x | 1 x |
| Glutamine | 5 mL | 200 mM | 2 mM |
| Sodium Pyruvate | 5 mL | 100 mM | 1 mM |
表2:293AAV细胞培养基成分。
| 稀释系列 | 样品体积(µL) | 稀释剂及体积 | 稀释倍数 | 总稀释倍数 | 参考 AAV6 |
| GC/mL | |||||
| 稀释 1 | 2 µL 样品或浓度为 4.1 x 10¹¹ GC/mL 的 AAV 参考标准品 | 18 µL DNAseI 缓冲液及酶 | 10 x | 10 x | 4.1 x 10¹⁰ |
| 稀释 2 | 15 µL 稀释液 1 | 60 µL H2O | 5 x | 50 x | 8.2 x 10⁹ |
| 稀释 3 | 20 µL 稀释液 2 | 80 µL H2O | 5 x | 250 x | 1.6 x 10⁹ |
| 稀释 4 | 20 µL 稀释液 3 | 80 µL H2O | 5 x | 1250 x | 3.3 x 10⁸ |
| 稀释 5 | 20 µL 稀释液 4 | 80 µL H2O | 5 x | 6250x | 6.6 x 10⁷ |
| 稀释 6 | 20 µL 稀释液 5 | 80 µL H2O | 5 x | 31250 x | 1.3 x 10⁷ |
| 稀释 7 | 20 µL 稀释液 6 | 80 µL H2O | 5 x | 156250 x | 2.6 x 10⁶ |
| 稀释 8 | 20 µL 稀释液 6 | 80 µL H2O | 5 x | 781250 x | 5.24 x 10⁵ |
| 稀释 9 | 20 µL 稀释液 7 | 80 µL H2O | 5 x | 3906250 x | 1.05 x 10⁵ |
表3:qPCR稀释表。
| 试剂 | 体积 | 储存液浓度 | 终浓度 |
| RPMI-1640 | 420 mL | 1 x | 84% |
| FCS,热灭活 | 50 mL | 1 x | 10% |
| 抗生素/抗真菌剂 | 5 mL | 100 x | 1 x |
| 谷氨酰胺 | 5 mL | 200 mM | 2 mM |
| 丙酮酸钠 | 5 mL | 100 mM | 1 mM |
| HEPES | 5 mL | 1 M | 10 mM |
| 2-巯基乙醇 | 550 µL | 55 mM | 55 µM |
| 非必需氨基酸 | 5 mL | 100 x | 1 x |
| 胰岛素-转铁蛋白-硒 | 5 mL | 100 x | 1 x |
表4:B细胞培养基。
| 试剂 | 稀释比例 | 储存浓度 | 终浓度 |
| MegaCD40L | 1:1000 | 100 µg/mL | 100 ng/mL |
| CpG ODN | 1:300 | 1 mg/mL | 3.33 µg/mL |
| 人 BAFF | 1:1000 | 40 µg/mL | 40 ng/mL |
| 人 IL-2 | 1:1000 | 50 µg/mL | 50 ng/mL |
| 人 IL-10 | 1:1000 | 50 µg/mL | 50 ng/mL |
表5:B细胞刺激剂。
| 抗体 | 克隆号 | 稀释倍数 | 终浓度 |
| anti-human CD3 | FN-18 | 1:40 | 2.5 µg/mL |
| anti-human CD8a | RPA-T8 | 1:200 | 2.5 µg/mL |
| anti-human CD14 | M5E2 | 1:200 | 2.5 µg/mL |
| anti-human CD16 | 3G8 | 1:200 | 2.5 µg/mL |
| anti-human CD33 | AC104.3E3 | 1:50 | 1 test |
| anti-human CD64 | 10.1 | 1:800 | 0.625 µg/mL |
| anti-human CD66 | TET2 | 1:11 | 1 test |
| anti-human CD89 | A59 | 1:800 | 0.625 µg/mL |
表6:用于选择性去除非B细胞的抗体。
| 试剂 | 类型/克隆号 | 工作稀释倍数/浓度 |
| anti-human CD14 AlexaFluor647 | M5E2 | 1:50 |
| anti-human CD16 AlexaFluor700 | 3G8 | 1:50 |
| anti-human CD20 PECy7 | 2H7 | 1:50 |
| anti-human CD3 PE | SP34-2 | 1:50 |
| Zombie-NIR | - | 1:500 |
| anti-human HLA-DR BV605 | L243 | 1:200 |
| anti-human Ig light chain lambda APC | MHL-38 | 1:50 |
| anti-human Kappa Light Chain FITC | polyclonal | 1:500 |
| anti-human IgM BV421 | MHM-88 | 1:50 |
| RC1 抗原,随机生物素标记 | - | 5 µg/mL |
| Streptavidin-PE | - | 1:500 |
表7:用于分析的流式细胞术试剂。

图 1:rAAV6 生产及恒河猴原代 B 细胞基因编辑的示意图。 本方案分为 rAAV6 生产(步骤 1)和恒河猴 B 细胞基因编辑(步骤 2–5),其中包含一个可选的非 B 细胞去除步骤(步骤 4)。各步骤以红色圆圈标注。 请点击此处查看该图的放大版本。

图 2:使用自沉默腺病毒辅助系统实现高产量 rAAV6 制备。 rAAV6 通过本方案所述方法(pAAV 转染 [TF] + 自沉默辅助质粒 RepCap6,自沉默腺病毒辅助系统)或传统的无辅助病毒三质粒共转染方法(pAAV、pHelper 和 pRepCap6 [pRC6])进行生产。rAAV6 仅从细胞上清液中纯化获得。如上所述,采用自沉默腺病毒辅助载体的方法通过 qPCR 检测,rAAV 滴度提高了 30–40 倍。每个数据点代表使用不同 pAAV 构建体进行的单次 rAAV 生产实验,数据来自 2 至 20 次独立实验。图中显示均值 ± 标准误(SEM)。请点击此处查看该图的放大版本。

图3:通过去除非B细胞实现B细胞富集。 采用所述方案从恒河猴外周血单个核细胞(PBMC)中富集B细胞,纯度达到90%。图中显示富集前的输入样本及富集后的输出样本。门控策略基于活的单细胞PBMC。结果代表五次独立实验。 请点击此处查看该图的放大版本。
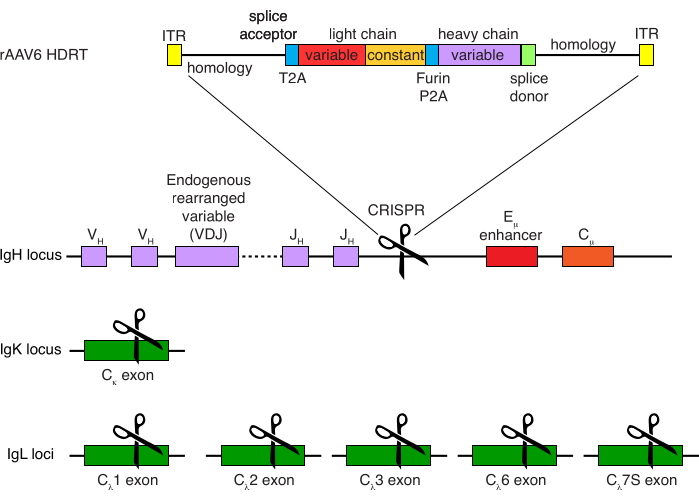
图 4:用于编辑恒河猴 B 细胞 B 细胞受体特异性的靶向策略。制备了包含图示同源定向修复模板(HDRT)的 rAAV6。该 HDRT 包含一个 266 bp 的 5' 同源臂,随后是 111 bp 的恒河猴 IGHM 外显子 1 剪接受体序列,接着是一个 GSG 连接肽和来自Thosea asigna病毒的自切割 2A 肽序列(T2A),之后是信号肽序列以及恒河猴抗体 Ab1485 的完整轻链,即恒河猴 IGLC1。其后是一个弗林蛋白酶切割位点、一个 GSG 连接肽,以及一个猪捷申病毒自切割 2A 肽序列(Furin-P2A),再后是另一个信号肽序列和 Ab1485 重链的可变区,随后是 52 bp 的恒河猴 IGHJ4 剪接供体序列,以实现与下游抗体重链恒定区的剪接,最后是一个 514 bp 的同源臂。该构建体通过靶向序列 GAGATGCCAGAGCAAACCAG 的 sgRNA,靶向插入到 IGH 位点中最后一个 IGHJ 基因与 Eµ 增强子之间的区域。两个同源臂均设计为在该 sgRNA 的切割位点终止,从而消除靶序列并实现最佳的整合效率。同时,为了维持等位基因排斥并确保单一 B 细胞受体的表达,我们使用靶向恒河猴 IGKC(靶序列 GGCGGGAAGATGAAGACAGA)以及 IGLC1、IGLC2、IGLC3、IGLC6 和 IGLC7S(靶序列 CTGATCAGTGACTTCTACCC)的 sgRNA 删除内源性轻链基因。HDRT 中引入了沉默突变,以防止该 sgRNA 对 IGLC1 序列进行切割。请点击此处查看该图的放大版本。
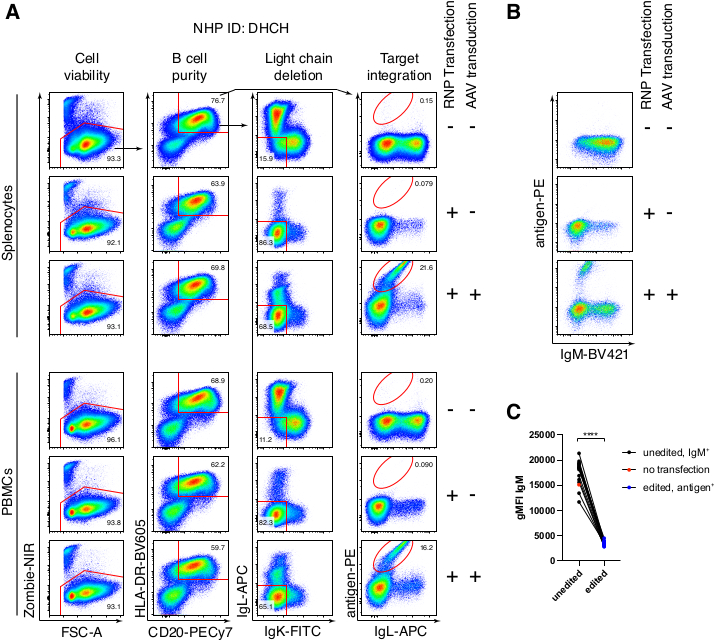
图5:恒河猴原代B细胞的基因编辑。 (A) 来自同一只恒河猴的初级脾细胞(上图)或外周血单个核细胞(下图)在未去除非B细胞的情况下进行培养,并按上述方法进行编辑。靶向策略如图所示 图4电穿孔后两天,收集细胞并进行表面染色,用于流式细胞术分析。左列以单细胞门控,其余各列则按首行所示进行门控。通过特异性抗原RC1染色,检测细胞活力、B细胞纯度、轻链删除效率以及Ab1485的敲入效率。41 在未经处理、RNP 转染或 RNP 转染联合 rAAV6 转导(MOI = 5 x 10)的样本中显示5)。结果代表六次独立实验,细胞来自不同的恒河猴。B) 恒河猴B细胞在培养条件下对照组或基因编辑后的IgM表达情况C) 未因靶向IgLC和IgKC而丢失Ig表达(未编辑)的B细胞,或结合预期抗原(已编辑)的B细胞上IgM的几何平均荧光强度(gMFI)。红点表示培养的未转染对照B细胞的gMFI。**** 表示 p < 0.0001,在配对 t 检验中。 请点击此处查看该图的放大版本。
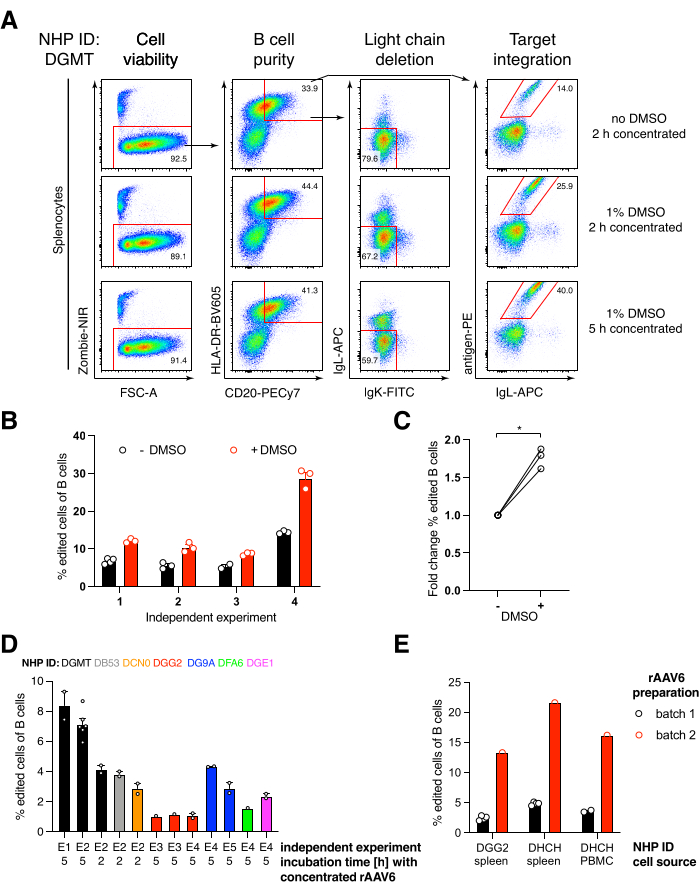
图6:DMSO、rAAV6 HDRT长时间浓缩孵育、rAAV批次质量以及不同供体非人灵长类动物(NHP)之间的可重复性对恒河猴原代B细胞基因编辑效率的影响。(A)脾细胞按前述方法进行培养和基因编辑。电穿孔后,将5 × 10⁵个细胞在含或不含1% DMSO的培养基中培养,并在50 µL含有rAAV6 HDRT的培养基中以MOI为5 × 10⁵的条件孵育2小时或5小时,随后加入另外450 µL培养基。电穿孔后第2天通过流式细胞术进行分析,方法同图5。该结果为四次独立实验的代表性数据。(B)对(A)中四次独立实验的量化结果。每个点代表技术重复,转染条件为1,350 V、10–20 ms、单次脉冲电穿孔,DMSO浓度范围为0.75%–1.25%。(C)来自(B)的编辑效率平均倍数变化。* p > 0.05(Mann-Whitney U检验)。(D)使用较低效率的商品化rAAV6批次,在不同恒河猴中进行独立实验所获得的编辑效率。(E)在同一实验中,将相同构建体包装至两种不同商品化批次的rAAV6中,用于两个不同非人灵长类动物(NHP)B细胞的基因编辑效率。每个点代表技术重复,转染条件为1,350 V、10–20 ms、单次脉冲电穿孔。请点击此处查看该图的放大版本。
讨论
本文所述方案提供了一种快速高效的方法,用于以高产量和高滴度生成作为高密度重组腺相关病毒6型(rAAV6)的HDRTs,并提供了高效基因编辑恒河猴原代B细胞的新方法 体外.
rAAV6 的生产方案相对简单且快速,能够在无需过度劳动的情况下同时进行多种不同构建体的生产和检测。如有需要,可在缓冲液置换和浓缩之前,采用已建立的方案(如碘克沙醇梯度超速离心法34或水相两相分离法35)对 rAAV6 进一步纯化。
尽管这会降低总体产量,但我们选择仅使用血清减量的细胞培养基进行rAAV6纯化,而非从细胞沉淀中纯化,因为大部分rAAV6会释放到培养基中36,且从细胞沉淀中纯化会增加更多成本和劳动投入。使用自失活腺病毒辅助系统使产量平均提高了30至40倍,从而能够在单个15 cm培养皿中测试包装入AAV6的构建体。尽管我们的纯化方法较为基础,但采用该方法后,在使用多种细胞系或其他原代细胞进行转导后,基因编辑效率或细胞活力的批次间差异相对较小(数据未显示)。
我们开发了一种恒河猴B细胞纯化方案,通过去除不需要的细胞群体,获得未经触动的原代B细胞。尽管基因编辑这些细胞时并非必须进行此步骤,但如果其他细胞类型可能干扰实验目标,则该方法可提供一种获得相对纯净的原代恒河猴B细胞群体的途径。然而,纯度的提高是以总体B细胞得率降低为代价的。值得注意的是,无论是富集还是未富集的B细胞培养体系,初始PBMC或脾细胞制备物中B细胞所占比例均至关重要。特别是对于PBMC而言,我们建议对不同个体的恒河猴进行筛选,选择外周血中B细胞比例较高的个体,以便在实验中获得较大量的B细胞,因为该数值在不同个体间可能存在显著差异27。PBMC可通过常规采血或白细胞单采术获得42。
基因编辑方案可实现高效的基因编辑,通常B细胞中基因敲除效率为60%-80%,基因敲入效率为5%-20%,但我们已达到最高90%的BCR基因敲除和40%的BCR基因敲入B细胞(图5 和 图6)。
高效编辑恒河猴B细胞的主要参数包括sgRNA的切割效率、电穿孔参数、感染复数(MOI)以及rAAV6制备物的质量。候选sgRNA的切割效率应通过实验经验确定,以实现最佳的编辑效果并优化同源定向修复模板(HDRT)的设计。本文所采用的电穿孔参数在编辑效率与细胞存活率之间取得平衡,旨在获得最大数量的编辑B细胞,而非追求最高的编辑细胞百分比。如果需要更高的编辑细胞比例,建议采用更高的电压(最高达1,750 V)或调整脉冲时长(10–30 ms),但可能会伴随更多的细胞死亡。我们还观察到,与同一个体外周血单个核细胞(PBMC)来源的B细胞相比,脾脏来源的B细胞具有略高的编辑效率(图5);然而,这一现象的内在机制目前尚不清楚。
我们发现,电穿孔后添加1% DMSO可使恒河猴B细胞的基因编辑效率显著提高约40%,且不影响细胞活力(图6A-C),这与其他细胞中的报道一致43。然而,应避免在1% DMSO中长期培养,因其可能影响细胞活力。如需要,DMSO也可完全省略。
电穿孔后将细胞与rAAV6在小体积培养基中共同培养数小时,可提高编辑效率,这可能是由于rAAV6对HDRT的转导效果更佳,从而在Cas9活性关键时期使细胞内HDRT浓度更高。我们发现,以这种方式培养细胞最长至8小时不会影响细胞活力,但编辑效率在超过5小时后并未显著提高(图6)。如果仅需实现基因敲除而非敲入,则可省略此步骤。
总之,我们提供了食蟹猴B细胞基因编辑的全面实验方案 体外 以及高效敲入目标载体所需的rAAV6 HDRT的制备。这些方案可实现将多种以rAAV6形式包装的载体进行快速、低成本的功能验证,并可在更具临床相关性的非人灵长类动物模型中开展B细胞治疗方案的可行性及可扩展性临床前评估。
致谢
我们感谢 Harry B. Gristick 和 Pamela Bjorkman 提供 RC1 抗原,并感谢 Nussenzweig 实验室和 Martin 实验室全体成员的深入讨论。本研究工作得到了比尔和梅琳达·盖茨基金会资助项目 INV-002777(资助给 M.C.N.)以及美国国家过敏与传染病研究所(National Institute of Allergy and Infectious Diseases)、美国国立卫生研究院(National Institutes of Health)院内研究计划(R.G. 和 M.A.M.)的支持。M.C.N. 是霍华德·休斯医学研究所(HHMI)研究员。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 无菌离心管,无 DNase、RNase 和嘌呤霉素 | Stellar Scientific | T17-125 | 或类似产品 |
| 10 mL 血清移液管,聚苯乙烯材质,无菌,无热原,无 DNase/RNase,无人类 DNA | Corning | 4488 | 或类似产品 |
| 15 cm 组织培养皿 | Falcon | 353025 | 或类似产品 |
| 15 mL 聚丙烯圆锥形离心管 | Falcon | 352097 | 或类似产品 |
| 25 mL 血清移液管,聚苯乙烯材质,无菌,无热原,无 DNase/RNase,无人类 DNA | Corning | 4489 | 或类似产品 |
| 250 mL 聚丙烯圆锥形离心管 | Corning | 430776 | 或类似产品 |
| 293AAV 细胞系 | Cell Biolabs | AAV-100 | |
| 2-巯基乙醇,55 mM(1000 倍浓缩液) | Gibco | 21985-023 | |
| 48 孔组织培养板 | Corning | 3548 | 或类似产品 |
| 5 mL 血清移液管,聚苯乙烯材质,无菌,无热原,无 DNase/RNase,无人类 DNA | Corning | 4487 | 或类似产品 |
| 5 mL 带鲁尔锁扣头的注射器 | BD | 309646 | 或类似产品 |
| 50 mL 聚丙烯圆锥形离心管 | Falcon | 352070 | 或类似产品 |
| 50 mL 血清移液管,聚苯乙烯材质,无菌,无热原,无 DNase/RNase,无人类 DNA | Corning | 4490 | 或类似产品 |
| 6 孔组织培养板 | Falcon | 353046 | 或类似产品 |
| AAV-6 包装系统(质粒) | Cell Biolabs | VPK-406 | |
| AAV6 参考材料(完整衣壳) | Charles River | RS-AAV6-FL | |
| Accu-jet S 移液控制器 | Brand | 26350 | 或类似的移液控制器 |
| 抗生素/抗真菌剂(100 倍浓缩液) | Gibco | 15260-062 | |
| 抗人 CD14 AlexaFluor647 | Biolegend | 301812 | |
| 抗人 CD14 生物素标记 | BioLegend | 301826 | |
| 抗人 CD16 AlexaFluor700 | BD Biosciences | 557920 | |
| 抗人 CD16 生物素标记 | BioLegend | 302004 | |
| 抗人 CD20 PECy7 | Biolegend | 302312 | |
| 抗人 CD3 生物素标记 | Thermo Fisher | APS0309 | |
| 抗人 CD3 PE 标记 | BD Biosciences | 552127 | |
| 抗人 CD33 生物素标记 | Miltenyi | 130-113-347 | |
| 抗人 CD64 生物素标记 | BioLegend | 305004 | |
| 抗人 CD66 生物素标记 | Miltenyi | 130-100-143 | |
| 抗人 CD89 生物素标记 | BioLegend | 354112 | |
| 抗人 CD8a 生物素标记 | BioLegend | 301004 | |
| 抗人 HLA-DR BV605 | Biolegend | 307640 | |
| 抗人免疫球蛋白轻链 λ 链 APC 标记 | Biolegend | 316610 | |
| 抗人 IgM BV421 | Biolegend | 314516 | |
| 抗人 κ 轻链 FITC 标记 | Fisher Scientific | A18854 | |
| 高压灭菌器 | Steris | Amsco Lab 250 | 或类似产品 |
| 细胞培养用 CO2 培养箱 | Fisher Scientific | 51026331 | 或类似产品 |
| 离心过滤单元(Amicon Ultra - 4,100 kDa) | Millipore | UFC810024 | |
| Centrifuge 5920 R | Eppendorf | EP022628188 | 或任何其他可制冷的摆桶式离心机,配备适用于 96 孔板、15 mL、50 mL 和 250 mL 离心管的转子 |
| 氯仿 | Fisher Scientific | C298SK-4 | |
| CpG ODN | Invivogen | tlrl-2395 | |
| 二甲基亚砜(DMSO) | Sigma-Aldrich | 34869-500ML | |
| DMEM,高糖 | Gibco | 11965092 | |
| DNaseI(无 RNase) | New England Biolabs | M0303L | |
| 不含钙、镁的 DPBS | Gibco | 14190144 | |
| 电穿孔试剂盒(Neon 转染系统 10 µL) | Fisher Scientific | MPK1096 | 或其他规格,或 100 µL 转染试剂盒 MPK 10096 |
| 电穿孔系统(Neon 转染系统) | Fisher Scientific | MPK5000 | |
| FCS | Hyclone | SH30910.03* | |
| Ficoll-PM400(Ficoll-Paque PLUS) | Cytiva | 17144002 | 或类似产品 |
| 通风橱 | Fisher Scientific | FH3943810244 | 或类似产品 |
| 谷氨酰胺 200 mM | Gibco | 25030-081 | |
| 1 L 量筒 | Corning | 3022-1L | 或类似产品 |
| 血细胞计数板 | Sigma-Aldrich | Z375357-1EA | 或类似产品 |
| HEPES 1 M | Gibco | 15630-080 | |
| HEPES 1 M | Gibco | 15630-080 | |
| 磁力搅拌加热板 | Fisher Scientific | SP88857200 | 或类似产品 |
| 人 BAFF | Peprotech | 310-13 | |
| 人 BD Fc 阻断剂 | BD | 564220 | |
| 人 IL-10 | Peprotech | 200-10 | |
| 人 IL-2 | Peprotech | 200-02 | |
| 盐酸 | Fisher Scientific | A144S-500 | |
| 亲水性聚醚砜注射器滤器(Supor 膜),无菌,0.2 µm,25 mm | Pall | 4612 | |
| 胰岛素-转铁蛋白-硒,100 倍浓缩液 | Gibco | 41400-045 | |
| ITR 正向引物:GGAACCCCTAGTGATGGAGTT | Integrated DNA Technologies | custom | |
| ITR 反向引物:CGGCCTCAGTGAGCGA | Integrated DNA Technologies | custom | |
| 层流生物安全柜 | The Baker Company | SG403A | 或类似产品 |
| 大型磁性去除非目标细胞柱(LD 柱) | Miltenyi Biotec | 130-042-901 | |
| 磁性分离器(MidiMACS 分离器及多支架) | Miltenyi Biotec | 130-090-329 | |
| 磁力搅拌子 | Fisher Scientific | 14-512-127 | 或类似产品 |
| 磁性链霉亲和素微珠(Streptavidin MicroBeads) | Miltenyi Biotec | 130-048-101 | |
| 质粒大提试剂盒 | Machery-Nagel | 740414.5 | 或类似产品 |
| 2 L 带盖培养基瓶 | Cole-Parmer | UX-34514-26 | 或类似产品 |
| MegaCD40L | Enzo | ALX-522-110-C010 | |
| MicroAmp 384 孔光学反应板 | Fisher Scientific | 4309849 | |
| MicroAmp 光学粘性封膜 | Fisher Scientific | 4311971 | |
| Microcentrifuge 5424 R | Eppendorf | 5404000014 | 或任何其他适用于 1.5 mL 离心管的台式离心机 |
| 微波炉 | Panasonic | NN-SD987SA | 或类似产品 |
| Nikon TMS 倒置相差显微镜 | Nikon | TMS | 或任何其他用于细胞培养的倒置相差显微镜 |
| 非必需氨基酸,100 倍浓缩液 | Gibco | 11140-050 | |
| 无核酸酶 Duplex 缓冲液 | Integrated DNA Technologies | 11-01-03-01 | |
| 无核酸酶水 | Qiagen | 129115 | |
| pH 计 | Mettler Toledo | 30019028 | 或类似产品 |
| Pipetman Classic 初学者套装,4 支移液器套装(P2、P20、P200、P1000)及吸头 | Gilson | F167380 | 或类似的移液器和吸头组合 |
| Pluronic F-68 10% | Gibco | 24040-032 | |
| 聚乙二醇 8000 | Fisher Scientific | BP233-1 | |
| 聚乙烯亚胺,线性,分子量 25000,转染级(PEI 25K) | Polysciences | 23966-100 | |
| 精密天平 | Mettler Toledo | ME4001TE | 或类似产品 |
| 预分离滤器(30 µm) | Miltenyi Biotec | 130-041-407 | |
| Pyrex 玻璃烧杯,2 L | Cole-Parmer | UX-34502-13 | 或类似产品 |
| Pyrex 玻璃烧杯,250 mL | Millipore Sigma | CLS1000250 | 或类似产品 |
| qPCR 仪器 | Fisher Scientific | 4485691 | 或类似产品 |
| RC1 抗原随机生物素化 | Bjorkman 实验室,加州理工学院 | 实验室自制 | |
| RPMI-1640 | Gibco | 11875-093 | |
| S.p. Cas9 核酸酶 | Integrated DNA Technologies | 1081059 | |
| Scientific 1203 水浴锅 | VWR | 24118 | 或任何设定为 37 °C 的水浴锅 |
| 氯化钠 | Sigma-Aldrich | S7653-5KG | |
| 氢氧化钠 | Sigma-Aldrich | S8045-500G | |
| 丙酮酸钠 100 mM | Gibco | 11360-070 | |
| 带 PES 膜的无菌一次性过滤装置 | Thermo Scientific Nalgene | 567-0020 | |
| 链霉亲和素-PE | BD Biosciences | 554061 | |
| SYBR Green Master Mix | Fisher Scientific | A25742 | |
| 四环素可诱导的自沉默腺病毒载体 RepCap6 | Oxgene | TESSA-RepCap6 | |
| 台盼蓝溶液,0.4% | Gibco | 15250061 | |
| 胰蛋白酶-EDTA(0.05%),含酚红 | Gibco | 25300054 | |
| 水纯化系统 | Millipore Sigma | ZEQ7000TR | 或类似产品 |
| Zombie-NIR | Biolegend | 423106 |
参考文献
- Victora, G. D., Nussenzweig, M. C. Germinal centers. Annual Review of Immunology. 40, 413-442 (2022).
- Plotkin, S. A. Correlates of protection induced by vaccination. Clinical and Vaccine Immunology. 17 (7), 1055-1065 (2010).
- Brinkmann, V., Heusser, C. H. T cell-dependent differentiation of human B cells into IgM, IgG, IgA, or IgE plasma cells: High rate of antibody production by IgE plasma cells, but limited clonal expansion of IgE precursors. Cellular Immunology. 152 (2), 323-332 (1993).
- Chernecky, C. C., Berger, B. J. Protein Electrophoresis - Serum., 6th edition. , Elsevier Saunders. St Louis, MO. 917-920 (2013).
- Balazs, A. B., et al. Antibody-based protection against HIV infection by vectored immunoprophylaxis. Nature. 481 (7379), 81-84 (2011).
- Greiner, V., et al. CRISPR-mediated editing of the B cell receptor in primary human B cells. iScience. 12, 369-378 (2019).
- Hartweger, H., et al. HIV-specific humoral immune responses by CRISPR/Cas9-edited B cells. Journal of Experimental Medicine. 216 (6), 1301-1310 (2019).
- Huang, D., et al. Vaccine elicitation of HIV broadly neutralizing antibodies from engineered B cells. Nature Communications. 11, 5850(2020).
- Jeske, A. M., Boucher, P., Curiel, D. T., Voss, J. E. Vector strategies to actualize B cell-based gene therapies. Journal of Immunology. 207 (3), 755-764 (2021).
- Nahmad, A. D., et al. In vivo engineered B cells secrete high titers of broadly neutralizing anti-HIV antibodies in mice. Nature Biotechnology. 40 (8), 1241-1249 (2022).
- Nahmad, A. D., et al. Engineered B cells expressing an anti-HIV antibody enable memory retention, isotype switching and clonal expansion. Nature Communications. 11, 5851(2020).
- Voss, J. E., et al. Reprogramming the antigen specificity of B cells using genome-editing technologies. eLife. 8, 42995(2019).
- Pesch, T., et al. Molecular design, optimization, and genomic integration of chimeric B cell receptors in murine B cells. Frontiers in Immunology. 10, 2630(2019).
- Cheong, T. C., Compagno, M., Chiarle, R. Editing of mouse and human immunoglobulin genes by CRISPR-Cas9 system. Nature Communications. 7, 10934(2016).
- Rogers, G. L., Cannon, P. M. Genome edited B cells: A new frontier in immune cell therapies. Molecular Therapy. 29 (11), 3192-3204 (2021).
- Hung, K. L., et al. Engineering protein-secreting plasma cells by homology-directed repair in primary human B cells. Molecular Therapy. 26 (2), 456-467 (2018).
- Johnson, M. J., Laoharawee, K., Lahr, W. S., Webber, B. R., Moriarity, B. S. Engineering of primary human B cells with CRISPR/Cas9 targeted nuclease. Scientific Reports. 8, 12144(2018).
- Wu, C. M., et al. Genetic engineering in primary human B cells with CRISPR-Cas9 ribonucleoproteins. Journal of Immunological Methods. 457, 33-40 (2018).
- Luo, B., et al. Engineering of alpha-PD-1 antibody-expressing long-lived plasma cells by CRISPR/Cas9-mediated targeted gene integration. Cell Death and Disease. 11 (11), 973(2020).
- Laoharawee, K., et al. Genome engineering of primary human B cells using CRISPR/Cas9. Journal of Visualized Experiments. (165), e61855(2020).
- Laoharawee, K., Johnson, M. J., Moriarity, B. S. CRISPR/Cas9-mediated genome engineering of primary human B cells. Methods in Molecular Biology. 2115, 435-444 (2020).
- Moffett, H. F., et al. B cells engineered to express pathogen-specific antibodies protect against infection. Science Immunology. 4 (35), (2019).
- Hartweger, H., Nussenzweig, M. C. CRISPR comes a-knock-in to reprogram antibodies in vivo. Nature Biotechnology. 40 (8), 1183-1184 (2022).
- Nishimura, Y., Martin, M. A. Of mice, macaques, and men: Broadly neutralizing antibody immunotherapy for HIV-1. Cell Host & Microbe. 22 (2), 207-216 (2017).
- Shedlock, D. J., Silvestri, G., Weiner, D. B. Monkeying around with HIV vaccines: Using rhesus macaques to define 'gatekeepers' for clinical trials. Nature Reviews Immunology. 9 (10), 717-728 (2009).
- Kreuser, S., et al. Efficient methods for generation and expansion of, and gene delivery to rhesus macaque plasma B cells. bioRxiv. , (2021).
- Gujer, C., Sundling, C., Seder, R. A., Karlsson Hedestam, G. B., Lore, K. Human and rhesus plasmacytoid dendritic cell and B-cell responses to Toll-like receptor stimulation. Immunology. 134 (3), 257-269 (2011).
- Kim, J. S., et al. Cell enrichment-free massive ex-vivo expansion of peripheral CD20(+) B cells via CD40-CD40L signals in non-human primates. Biochemical and Biophysical Research Communications. 473 (1), 92-98 (2016).
- Su, W., et al. Self-attenuating adenovirus enables production of recombinant adeno-associated virus for high manufacturing yield without contamination. Nature Communications. 13, 1182(2022).
- Endo, Y., et al. Short- and long-term clinical outcomes in rhesus monkeys inoculated with a highly pathogenic chimeric simian/human immunodeficiency virus. Journal of Virology. 74 (15), 6935-6945 (2000).
- Balaphas, A., Buchs, N. C., Meyer, J., Hagen, M. E., Morel, P. Partial splenectomy in the era of minimally invasive surgery: The current laparoscopic and robotic experiences. Surgical Endoscopy. 29 (12), 3618-3627 (2015).
- Gibson, D. G., et al. Enzymatic assembly of DNA molecules up to several hundred kilobases. Nature Methods. 6 (5), 343-345 (2009).
- Labun, K., et al. CHOPCHOP v3: Expanding the CRISPR web toolbox beyond genome editing. Nucleic Acids Research. 47, 171-174 (2019).
- Strobel, B., Miller, F. D., Rist, W., Lamla, T. Comparative analysis of cesium chloride- and iodixanol-based purification of recombinant adeno-associated viral vectors for preclinical applications. Human Gene Therapy Methods. 26 (4), 147-157 (2015).
- Guo, P., et al. Rapid and simplified purification of recombinant adeno-associated virus. Journal of Virological Methods. 183 (2), 139-146 (2012).
- Vandenberghe, L. H., et al. Efficient serotype-dependent release of functional vector into the culture medium during adeno-associated virus manufacturing. Human Gene Therapy. 21 (10), 1251-1257 (2010).
- Brinkman, E. K., Chen, T., Amendola, M., van Steensel, B. Easy quantitative assessment of genome editing by sequence trace decomposition. Nucleic Acids Research. 42 (22), 168(2014).
- Conant, D., et al. Inference of CRISPR edits from Sanger trace data. The CRISPR Journal. 5 (1), 123-130 (2022).
- Wilkinson, A. C., et al. Cas9-AAV6 gene correction of beta-globin in autologous HSCs improves sickle cell disease erythropoiesis in mice. Nature Communications. 12, 686(2021).
- Wang, Z., et al. A broadly neutralizing macaque monoclonal antibody against the HIV-1 V3-Glycan patch. eLife. 9, 61991(2020).
- Escolano, A., et al. Immunization expands B cells specific to HIV-1 V3 glycan in mice and macaques. Nature. 570 (7762), 468-473 (2019).
- Pathiraja, V., Matar, A. J., Gusha, A., Huang, C. A., Duran-Struuck, R. Leukapheresis protocol for nonhuman primates weighing less than 10 kg. Journal of the American Association for Laboratory Animal Science. 52 (1), 70-77 (2013).
- Stratigopoulos, G., De Rosa, M. C., LeDuc, C. A., Leibel, R. L., Doege, C. A. DMSO increases efficiency of genome editing at two non-coding loci. PLoS One. 13 (6), 0198637(2018).
重印与许可
