本方案描述了从冷冻的非人灵长类动物胰岛中分离高质量细胞核的步骤,可用于进行单细胞核同时RNA测序和ATAC测序,同时保留同一标本中的大部分胞质组分,以用于代谢组学分析。
本文内容
摘要
摘要
在利用来自多个队列的组织样本开展研究时,一个挑战是在准备大规模多组学实验(如联合单细胞RNA测序与代谢组学)时避免批次效应。本研究采用的方法利用了在两年时间内收集的胎儿非人灵长类动物胰岛组织,这些组织经速冻保存,用于单核RNA测序和ATAC测序实验。在细胞核提取过程中产生的胞质组分被保留下来,用于后续的毛细管电泳-质谱分析及代谢物定量。该方法可对在不同实验条件下影响转录组和表观基因组动态变化的代谢物进行整体分析,适用于多种组织类型,并最大限度地提高了从难以获取的样本中可提取的信息量。鉴于代谢在细胞身份建立过程中的重要作用 通过 表观遗传修饰的重要性日益受到重视,因此能够识别特定细胞类型中代谢物作用的技术显得及时且必要。
引言
胰腺朗格汉斯岛在生命全周期的葡萄糖耐量调控中至关重要。无法恰当地调节血糖水平 通过 降糖激素胰岛素或升糖激素胰高血糖素的异常导致糖尿病1可改变的糖尿病风险因素包括运动和饮食。此外,越来越多的证据表明,母亲在妊娠期间的饮食也会影响子代成年后患糖尿病的易感性。2,3因此,需要建立相应方法来分析母体饮食及其他孕期暴露因素(如妊娠期间使用的药物)对发育过程中模式生物胰岛素生成β细胞的影响。例如,可利用胎儿期非人灵长类动物(NHP)子代的胰岛评估发育暴露的影响。与人类相似,NHP通常为单胎分娩,且对西方饮食喂养的生理反应存在个体差异。4尽管非人灵长类动物(NHP)的妊娠过程和胎儿发育与人类有许多相似之处,使其成为代谢编程研究中高度相关的物种,但在NHP子代中开展比较性生物信息学分析仍面临交配季节受限和样本采集间断等挑战。因此,在样本处理与分析前能够实现长期保存的方法尤为理想。本方案描述了用于单核RNA测序、ATAC测序和整体细胞质代谢组学分析的样本制备流程。
其他研究者在胰岛生物学领域的研究表明,在所制备样本中观察到的基因表达特征存在重叠 通过 单细胞RNA测序和单细胞核RNA测序5,6两种方法均可用于鉴定胰岛细胞群体中不同细胞类型间特征性差异相关的转录本。通过对速冻组织使用温和的去垢剂,可同时获得完整的细胞核用于ATAC测序,从而确定染色质的可及区域。将单核RNA测序与ATAC测序相结合,有助于更深入地解析基因调控网络。7.
代谢组学样品的制备传统上受限于液相色谱分析所需的较高样品投入量。此外,在样品制备过程中必须谨慎选择所用缓冲液,以避免在质谱数据中产生假的核磁共振峰。鉴于灵长类研究中样品数量稀少且获取困难、成本高昂,将不同子代的胰岛组织分配用于转录组学或代谢组学实验可能极具挑战性。因此,本方案利用了在单核实验的细胞分馏过程中通常被丢弃的胞质组分。该方法可在定量测定胰岛内代谢物的同时,实现对定义胎儿胰岛细胞亚群的转录本和开放染色质区域的同步表征(图1)。本方案改编自10x Genomics公司已发表的一项从速冻小鼠胚胎脑组织中分离细胞核的成熟方案(版本CG000366 Rev D8)7。
方案
胰岛获取操作严格遵循俄勒冈国家灵长类研究中心(ONPRC)和俄勒冈健康与科学大学机构动物照护与使用委员会(IACUC)的指导方针,并已获得ONPRC IACUC的批准。ONPRC遵守美国农业部(USDA)执行的《动物福利法》及其相关法规,以及公共卫生服务关于实验动物人道照护与使用的政策。本方案适用于妊娠第145天处死的恒河猴胎儿的胰岛(恒河猴妊娠期通常为173至175天)。本研究中所用试剂与设备的详细信息列于材料表中。
1. 胰岛分离
- 从周围组织中分离胎儿胰腺9 并将其置于冰冻的磷酸盐缓冲液中。
- 从 PBS 中取出胰腺,并用胶原酶 P(0.6 mg/mL)进行膨胀灌注 通过 使用33G啮齿类动物脑部套管注射器对胰管进行插管。
- 用无菌手术剪将胰腺分为六个部分,在37 °C下用胶原酶溶液消化27-30分钟。
- 将10% FBS和100 U/mL青霉素/链霉素加入RPMI 1640中,配制RT培养基。
- 倒出胶原酶,加入10 mL室温培养基。
- 轻轻振荡1分钟,以破坏残留的结缔组织。
- 通过500 µm滤网过滤,去除未消化的物质。
- 用50 mL室温培养基将胰岛洗涤两次。
- 将胰岛置于含有牛DNase I(0.8 U/mL)的溶液中,在37 °C水浴中孵育10分钟。
- 在含有牛DNase I(0.4 U/mL)的RT培养基中,将胰岛于37 °C、5% CO₂条件下培养过夜2.
- 使用控温凝胶包在常温下以专用包装运输岛状组织。
2. 样本的长期保存储存
- 使用带刻度的测微目镜评估胰岛的大小,并记录制备物中腺泡组织和导管组织的程度。
- 使用自动移液器将胰岛手动挑选至含有5 mL 2.8 mM葡萄糖DMEM的60 mm培养皿中。
注意:必须尽量减少最终胰岛制备物中所含的腺泡组织和导管组织。有关理想胰岛使用的详细信息见先前的实验方案9。 - 将胰岛挑入1.5 mL离心管中,在4 °C下以约300 × g离心5分钟。
- 用不含钙和镁的1×PBS重悬胰岛。
- 在4 °C下以约300 × g离心5分钟,弃去上清液。
- 重复步骤2.3–2.5两次。
- 将胰岛置于1.5 mL离心管中,在液氮中速冻10秒。
- 将沉淀物保存在-80 °C,直至进行核分离当天。
3. 细胞组分分离以提取细胞核和细胞质组分
- 细胞核提取缓冲液的制备(表1)。
- 确保实验台、移液器和试剂均无RNase污染。
- 根据表1配制洗涤缓冲液、浓缩裂解缓冲液、裂解稀释缓冲液和稀释后的细胞核缓冲液。
- 在5 mL离心管中,使用裂解稀释缓冲液将浓缩裂解缓冲液稀释10倍,制备0.1x裂解缓冲液。
- 组织匀浆
- 从-80 °C冰箱中取出样品,并立即置于冰上。
- 向组织沉淀中加入500 µL 0.1x裂解缓冲液,冰上孵育3分钟。
- 使用一次性无RNase的研磨杵,在冰上轻柔地匀浆组织15次。
- 将样品在冰上孵育10分钟。
- 向匀浆液中加入500 µL洗涤缓冲液,并在冰上轻轻吹打混匀。
- 在5 mL离心管上方的30 µm预分离滤膜上加入300 mL洗涤缓冲液,以预湿滤膜。
- 将1 mL细胞匀浆液通过30 µm预分离滤膜过滤至5 mL离心管中。
- 将过滤后的匀浆液在4 °C下,以500 × g离心5分钟(使用摆桶式离心机)。
- 用于代谢组学分析的上清液收集与保存
- 用移液器从步骤3.2.8中吸取1 mL上清液,加入置于冰上的1.5 mL冻存管中。
- 立即将上清液在-80 °C下冷冻保存。该上清液将用于代谢组学分析。
- 单细胞核RNA测序和ATAC测序用细胞核的制备
- 逐滴加入1 mL洗涤缓冲液至细胞核沉淀中,轻柔重悬沉淀。缓慢吹打混匀5次。
- 在4 °C下,以1000 × g离心5分钟(使用摆桶式离心机),收集洗涤后的沉淀。
- 重复步骤3.4.1和3.4.2一次。
- 最后一次洗涤后,将细胞核重悬于1 mL洗涤缓冲液中。保持细胞核制备物处于冰上。
- 用移液器吸取10 µL细胞核悬液,与10 µL 0.4%台盼蓝溶液轻柔吹打混匀。
- 用移液器将10 µL细胞核与台盼蓝的混合液加入自动细胞计数仪专用载片中,并将其放入仪器内。
- 测定细胞核浓度(单位:个/µL)。
注意:与单细胞RNA测序所用的细胞制备物不同,自动细胞计数仪会将细胞核识别为死细胞。因此,在自动细胞计数仪检测中,该制备物的“活细胞率”不应超过95%。如果细胞核群体中“活细胞”比例超过5%,可将细胞核悬液再次通过30 µm预分离滤膜过滤,并在4 °C下以1000 × g离心5分钟。随后可按照步骤3.4.6所述重新计算细胞核浓度。 - 根据目标细胞核回收量,使用1x细胞核缓冲液将细胞核重悬至所需浓度,并进行单细胞核RNA测序和ATAC测序文库构建10。
4. 毛细管电泳-质谱联用(CE-MS)用胞质组分的制备
- 将步骤 3.3.1 中收集的 80 µL 胞质组分与含有内化标准品的 20 µL 超纯水混合。
- 按照先前所述方法进行毛细管电泳-质谱(CE-MS)及分析11,12,13。
结果
测序结果的质量在很大程度上取决于细胞核输入样本的质量。细胞核出泡以及核外膜的损伤会导致环境RNA和DNA污染,从而在分析中引入数据噪声。理想的细胞核提取物应极少出现细胞核被细胞质成分包裹(图2A)或过度消化(表现为细胞核破裂,图2B)的现象。理想的细胞核输入样本应包含完整形态的细胞核(图2C)。
单核RNA测序和ATAC测序数据分析的详细方法已在其他文献中充分描述5,14胎儿非人灵长类动物细胞核悬液制备中的代表性细胞群体簇 通过 UMAP在 图3A代谢组学数据可使用开源软件进行分析,方法如前所述。15生成的谱图可进行可视化分析,并可比较来自食用西式饮食母鼠的胎儿胰岛中富集的代谢物与来自食用对照饮食母鼠的胎儿胰岛中的代谢物。图3B-F).
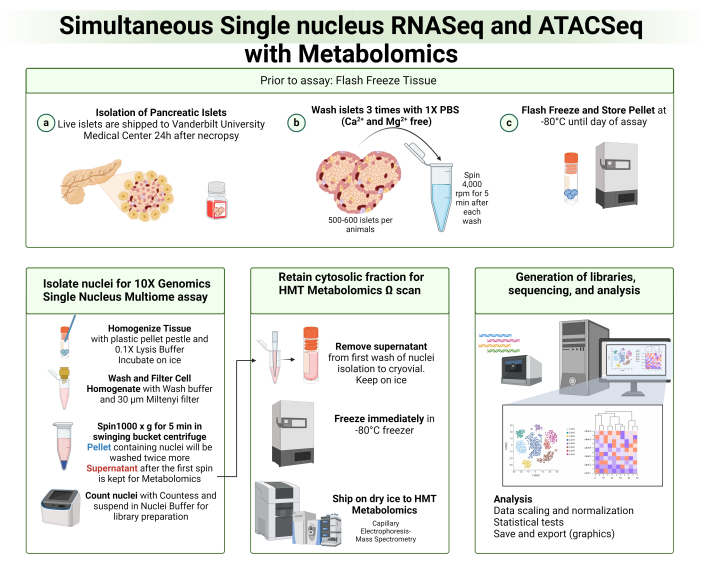
图1:细胞核与胞质组分分离方案概览。 胎儿胰岛组织经保存后储存在-80 °C,直至实验当日使用。分离获得的细胞核用于单细胞核RNA测序和ATAC测序。在细胞核分离第一次洗涤后所得的胞质组分被保留,用于毛细管电泳-质谱分析。请点击此处查看该图的放大版本。
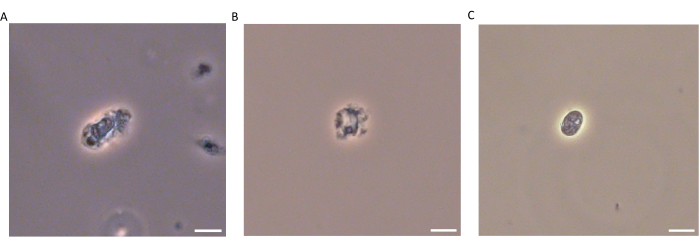
图2:单核多组学检测中合适细胞核样本的示例。(A)被细胞质包裹的细胞核,(B)细胞核膜破损的破裂细胞核,以及(C)形态完整且呈圆形的细胞核。比例尺:10 µm。请点击此处查看该图的放大版本。
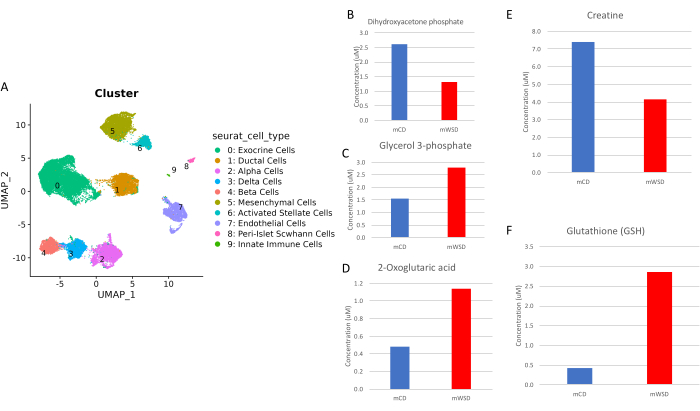
图3整合单核多组学与批量代谢组学的代表性数据 (A) 基于基因表达对分离的胎儿非人灵长类动物胰岛中细胞亚型进行UMAP聚类分析。对糖酵解代谢物的定量估算,(B二羟基丙酮磷酸盐和(C) 母体食用西式饮食(mWSD)或对照饮食(mCD)时,分离的胎儿非人灵长类动物胰岛细胞质组分中的甘油-3-磷酸含量。母体饮食可能差异性地调控代谢 通过 (D柠檬酸循环(2-氧代戊二酸),(E氨基酸代谢(肌酸)以及通过改变(F) 胎儿胰岛中的细胞氧化还原状态(谷胱甘肽)。 请点击此处以查看此图的放大版本。
表1:细胞核分离用缓冲液配方。 显示了细胞核提取、裂解、裂解稀释和洗涤缓冲液的详细组分。如有需要,在配制缓冲液前先将试剂稀释至储存浓度。请点击此处下载该表格。
讨论
传统上,用于单核RNA测序和ATAC测序的细胞核分离方法依赖于含有去垢剂的缓冲液,而这些去垢剂与液相色谱-质谱联用技术(LC-MS)不兼容;LC-MS是代谢物定量分析中常用的技术16,17。本实验方案通过采用温和的去垢剂进行细胞组分分离,并在组分分离后结合毛细管电泳技术,实现了在同一份样品制备基础上联合开展转录组学与代谢组学分析。毛细管电泳技术相较于液相色谱所需样品量更少,适用于代谢物的分离18。
本方案最关键的步骤是在细胞核分离过程中保护核膜的完整性,以避免遗传物质降解,并减少来自周围环境的核苷酸和大分子的污染。可通过调整样品在裂解缓冲液中的暴露时间,以避免组织过度消化和细胞核损伤。此外,在样本保存过程中,必须迅速冷冻胰岛以及含有胞质组分的上清液,以防止遗传物质和代谢物的降解。所有样品必须来自相同的培养基配方(本研究中为2.8 mM葡萄糖DMEM),以避免因培养基中营养物质的差异而对代谢状态产生干扰效应。
该联合代谢组学方法的一个局限性在于,由于核分离过程中使用的去垢剂,部分代谢物可能无法被检测到。因此,为了获得更全面的代谢物分析结果,可结合冷冻组织样本,采用非有机洗涤缓冲液提取代谢物,并通过液相色谱-质谱法(LC-MS)进行分析,以补充本方法的不足。推荐的补充方法是靶向空间代谢组学。 通过 MALDI-MS 用于定位器官内代谢变化19此外,由于ATAC测序的测序深度较浅,目前在同一细胞核内评估转录本变异性和染色质可及性的技术仍存在局限。在数据分析中,研究者仅能针对广泛的细胞簇评估开放的染色质区域,而无法精确到数据集内的特定亚群。
随着难以获取的组织(尤其是人类和非人灵长类组织)的使用日益频繁,最大限度地从一个生物学重复样本中提取信息变得至关重要。上述多组学方法使研究人员能够将遗传特征与细胞身份关键启动子区域周围的染色质可及性高峰相关联,同时考虑细胞代谢可能对这些变化产生的影响。鉴定细胞制备物中更丰富的代谢物,将为驱动细胞亚型向特定谱系分化的表观遗传修饰提供重要线索。事实上,已有新方案被建立,用于整合转录组学和代谢组学实验的结果,尽管这些实验目前仍来自不同的组织来源20。本方案的意义在于,仅需单一样本输入,即可同时评估染色质可及性、转录变化以及代谢物富集情况。该技术的未来应用将有助于更好地表征来自稀少样本群体(如罕见病患者组织)的疾病状态。在胰岛生物学领域,基因调控网络及其相关代谢特征的表征,可为维持β细胞身份和功能以预防糖尿病发生的关键机制提供重要见解。
披露
作者声明无利益冲突。
致谢
作者谨向俄勒冈健康与科学大学的整个团队致以诚挚感谢,感谢他们对非人灵长类动物种群的悉心管理以及组织样本的获取。此外,范德堡先进基因组学技术中心提供了技术支持和实验设计方面的建议。DTC 获得了美国国立卫生研究院/国家糖尿病、消化及肾脏疾病研究所(NIH/NIDK)F31 博士前奖学金资助(1F31DK135164)。PK 获得了美国国立卫生研究院/国家糖尿病、消化及肾脏疾病研究所(NIH/NIDDK)的资助(1R01DK128187)。MG 获得了美国退伍军人事务部杰出研究奖(VA Merit award,I01 BX005399)、美国国立卫生研究院/国家糖尿病、消化及肾脏疾病研究所(NIH/NIDDK,1R01DK135032,1R01DK128187)以及青少年糖尿病研究基金会(JDRF,2-SRA-2024-1455-S-B)的资助。俄勒冈国家灵长类研究中心(ONPRC)的工作获得了 P51OD011092 项目的支持,用于研究中心的日常运行。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 33G 大鼠脑部套管注射器 | Protech International | 8IC315IS5SPC | 用于导管插管和胰腺充盈 |
| 青霉素/链霉素 | Fisher | 15-140-122 | 用于RT培养基 |
| FBS | Millipore/Sigma | F4135-500ML | 用于RT培养基 |
| RPMI 1640 | 赛默飞世尔科技 | 11-875-135 | 用于RT培养基 |
| 胶原酶P | Sigma Aldrich | 11213865001 | 胰腺消化 |
| 牛DNase I | Sigma Aldrich | 11284932001 | 用于RT培养基和分离 |
| 葡萄糖 | Fisher | D16-1 | 终浓度为 2.8 mM |
| 氯化钙 | Fisher | C4901-500G | 终浓度为 0.5 mM |
| HEPES | Gibco | 15630-080 | 终浓度为 10 mM |
| 牛血清白蛋白(BSA)第5组分 | 研究产品国际公司 | A30075100 | 终浓度为 0.5 mg/mL |
| 杜尔贝科改良伊格尔培养基 | Gibco | 11966025 | 用于手挑胰岛 |
| 20x 细胞核缓冲液 | 10X Genomics | 2000153/2000207 | |
| Digitonin(5%) | 赛默飞世尔科技 | BN2006 | Digitonin 可能需要加热至 65 °C 以溶解白色沉淀 |
| MACS SmartStrainer(30 µM | Miltenyi Biotec | 130-098-458 | |
| MACS BSA 储存液(10%) | Miltenyi Biotec | 130-091-376 | |
| IGEPAL CA-630 | Sigma Aldrich | i8896 | 使用 MilliQ 水配制 10% 的储存液 |
| Trizma 盐酸盐溶液,pH 7.5 | Sigma Aldrich | T2319-1L | |
| 5 M 氯化钠溶液 | Sigma Aldrich | S6546-1L | |
| 1 M 氯化镁溶液 | Sigma Aldrich | M1028-100mL | |
| Sigma Protector RNase抑制剂 | Sigma Aldrich | 3335402001 | |
| DTT | 研究产品国际公司 | D11000-5.0 | |
| 无RNase一次性研磨杵 | Fisher Scientific | 12-141-368 | |
| Tween 20 | Fisher Bioreagents | BP337-500 | 使用 MilliQ 水配制 20% 的储存液 |
| 无核酸酶水 | Promega | PR-P1193 | |
| DNA LoBind 离心管(5 mL) | Eppendorf | 30108310 | |
| 冻存管(1.5 mL) | VWR | 20170-225 | |
| Posi-Click 管(0.6 mL) | 丹维尔 | C-2177 | |
| 台盼蓝(0.4%) | 赛默飞世尔科技 | T-10282 | |
| 双室细胞计数板 | 伯乐(Bio-Rad) | 1450011 | |
| MiiliQ超纯水系统 | 默克/西格玛 | 7003/05/10/15 | |
| 5 kDa 截留分子量滤膜 | HMT 代谢组学技术 | ||
| 内标物 | HMT 代谢组学技术 | ||
| P10、P20、P200 和 P1000 移液器 | Eppendorf | 2231000602 | |
| 移液器吸头,10 µL | VWR | 76322-528 | |
| 移液器吸头,1000 µL | 赛默飞世尔科技 | 21-236-2A | |
| 移液器吸头,20 µL | Genesee Scientific | 23-404 | |
| 移液器吸头,200 µL | USA Scientific | 1120-8810 | |
| 相差显微镜 | 奥林巴斯 | BX41-PH-B | |
| Countess II 自动细胞计数仪 | 赛默飞世尔科技 | AMQAX1000 | |
| DPBS (1x) | Gibco | 14190-144 | |
| Allegra X-30R 离心机 | 贝克曼库尔特 | B06315 | |
| RNase-ZAP | Sigma Aldrich | R2020 |
参考文献
- Christensen, A. A., Gannon, M. The beta cell in type 2 diabetes. Curr Diab Rep. 19 (9), 81(2019).
- Elsakr, J. M., Gannon, M. Developmental programming of the pancreatic islet by. Trends Dev Biol. 10, 79-95 (2017).
- Salzberg, L. Risk factors and lifestyle interventions. Prim Care. 49 (2), 201-212 (2022).
- Pound, L. D., Kievit, P., Grove, K. L. The non-human primate as a model for type 2 diabetes. Curr Opin Endocrinol Diabetes Obes. 21 (2), 89-94 (2014).
- Kang, R. B., et al. Single-nucleus RNA sequencing of human pancreatic islets identifies novel gene sets and distinguishes β-cell subpopulations with dynamic transcriptome profiles. Genome Med. 15 (1), 30(2023).
- Basile, G., et al. Using single-nucleus RNA-sequencing to interrogate transcriptomic profiles of archived human pancreatic islets. Genome Med. 13 (1), 128(2021).
- Cabé, C. M., et al. High-quality brain and bone marrow nuclei preparation for single nuclei multiome assays. J Vis Exp. (202), e65715(2023).
- Nuclei from embryonic mouse brain for single cell multiome ATAC + gex sequencing. , Available from: https://www.10xgenomics.com (2022).
- Elsakr, J. M., Deeter, C., Ricciardi, V., Gannon, M. Analysis of non-human primate pancreatic islet oxygen consumption. J Vis Exp. (154), e60696(2019).
- Chromium next gem single cell multiome ATAC + gene expression reagent kits user guide. , Available from: https://www.10xgenomics.com (2022).
- Maruyama, A., et al. Extraction of aqueous metabolites from cultured adherent cells for metabolomic analysis by capillary electrophoresis-mass spectrometry. J Vis Exp. (148), e59551(2019).
- Ooga, T., et al. Metabolomic anatomy of an animal model revealing homeostatic imbalances in dyslipidaemia. Mol Biosyst. 7 (4), 1217-1223 (2011).
- Ohashi, Y., et al. Depiction of metabolome changes in histidine-starved Escherichia coli by CE-TOFMS. Mol Biosyst. 4 (2), 135-147 (2008).
- Chiou, J., et al. Single-cell chromatin accessibility identifies pancreatic islet cell type– and state-specific regulatory programs of diabetes risk. Nat Genetics. 53 (4), 455-466 (2021).
- Pang, Z., et al. Metaboanalyst 6.0: Towards a unified platform for metabolomics data processing, analysis and interpretation. Nucleic Acids Res. , 253(2024).
- Willency, J. A., Lin, Y., Pirro, V. Targeted metabolomics in human and animal biofluids and tissues using liquid chromatography coupled with tandem mass spectrometry. STAR Protoc. 5 (1), 102884(2024).
- Behnke, J. -S., Urner, L. H. Emergence of mass spectrometry detergents for membrane proteomics. Anal Bioanal Chem. 415 (18), 3897-3909 (2023).
- Ouimet, C. M., D'amico, C. I., Kennedy, R. T. Advances in capillary electrophoresis and the implications for drug discovery. Expert Opin Drug Discov. 12 (2), 213-224 (2017).
- Alexandrov, T. Spatial metabolomics and imaging mass spectrometry in the age of artificial intelligence. Annu Rev Biomed Data Sci. 3, 61-87 (2020).
- Ewald, J. D., et al. Web-based multi-omics integration using the analyst software suite. Nat Protoc. 19, 1467-1497 (2024).
重印与许可
