Un método de cribado para detectar la oxidación celular entornos es medir la oxidación de la CM-H2DCFDA. Una vez oxidado dentro de una célula, CM-H2DCFDA cambios no fluorescentes en un compuesto fluorescente. Este cambio en la fluorescencia se mide mediante citometría de flujo e indica el número de células en un ambiente oxidativo.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Ensayo de detección de estrés oxidativo en una línea celular astrocitos felina, G355-5
En este artículo
Resumen
Resumen
Un mecanismo frecuentemente sugerido inducida por el virus de daño neuronal es el estrés oxidativo. Los astrocitos tienen un papel importante en el control de estrés oxidativo del Sistema Nervioso Central (SNC). Los astrocitos ayudan a mantener un medio homeostático de las neuronas, así como la protección de las neuronas a partir de especies reactivas del oxígeno (ROS). CM-H2DCFDA es un indicador penetran en las células de la presencia de ROS. CM-H 2 DCFDA entra en la célula como un compuesto no fluorescente, y se convierte en fluorescente después de esterasas celulares eliminar los grupos de acetato, y el compuesto se oxida. El número de células, medido por citometría de flujo, que se encuentran para ser fluorescente verde es una indicación de la cantidad de células que se encuentran en un estado de oxidación. CM-H 2 DCFDA es susceptible a la oxidación por un gran número de diferentes ROS. Esta falta de especificidad, respecto de los cuales ROS puede oxidar CM-H 2 DCFDA, hace que este compuesto un regente valiosa para su uso en las primeras etapas de una investigación de la patogénesis, ya que este ensayo puede ser utilizado para la detección de un ambiente oxidativo celular, independientemente de que el oxígeno radical o una combinación de ROS son los responsables de las condiciones celulares. Una vez que se ha establecido que las ROS se presentan por la oxidación de la CM-H 2 DCFDA, entonces experimentos adicionales se puede realizar para determinar qué combinación de ROS o ROS están implicados en el proceso de patogénesis particular. Los resultados de este estudio demuestran que con la adición de peróxido de hidrógeno un aumento de la CM-H 2 DCFDA fluorescencia se detectó en relación con los controles de solución salina, lo que indica que este ensayo es una prueba muy útil para la detección de un ambiente oxidativo en las células G355-5, un la línea celular de astrocitos felino.
Protocolo
1. De cultivo celular de astrocitos y felino, el tratamiento con H 2 O 2
- La línea de cultivo celular G355-5 en un frasco de 75 cm 2 con los medios de comunicación DMEM más nutrientes a 37 ° C y 5% de CO 2 hasta el 60% de confluencia (~ 5 días). Vuelva a colocar los medios de comunicación cada 1-2 días o según sea necesario para mantener una cultura saludable.
- Retire el medio y agregar 2 ml de tripsina 0,25%. Levante las células mediante pipeteo durante 45 s - 1 min a temperatura ambiente (TA).
- Rápidamente la transferencia de la suspensión a un tubo cónico de 15 ml que contienen 10 ml de los medios de comunicación. Mezclar suavemente.
- Centrifugar a 300 xg, 23 ° C durante 3 minutos para obtener un pellet. Eliminar el sobrenadante sin perturbar el precipitado.
- Agregar 6-7 ml de medio fresco y volver a suspender las células.
- Añadir aproximadamente 1 ml de células en cada pocillo de una placa de 6 pocillos. Agregar 3.2 ml de los medios de comunicación a cada pocillo e incubar hasta el 80-90% confluente.
- Prepare una solución de peróxido de 100μM (H 2 O 2) en los medios de comunicación.
- Retire el medio de cada pocillo y reemplazar con 2 ml de medio fresco (control), 2 ml de H 2 O 2 (tratamiento) o 2 ml de DPBS. Se incuba a 37 ° C CO, 5% 2 de 3 h.
- Quitar las soluciones y agregar 1 ml de tripsina para levantar las células. La transferencia de células a un tubo de 1,7 ml Eppendorf que contiene 0,5 ml de DPBS. Este paso se debe realizar en cada pocillo de forma individual con el fin de prevenir la muerte celular de incubación prolongado tripsina.
- Giran a 300 xg durante 3 minutos, desechar el. Sobrenadante y resuspender en 1 ml de DPBS
2. La tinción de ROS
- Todos los pasos para la tinción debería ser realizada con una exposición mínima de luz para evitar decoloración.
- Añadir 1 l de CCCP 50 mm para el control positivo. Se incuba a 37 ° C, 5% de CO 2 durante 5 min.
- Añadir 5 l de una 10 mM CM-H 2 DCFDA solución a la H 2 O 2 grupos. Se incuba a 37 ° C, 5% de CO 2 durante 15-30 min. No mancha, se añade a la muestra de suero salino.
- Lavar las muestras con 2 ml de DPBS para eliminar la mancha residual.
- Giran a 300 xg durante 3 minutos para obtener un pellet.
- Resuspender las células en 0,5 ml de DPBS. Añadir un PI l de cada muestra, con excepción de la solución salina.
- Transferencia de muestras a un tubo de citómetro de flujo de 5 ml.
- Ejecutar en el citómetro de flujo.
3. Citometría de flujo
- Corra las muestras en un FC500 Beckman Coulter (o equivalente) equipado con un láser de 488 nm de argón y los pasos siguientes bandas: 525, 775 y 620 nm, todos ± 20 nm.
- Prepare los controles adecuados: las células no teñidas, CM-H 2 DCFDA manchada sólo, único IP, doble manchadas (control negativo).
- Realizar un protocolo que tiene la histoplots siguiente: FS vs SS, PI vs CM-H DCFDA 2. También debe contar con los histogramas siguientes: el número de células frente a FL1, FL2 y FL3, que se corresponde con las manchas.
- Antes de ejecutar los ejemplos, revise el equipo, los líquidos y contenedores de residuos. Caliente el equipo por lo menos 20 min.
- Limpiar el equipo y realizar una calibración con las cuentas adecuadas de acuerdo a los estándares de los fabricantes.
- Seleccione el protocolo y ejecutar los ejemplos.
- Limpiar el equipo como se hizo anteriormente.
- Limpie la línea de vacío de acuerdo con las normas de los fabricantes.
- Apague la corriente y limpia la línea de la cabeza / de vacío.
- Desactivar el software y el ordenador.
4. Los resultados representativos:
Resultados de citometría de flujo se analizaron mediante FlowJo 7.6 y los controles de la mancha se utiliza para establecer objetivamente la compuerta. Sobre esta base, las células sanas a aparecer en la parte izquierda del gráfico y ROS (estrés oxidativo) se ha detectado como un cambio de celdas a la derecha. La figura 1 muestra los resultados de los efectos del peróxido de hidrógeno en astrocitos sanos felino. Los datos de FL1 se utilizó para medir la intensidad de la CM-H 2 DCFDA, lo que indica la presencia de ROS. Como era de esperar, una mayor cantidad de ROS se detectó en la muestra tratada con H 2 O 2. Esto se muestra en el histograma como un cambio en la intensidad de fluorescencia de izquierda a derecha. Al comparar las células sanas tratadas con DMEM contra DPBS, no hubo ningún cambio significativo en la cantidad de ROS (Fig. 2).
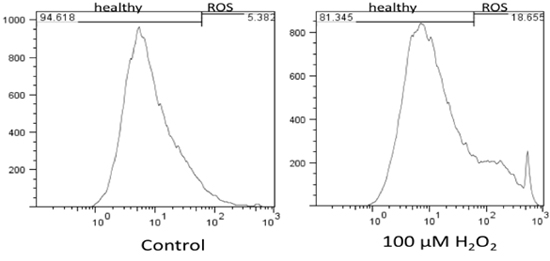
Figura 1. Los resultados de citometría de flujo de los niveles de estrés oxidativo en los astrocitos sanos felino y el efecto de H 2 O 2 en las células sanas. Los resultados indican que el H 2 O 2 aumenta los niveles de ROS en las células sanas en comparación con las células sin tratamiento (DMEM).
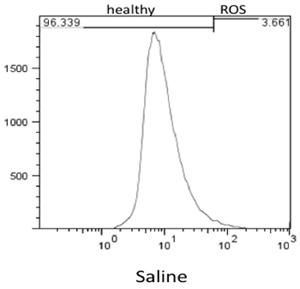
Figura 2. Resultados de citometría de flujo de los niveles de ROS detectado en las células sanas se incubaron durante 3 horas con DPBS.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
A menudo se sugiere un mecanismo de daño neuronal inducido por el virus es el estrés oxidativo 1, 4, 7, 9, 13, 15, 16, 18-22, 27, 31. Básicamente, se propone que a través de la exposición al virus de la glía (astrocitos y microglia) liberar los radicales de oxígeno reactivo, tal como hidróxido, el anión superóxido, óxido nítrico y / o peróxido de hidrógeno, que son tóxicos para las neuronas. Del mismo modo, el estrés oxidativo también ha sido sugerido como un importante mecanismo patológico de metanfetamina n...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Damos las gracias a los productos ReadiSorb por su generoso apoyo de estos estudios.
Agradecimientos
Damos las gracias a los productos ReadiSorb por su generoso apoyo de estos estudios.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Nombre del reactivo | Empresa | Número de catálogo | Comentarios (opcional) |
| DMEM | Cellgro | 15 a 013 CV | |
| MEM Vitaminas | Cellgro | 25-020-cl | 1% (v / v) |
| L-glutamina | Hyclone | 17-605E | 1% (v / v) |
| No aminoácidos esenciales | Hyclone | 25-025-cl | 1% (v / v) |
| FBS | Hyclone | SH30071.03 | 20% (v / v) |
| Aminoácidos Esenciales | Cellgro | 25-030-cl | 0,2% (v / v) |
| Vacío de 500 ml sistema de filtración | VWR | 87006-076 | |
| 15 ml tubos cónicos | Halcón | 352097 | |
| 75 cm 2 frascos de cultivo de tejidos | Halcón | 353136 | |
| 6 y placa de cultivo de tejidos | Halcón | 353224 | |
| CM-H 2 DCFDA | Invitrogen | C6827 | |
| Yoduro de propidio (PI) | Sigma | P4170-10mg | |
| Tripsina | Lonza | 17-160F | |
| H 2 O 2 | Sigma | H6520 | |
| HyQ antibióticos | Hyclone | SV30079.01 | 0,1% (v / v) |
| G355-5 células | ATCC | CRL-2033 | Cerebro felino normal |
Referencias
- Bukrinsky, M. I., Nottet, H. S., Schmidtmayerova, H. L., Dubrovsky, H., Flanagan, C. R., Mullins, M. E., Lipton, S. A., Gendelman, H. E. Regulation of nitric oxide synthase activity in human immunodeficiency virus type 1 (HIV-1)-infected monocytes: implications for HIV-associated neurological disease. J Exp Med. 181, 735-745 (1995).
- Cadet, J. L., Ali, S., Epstein, C. Involvement of oxygen-based radicals in methamphetamine-induced neurotoxicity: evidence from the use of CuZnSOD transgenic mice. Ann N Y Acad Sci. 738, 388-3891 (1994).
- Cathcart, R., Schwiers, E., Ames, B. N. Detection of picomole levels of hydroperoxides using a fluorescent dichlorofluorescein assay. Anal Biochem. 134, 111-116 (1983).
- Chao, C. C., Hu, S., Peterson, P. K. Glia: the not so innocent bystanders. J Neurovirol. 2, 234-239 (1996).
- Cooper, A. J., Kristal, B. S. Multiple roles of glutathione in the central nervous system. Biol Chem. 378, 793-802 (1997).
- Cubells, J. F., Rayport, S., Rajendran, G., Sulzer, D. Methamphetamine neurotoxicity involves vacuolation of endocytic organelles and dopamine-dependent intracellular oxidative stress. J Neurosci. 14, 2260-2271 (1994).
- Dawson, V. L., Dawson, T. M., Uhl, G. R., Snyder, S. H. Human immunodeficiency virus type 1 coat protein neurotoxicity mediated by nitric oxide in primary cortical cultures. Proc Natl Acad Sci U S A. 90, 3256-329 (1993).
- Desagher, S., Glowinski, J., Premont, J. Astrocytes protect neurons from hydrogen peroxide toxicity. J Neurosci. 16, 2553-2562 (1996).
- Dewhurst, S., Gelbard, H. A., Fine, S. M. Neuropathogenesis of AIDS. Mol Med Today. 2, 16-23 (1996).
- Dringen, R. Metabolism and functions of glutathione in brain. Prog Neurobiol. 62, 649-671 (2000).
- Dringen, R., Hamprecht, B. Glutathione restoration as indicator for cellular metabolism of astroglial cells. Dev Neurosci. 20, 401-407 (1998).
- Dringen, R., Pfeiffer, B., Hamprecht, B. Synthesis of the Antioxidant Glutathione in Neurons: Supply by Astrocytes of CysGly as Precursor for Neuronal Glutathione. J Neurosci. 19, 562-569 (1999).
- Everall, I. P. H. udson, L, R. W. K. erwin Decreased absolute levels of ascorbic acid and unaltered vasoactive intestinal polypeptide receptor binding in the frontal cortex in acquired immunodeficiency syndrome. Neurosci Lett. 224, 119-1122 (1997).
- Gabriel, C., Camins, A., Sureda, F. X., Aquirre, L., Escubedo, E., Pallas, M., Camarasa, J. Determination of nitric oxide generation in mammalian neurons using dichlorofluorescin diacetate and flow cytometry. J Pharmacol Toxicol Methods. 38, 93-938 (1997).
- Gendelman, H. E., Genis, P., Jett, M., Zhai, Q. H., Nottet, H. S. An experimental model system for HIV-1-induced brain injury. Adv Neuroimmunol. 4, 189-1893 (1994).
- Hayman, M., Arbuthnott, G., Harkiss, G., Brace, H., Filippi, P., Philippon, V., Thomson, D., Vigne, R., Wright, A. Neurotoxicity of peptide analogues of the transactivating protein tat from Maedi-Visna virus and human immunodeficiency virus. Neuroscience. 53, 1-6 (1993).
- Hirata, H., Ladenheim, B., Rothman, R. B., Epstein, C., Cadet, J. L. Methamphetamine-induced serotonin neurotoxicity is mediated by superoxide radicals. Brain Res. , 677-6345 (1995).
- Koka, P., He, K., Zack, J. A., Kitchen, S., Peacock, W., Fried, I., Tran, T., Yashar, S. S., Merrill, J. E. Human immunodeficiency virus 1 envelope proteins induce interleukin 1, tumor necrosis factor alpha, and nitric oxide in glial cultures derived from fetal, neonatal, and adult human brain. J Exp Med. 182, 941-951 (1995).
- Kong, L. Y., Wilson, B. C., McMillian, M. K., Bing, G., Hudson, P. M., Hong, J. S. The effects of the HIV-1 envelope protein gp120 on the production of nitric oxide and proinflammatory cytokines in mixed glial cell cultures. Cell Immunol. 172, 77-83 (1996).
- Koutsilieri, E., Gotz, M. E., Sopper, S., Sauer, U., Demuth, M., ter Meulen, V., Riederer, P. Regulation of glutathione and cell toxicity following exposure to neurotropic substances and human immunodeficiency virus-1 in vitro. J Neurovirol. 3, 342-349 (1997).
- Lipton, S. A. Similarity of neuronal cell injury and death in AIDS dementia and focal cerebral ischemia: potential treatment with NMDA open-channel blockers and nitric oxide-related species. Brain Pathol. 6, 507-517 (1996).
- Lipton, S. A., Yeh, M., Dreyer, E. B. Update on current models of HIV-related neuronal injury: platelet-activating factor, arachidonic acid and nitric oxide. Adv Neuroimmunol. 4, 181-188 (1994).
- Mills, E. M., Takeda, K., Yu, Z. X., Ferrans, V., Katagiri, Y., Jiang, H., Lavigne, M. C., Leto, T. L., Guroff, G. Nerve growth factor treatment prevents the increase in superoxide produced by epidermal growth factor in PC12 cells. J Biol Chem. 273, 22165-22168 (1998).
- Peuchen, S., Duchen, M. R., Clark, J. B. Modulation of the glutathione redox state in adult astrocytes. Biochem Soc Trans. 24, 449S-449S (1996).
- Possel, H., Noack, H., Augustin, W., Keilhoff, G., Wolf, G. 2,7-Dihydrodichlorofluorescein diacetate as a fluorescent marker for peroxynitrite formation. FEBS Lett. 416, 175-178 (1997).
- Sagara, J., Makino, N., Bannai, S. Glutathione efflux from cultured astrocytes. J Neurochem. 66, 1876-1881 (1996).
- Stefano, G. B., Smith, E. M., Paemen, L. R., Hughes, T. K. Jr HIV gp120 associated neurological deficits: a potential role for nitric oxide and other signal molecules. Advances in Neuroimmunology. 3, 47-57 (1993).
- Sundaresan, M., Yu, Z. X., Ferrans, V. J., Irani, K., Finkel, T. Requirement for generation of H2O2 for platelet-derived growth factor signal transduction. Science. 270, 296-299 (1995).
- Wang, X. F., Cynader, M. S. Astrocytes provide cysteine to neurons by releasing glutathione. J Neurochem. 74, 1434-1442 (2000).
- Wilson, J. X. Antioxidant defense of the brain: a role for astrocytes. Can J Physiol Pharmacol. 75, 1149-1163 (1997).
- Zenger, E., Collisson, E. W., Barhoumi, R., Burghardt, R. C., Danave, I. R., Tiffany-Castiglioni, E. Laser cytometric analysis of FIV-induced injury in astroglia. Glia. 13, 92-100 (1995).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
