El patrón de glicosilación de un anticuerpo determina su rendimiento clínico, por lo que persisten los esfuerzos industriales y académicos para controlar la glicosilación. Dado que las campañas típicas de glicoingeniería requieren mucho tiempo y mano de obra, la generación de un protocolo rápido para caracterizar el impacto de los genes de glicosilación utilizando silenciamiento transitorio resultaría útil.
Artículo de método
Glicoingeniería rápida de anticuerpos en células de ovario de hámster chino
* These authors contributed equally
En este artículo
Resumen
Resumen
Los anticuerpos monoclonales recombinantes se unen a dianas moleculares específicas y, posteriormente, inducen una respuesta inmune o inhiben la unión de otros ligandos. Sin embargo, la funcionalidad de los anticuerpos monoclonales y la vida media pueden verse reducidas por el tipo y la distribución de la glicosilación específica del huésped. Los intentos de producir anticuerpos superiores han inspirado el desarrollo de células productoras modificadas genéticamente que sintetizan anticuerpos glicooptimizados. La glicoingeniería generalmente requiere la generación de una línea celular estable de knockout o knockin utilizando métodos como la proteína 9 asociada a repeticiones palindrómicas cortas agrupadas regularmente interespaciadas (CRISPR). Los anticuerpos monoclonales producidos por células modificadas se caracterizan utilizando métodos espectrométricos de masas para determinar si se ha obtenido el glicoperfil deseado. Esta estrategia requiere mucho tiempo, es técnicamente desafiante y requiere especialistas. Por lo tanto, una estrategia alternativa que utilice protocolos simplificados para la glicoingeniería genética y la detección de glicanos puede ayudar a los esfuerzos hacia anticuerpos óptimos. En este estudio de prueba de concepto, una célula de ovario de hámster chino productora de IgG sirvió como un huésped ideal para optimizar la glucoingeniería. El ARN de interferencia corta dirigido al gen Fut8 se entregó a las células de ovario de hámster chino, y se cuantificaron los cambios resultantes en la expresión de la proteína FUT8. Los resultados indican que el derribo por este método fue eficiente, lo que llevó a una reducción de ~ 60% en FUT8. El análisis complementario del glicoperfil de anticuerpos se realizó mediante una técnica rápida pero altamente sensible: electroforesis capilar en gel y detección de fluorescencia inducida por láser. Todos los experimentos de derribo mostraron un aumento en los glicanos afucosilados; sin embargo, el mayor cambio logrado en este estudio fue de ~ 20%. Este protocolo simplifica los esfuerzos de glicoingeniería al aprovechar las herramientas de diseño in silico , los reactivos dirigidos a genes sintetizados comercialmente y los ensayos de cuantificación rápida que no requieren una amplia experiencia previa. Como tal, las eficiencias de tiempo ofrecidas por este protocolo pueden ayudar a las investigaciones sobre nuevos objetivos genéticos.
Introducción
La glicosilación ligada a N es un proceso enzimático por el cual las fracciones de oligosacáridos se unen covalentemente a los residuos de Asn. A diferencia de la síntesis de proteínas de novo, la síntesis de glicanos es una reacción sin plantillas que resulta en una glicosilación heterogénea de las proteínas. La estructura, composición y distribución de los glicanos pueden afectar la conformación y función de las proteínas. De hecho, la N-glicosilación en la región del fragmento cristalizable (Fc) de la inmunoglobulina G (IgG) regula la eficacia terapéutica, la inmunogenicidad y la vida media del anticuerpo1. Como tal, el paradigma de calidad por diseño (QbD) para el desarrollo de productos proteicos bioterapéuticos recombinantes identifica naturalmente la glicosilación como un atributo de calidad crítico (CQA)2,3. Las células de mamíferos son a menudo los sistemas de expresión preferidos, ya que producen inherentemente patrones de glicosilación similares a los humanos más cerca que las bacterias, levaduras, insectos o células vegetales. Además, las células de ovario de hámster chino (CHO) se seleccionan sobre otras líneas celulares de mamíferos porque son resistentes a la infección por virus humanos, secretan productos en títulos altos y se pueden cultivar en cultivo en suspensión a altas densidades celulares viables4. Con respecto a la formación de glicanos, las células de producción murina no CHO generan glicanos inmunogénicos (galactosa ligada a la α(1-3)[α(1-3)-Gal] y ácido N-glicolilneuramínico [NeuGc]) que inciden en el uso seguro de anticuerpos monoclonales (mAbs)5. Estos beneficios convierten a las células CHO en el principal sistema de expresión, responsable de la producción de más del 80% de los nuevos bioterapéuticos entre 2014 y 20186. Sin embargo, la glicosilación independiente de la plantilla es un mecanismo conservado que conduce a la bioterapéutica derivada de CHO con una serie de glicoformas.
Las estrategias de desarrollo bioterapéutico tienen como objetivo controlar la heterogeneidad en las células CHO mediante ingeniería genética. Algunos ejemplos de literatura incluyen la eliminación de sialidasas (Neu1, Neu3)7, GDP-manosa 4,6-deshidratasa (GMD) knockout8, y la sobreexpresión de glicosiltransferasas (GnTIII)9. Los avances en la glicoingeniería son posibles gracias a una combinación de recursos disponibles públicamente, como el genoma CHO10, y el desarrollo continuo de herramientas de ingeniería genética, como las nucleasas efectoras similares a activadores de transcripción (TALEN), las nucleasas de dedos de zinc (ZFN) y la proteína 9 asociada a repeticiones palindrómicas cortas agrupadas regularmente interespaciadas (CRISPR)11,12,13,14 . Estas herramientas generalmente se administran a las células CHO como ADN plásmido o como complejos de ribonucleoproteína purificada (RNP). Por el contrario, la interferencia de ARN (ARNi) es una tecnología de ingeniería genética que, en su forma más simple, solo requiere la entrega de oligonucleótidos de ARN interferente corto (siRNA) purificados. Las proteínas endógenas procesan el siRNA de doble cadena en hebras simples, y la nucleasa, el complejo silenciador inducido por ARN (RISC), forma un complejo con siRNA para escindir secuencias de ARNm objetivo 15,16,17. El silenciamiento de genes a través de este método es transitorio debido a la inestabilidad del ARN, pero la investigación aquí aprovecha esta característica para ayudar a la detección rápida.
La enzima modelo seleccionada para el estudio actual, la α1,6-fucosiltransferasa (FUT8), produce N-glicanos con L-fucosa ligada al núcleo α-1,6 (Fuc). Esta modificación es un determinante primario de la actividad de la citotoxicidad celular dependiente de anticuerpos (ADCC), como lo demuestran los estudios de anticuerpos comerciales. En ausencia de fucosilación central, Rituximab (anti-CD20 IgG1) aumenta ADCC 50 veces y aumenta ADCC en Trastuzumab (anti-Her2 IgG1) al mejorar la unión a FcgRIIIa18,19. Por lo tanto, la fucosilación del núcleo se considera una característica indeseable de los mAbs que justifica los esfuerzos para revertir este fenotipo. Hay ejemplos de dianas exitosas del gen Fut8 utilizando siRNA con aumentos concomitantes en ADCC 20,21,22, aunque estos ejemplos entregan siRNA Fut8 codificado en ADN plásmido. Tales experimentos generan silenciamiento génico estable, ya que el ADN plásmido sirve como plantilla para la síntesis de siRNA. Esto permite a las células reponer las moléculas de siRNA que son degradadas por las RNasas intracelulares y las fosfatasas. Por el contrario, la entrega de siRNA sintético exógeno solo permite el silenciamiento génico transitorio, ya que el siRNA no se puede reponer debido a la falta de una plantilla intracelular. Por lo tanto, los usuarios deben considerar si los diseños experimentales son compatibles con el siRNA sintético o derivado de plásmidos. Por ejemplo, los estudios centrados en el pico de producción de mAb, típicamente el sexto día del cultivo23,24, pueden optar por siRNA sintético que se puede administrar a las células unos días antes de la expresión máxima. Los beneficios de un enfoque transitorio que utiliza siRNA sintético incluyen la capacidad de externalizar la producción y el hecho de que se pueden generar múltiples construcciones de siRNA en una fracción del tiempo necesario para generar construcciones en plásmidos. Además, el siRNA sintético es eficaz, como lo demuestran los ejemplos bibliográficos de silenciamiento del gen Fut8 que son suficientes para reducir la expresión de la proteína FUT825 y producir IgGs afucosiladas con mayor unión a FCgRIIIa y ADCC26.
El éxito de este protocolo de gliconingeniería fue determinado por el grado de glicosilación Fc. La espectrometría de masas es normalmente el método de elección para los análisis glucómicos; sin embargo, la electroforesis capilar en gel y la detección de fluorescencia inducida por láser (CGE-LIF) son perfectamente susceptibles de resolver el glicoperfil de igG purificados y tienen la ventaja de una mayor rapidez y simplicidad. Los protocolos de espectrometría de masas deben combinar los métodos cromatográficos y de derivatización adecuados, las fuentes de ionización y los analizadores de masas 27,28,29. Además de requerir un especialista capacitado, los protocolos de espectrometría de masas son largos y la diversidad de métodos hace que los datos sean difíciles de comparar entre laboratorios con diferentes configuraciones. En el contexto de los productos biofarmacéuticos, CGE-LIF es un método sensible que puede proporcionar suficientes detalles de un glicoperfil de anticuerpos y es fácilmente escalable para métodos de alto rendimiento. Para mezclas de baja abundancia y altamente complejas con glicoproteínas mal caracterizadas, las ventajas de la espectrometría de masas podrían permanecer. Sin embargo, el análisis de mAb de alta resolución y alta sensibilidad que ofrece el análisis de N-glicano basado en CGE-LIF sirve como justificación para probar este método. Además, la preparación y el análisis de la muestra se completan en solo unas pocas horas30. Estudios recientes han demostrado que CGE-LIF se puede utilizar para monitorear glicanos derivados de plasma humano31, ratón32 y CHO IgGs33. Estos estudios destacan el uso de CGE-LIF para el análisis de muestras de alto rendimiento y pequeños volúmenes de muestras.
El método CGE-LIF tiene limitaciones que deben tenerse en cuenta. El costo es una barrera significativa para el uso de este y otros dispositivos para el análisis de glicanos. Sin embargo, estos costos son típicos dentro del campo, y se cree que CGE-LIF es una opción rentable34. Los laboratorios con presupuestos más pequeños pueden encontrar más práctico arrendar maquinaria o subcontratar el análisis de muestras. Otra consideración de cualquier método analítico es la repetibilidad. La evaluación de CGE-LIF se realizó utilizando 48 réplicas de la misma muestra que se ensayaron en diferentes días. La desviación estándar relativa por capilar se determinó para la repetibilidad intrabatch e interbatch. Se encontró que la comparación intrabatch de réplicas tenía una desviación estándar relativa de 6.2%, lo que indica que el rendimiento capilar no es uniforme. Además, una comparación de los datos de entrelazado mostró una desviación estándar relativa del 15,8%31, lo que indica que el rendimiento capilar cambia con el tiempo. Las deficiencias operativas identificadas pueden no aplicarse en el presente estudio, que utiliza diferentes maquinarias y reactivos patentados. Si los usuarios tienen la intención de desarrollar un protocolo interno, valdría la pena considerar el estudio de Ruhaak et al. 31, que evaluó cuidadosamente los reactivos para CGE-LIF. Como tal, se han optimizado los reactivos para inyección de muestra (Hi-Di Formamida y DMSO), etiquetado de glicanos (NaBH3CN o 2 picoline borane)31 y otros.
Este estudio presenta un protocolo de glicoingeniería eficiente en el tiempo que combina la rapidez del ARNi directo con el análisis glucómico aguas abajo. La metodología se ilustra utilizando el gen Fut8 como objetivo por las razones descritas anteriormente.
Protocolo
1. Diseño y reconstitución de DsiRNA
- Utilice Safari, Firefox o Microsoft Edge para acceder al sitio web de IDT (https://eu.idtdna.com). En la página de inicio, seleccione la pestaña Productos y servicios seguida de interferencia de ARN. Para generar construcciones personalizadas de sustratos de dador (DsiRNA) dirigidas al gen Fut8 , seleccione La herramienta Diseño seguida de la pestaña Generar DsiRNA personalizado .
- Ingrese el Número de Acceso Fut8 o ingrese manualmente la secuencia de genes para comenzar. En este estudio, las secuencias Fut8 propuestas de las entradas "CHO-K1" y "Chinese Hamster" se obtuvieron de https://chogenome.org y se utilizaron para generar DsiRNA. La mayoría de los genes tienen varias variantes de transcripción, y es importante verificar que DsiRNA estaría activo en todas las variantes reportadas en el ensamblaje actual.
- Seleccione la opción para realizar una búsqueda "BLAST manual" ya que el genoma de la célula CHO actualmente no está disponible como un "genoma de referencia" en el sitio web de IDT. Este paso busca coincidencias entre las secuencias personalizadas de DsiRNA y el genoma de interés.
- Haga clic en Buscar para generar secuencias de DsiRNA.
- A su vez, evalúe la especificidad de cada DsiRNA utilizando la función "Blast manual" con el número de identificación fiscal: 10029 (líneas celulares CHO y hámster chino). Los resultados de la cobertura de la consulta indican que las construcciones de DsiRNA coinciden con Fut8 (incluidas las variantes de transcripción de Fut8 ) al 100%, mientras que la complementariedad contra objetivos no deseados es ≤76%35.
- Verifique que el DsiRNA se dirija específicamente a Fut8 para garantizar que el contenido de GC esté entre el 30% y el 50%. Un bajo contenido de GC se asocia con una unión débil e inespecífica, mientras que un alto contenido de GC inhibe el desenrollamiento y la carga de siRNA en el complejo RISC36.
- Seleccionar tres DsiRNA para su uso en estudios de transfección (Tabla 1), cada uno dirigido a una ubicación diferente del gen Fut8 . Compre un DsiRNA prediseñado no dirigido o codificado de IDT para experimentos de control.
- A su llegada, centrifugar el DsiRNA a 13.300 x g durante 1 min para granular antes de abrir el tubo. Reconstituir cada DsiRNA liofilizado en tampón dúplex libre de nucleasa (proporcionado por IDT) a una solución madre de 100 μM. Por ejemplo, agregue 20 μL de tampón a 2 nmol de DsiRNA para obtener un stock de 100 μM.
- Para garantizar una mezcla suficiente, incube las soluciones madre a temperatura ambiente durante 30 minutos mientras agita suavemente en un agitador orbital (50 rpm, órbita de 16 mm).
- Cree una mezcla maestra combinando 20 μL de cada construcción de DsiRNA que se dirija a Fut8 (100 μM de cada DsiRNA). Preparar alícuotas y conservar a -20 °C.
| Diana DsiRNA | Secuencia | GC (%) | ||
| Estructura A | 5' GAGAAGAUAGAAACAGUCAAAUACC 3' | 36% | ||
| 5' GGUAUUUGACUGUUUCUAUCUUCUC 3' | ||||
| Estructura B | 5' AGAAUGAGAAUGGAUGUUUUUCCTT 3' | 32% | ||
| 5' AAGGAAAAACAUCCAUUCUCAUUCUGA 3' | ||||
| Estructura C | 5' AGAGAAGAUAGAAACAGUCAAAUAC 3' | 32% | ||
| 5' GUAUUUGACUGUUUCUAUCUUCUCG 3' | ||||
Tabla 1. Secuencias de DsiRNA utilizadas para el derribo de Fut8. Secuencias generadas por IDT que se dirigen a Fut8 en genomas de células de hámster chino y CHO K1. Se muestran las secuencias de sentido y antisentido para cada constructo (respectivamente), y se muestra el contenido GC de cada estructura. Reimpreso de Kotidis et al. 52.
2. Transfección de DsiRNA
- Revivir células CHO expresando un anticuerpo monoclonal IgG37 utilizando condiciones de cultivo adecuadas para la línea celular de interés.
NOTA: Las células utilizadas en este estudio se generaron utilizando el sistema de glutamina sintetasa (GS), donde la GS endógena es inhibida por la L-metionina sulfoximina (MSX) para mejorar la selección de clones raros de alta producción. Por lo tanto, solo use MSX si lo requiere la línea celular de su elección.- Descongelar un vial de células durante 2-3 min en un baño de agua a 37 °C. Limpie el exterior del vial con etanol al 70% (v/v) y continúe todo el trabajo en un gabinete de bioseguridad de clase II.
- Transfiera la suspensión celular a un tubo centrífugo de 15 ml que contenga 9 ml de medio precalentado apropiado para la línea celular de elección. Pellet las células por centrifugación a 100 x g durante 5 min.
- Retire y deseche cuidadosamente el medio sin perturbar el pellet celular. Luego, vuelva a suspender la bolita celular en 10 ml de medio precalentado y tome una alícuota para contar.
- Manche las células con azul de tripano si cuenta con un hemocitómetro, o una tinción apropiada para distinguir las células vivas / muertas cuando se utiliza un contador de células automatizado.
- Siguiendo cualquiera de los métodos de enumeración, transfiera un volumen apropiado de suspensión celular a un matraz de agitación Erlenmeyer de 125 ml a una densidad celular viable de 3 x 10⁵ células·mL-1 en 30 ml de medio (con suplementación opcional de 50 μM MSX).
- Transfiera las células a una incubadora a 36,5 °C, 5% de CO2 y colóquelas en una plataforma de agitación a 150 rpm (órbita de 16 mm).
- Pasa las células cada 3-4 días a una densidad de siembra de 2 x 10⁵ células·mL-1 y un volumen de trabajo de 50 mL en un matraz de agitación Erlenmeyer de 250 mL. Si usa MSX, suspenda la suplementación después del primer pasaje.
- Células de paso 2x además de la descongelación.
- Transfección
- Evaluar la densidad celular y asegurarse de que la viabilidad celular sea superior al 90%.
- Limpie cuidadosamente el gabinete de bioseguridad y todo el equipo con etanol al 70% (v / v) y una solución inhibidora de la RNasa para evitar la contaminación.
- Células de pellets a 100 x g durante 5 min y resuspend en medio precalentado a una densidad celular viable de 5 x 10⁶ células·mL-1.
- Transfiera 8 μL (equivalente a 1 μM) de la mezcla maestra de DsiRNA o control a una cubeta de electroporación estéril (0,4 cm). Luego, transfiera 800 μL de la suspensión celular (equivalente a 4 x 10⁶ celdas) a la misma cubeta y asegúrese de que ambos componentes estén mezclados.
- Entregue las siguientes condiciones de pulso: 1200 V, 0.1 ms, forma de onda cuadrada.
- Transfiera la suspensión celular de la cubeta a un pocillo de una placa de 6 pocillos, teniendo cuidado de evitar el material similar a la espuma. Recuperar las células en la incubadora (36,5 °C, 5% CO2) sin agitar durante 10 min.
- Agregue 800 μL de medios precalentados para hacer un volumen final de 1,6 ml por pozo y devuelva las células transfectadas a la incubadora para su crecimiento (36,5 ° C, 5% CO2) mientras se agitan a 150 rpm (órbita de 16 mm).
- Cosecha los sobrenadantes y las células a las 48 h después de la transfección.
Punto de parada: El sobrenadante de cultivo celular se puede mantener a -20 °C; sin embargo, es aconsejable que la lisis celular se realice inmediatamente después de la recolección de pellets celulares para evitar la degradación de proteínas. Los sobrenadantes se usan en el Paso 3, Paso 4 y Paso 5, mientras que los gránulos celulares se usan en el Paso 6.
3. Cuantificación y purificación de IgG
- Mida la concentración de IgG utilizando interferometría de biocapa u otro método de elección.
- Hidratar la proteína Un biosensor puntilla en la muestra del diluyente durante 10-30 min. Mientras tanto, transfiera las suspensiones celulares a tubos de centrífuga de 15 ml y celdas de pellets a 100 x g durante 5 minutos o elimine las células por filtración a través de un filtro de nitrocelulosa de 0,45 μm.
- Sin molestar el pellet, transfiera cuidadosamente el sobrenadante aislado que contiene IgG a un tubo de centrífuga limpio.
- Utilice los siguientes ajustes para la interferometría biocapa: velocidad del agitador, 2200 rpm; duración, 60 s. Estos parámetros se utilizarán para medir todas las muestras y controles.
- Una vez que las puntas del biosensor estén hidratadas, cree una curva estándar utilizando un estándar IgG (4 μL de cada concentración).
- Cuantificar las concentraciones de la muestra cargando 4 μL del sobrenadante celular. Limpie el aparato con toallitas sin pelusa entre cada muestra.
- Vincule la curva estándar a las muestras desconocidas para interpolar la velocidad de unión de las muestras desconocidas. Guarde los datos y expórtelos como un archivo csv o PDF.
- Purificación de IgG
- Preparar tampón de elución que contenga 0,2 M de glicina (pH 2,5) y esterilizar pasando por un filtro de 0,22 μm.
- Filtre 1 ml del sobrenadante aislado a temperatura ambiente utilizando tubos de filtro de microcentrífuga de 0,22 μm hasta que fluya todo el sobrenadante.
- Pellet 150-200 μL de perlas de agarosa de proteína A en tubos de centrífuga de 1,5 ml a 100 x g durante 3 min y desechar el sobrenadante. Luego, lave las perlas de proteína A con 150-200 μL de medio de cultivo celular y repita la centrifugación. Deseche el sobrenadante.
- Resuspender las perlas de proteína A equilibradas con 1 ml de los sobrenadantes preparados de la etapa 3.2.3. y cargar en un tubo de polipropileno de 1 ml. Fije el tubo de polipropileno a un mezclador rotativo (órbita de 15 mm) y gire a 30 rpm durante 60-90 min a temperatura ambiente o durante la noche a 4 °C.
- Después de que se complete la incubación, recoja el flujo y lave las perlas con 1 ml de 1x PBS para eliminar cualquier proteína no unida. Recoge también la fracción de lavado.
- Elute IgG de la proteína A perlas añadiendo 3 ml de tampón de elución a la columna de polipropileno. Recolecte fracciones secuenciales que drenan de la columna (500 μL cada una) en tubos etiquetados.
- Opcional: Si se va a almacenar el anticuerpo purificado, neutralice el tampón de elución agregando 25 μL de 1 M Tris pH 9.5. Omita este paso si el anticuerpo se procesará inmediatamente a través del intercambio de búfer, etc.
NOTA: Todas las partes de la purificación (flujo, lavados y todas las fracciones de elución) deben mantenerse asegurando que la proteína objetivo no se pierda. Estas muestras también pueden ayudar durante la solución de problemas si la purificación no se realiza correctamente. - Utilice la primera elución (elución A) para el procesamiento posterior, pero conserve todas las demás fracciones en caso de que sean necesarias en el futuro.
4. Intercambio de tampón y concentración de la muestra
- Intercambie búfer de elución IgG con 1x PBS.
- Elución de carga A en un concentrador centrífugo de corte de peso molecular de 3 kDa. Consulte la guía del fabricante al seleccionar una columna MWCO adecuada. En este experimento, un tamaño de poro más pequeño asegura la máxima retención de la proteína secretada, pero también aumenta el tiempo de centrifugación.
- Centrifugar a 13.300 x g durante 40-50 min a 4 °C. La centrifugación se completa una vez que el volumen residual es igual o inferior a 50 μL.
- Deseche el flujo continuo y agregue 500 μL de 1x PBS prechileado (4 °C) para diluir el sobrenadante residual. Centrifugar la muestra de nuevo utilizando las mismas condiciones (13.300 x g durante 40-50 min a 4 °C) hasta que queden 50 μL de sobrenadante residual.
- Añadir 500 μL de PBS prechileado (4 °C) para diluir el sobrenadante residual y repetir de nuevo el proceso de centrifugación para obtener una dilución 100x del sobrenadante.
- Concentra el sobrenadante a una concentración final de ~2.5 g· L-1 en 40 μL o menos para garantizar la compatibilidad con el método de análisis de glicanos.
NOTA: Es necesario cargar 100 μg para el análisis de glicanos.
Punto de parada: La IgG concentrada (en 1x PBS) puede almacenarse a -20 °C y descongelarse antes del análisis de glicanos.
5. Análisis de glicanos
- Realice análisis de glicanos utilizando electroforesis de gel capilar de acuerdo con las instrucciones del fabricante.
- Transfiera 200 μL de la solución de perla magnética a un tubo de PCR de 0,2 ml y colóquela en el soporte magnético para separar las perlas del sobrenadante.
- Retire con cuidado el sobrenadante y retire los tubos del soporte magnético. Agregue la muestra de proteína purificada y el vórtice para garantizar una mezcla completa.
- Añadir tampón de desnaturalización (suministrado) al tubo de muestra e incubar durante 8 min a 60 °C. Mantenga los tubos de muestra abiertos para un rendimiento de reacción óptimo.
- Añadir PNGase F (500 unidades por muestra) e incubar durante 20 min a 60 °C para separar los glicanos de los anticuerpos purificados.
- Después de la liberación de N-glicanos, cierre el tubo de muestra y el vórtice. Agregue acetonitrilo, vórtice e incube a temperatura ambiente durante 1 min.
- Coloque los tubos de muestra en el soporte magnético para separar las perlas de la solución. Use una pipeta para quitar cuidadosamente el sobrenadante sin tocar las cuentas.
- En una campana extractora de humos, agregue la solución de etiquetado de glicanos que contiene un fluoróforo a la muestra. Vórtice para asegurar una mezcla suficiente e incubar a 60 °C durante 20 min (tapas abiertas).
- Lave la muestra 3 veces en acetonitrilo para eliminar el exceso de tinte. Luego, eluya los glicanos etiquetados en agua DDI (suministrada).
- Coloque el tubo de muestra en el soporte magnético para separar las perlas del sobrenadante que contiene glicanos purificados y etiquetados.
- Prepare y cargue el estándar de escalera de glucosa, los estándares de horquillado y las muestras en las posiciones de bandeja designadas. Ejecute el protocolo de análisis de glicanos.
- Utilice el software adecuado para analizar e identificar los glicanos presentes en la muestra.
NOTA: Asegúrese de que la temperatura en el bloque de calor sea precisa para una incubación eficiente.
6. Western blot
- Cuantificar la eficiencia de derribo utilizando el análisis de western blot con un anticuerpo anti-α-1,6-fucosiltransferasa. Los geles de poliacrilamida y las recetas tampón están disponibles en proveedores comerciales38,39.
- A las 48 h después de la transfección, cuente las células utilizando un hemocitómetro o un contador celular automatizado y determine el volumen de suspensión celular equivalente a 5 x 10⁶ células.
- Transfiera el volumen apropiado de suspensión celular de cada condición experimental a un tubo de centrífuga estéril de 1,5 ml y un pellet a 13.200 x g durante 10 min a 4 °C. Deseche el sobrenadante.
- Lisar las células con 200 μL de tampón de lisis (adecuado para la extracción de proteínas de células de mamíferos) que contienen un cóctel inhibidor de la proteasa al 1% v/v a temperatura ambiente durante 10 min. Agite la mezcla suavemente durante la incubación (50 rpm, órbita de 16 mm).
- Para eliminar los desechos celulares, centrífuga el lisado a 13,200 x g durante 10 min y luego transfiera el lisado despejado a un tubo estéril de 1.5 ml.
- Mida la concentración de proteínas de cada lisado utilizando un espectrofotómetro a 280 nm. Posteriormente, preparar alícuotas de cada muestra ajustadas para tener la misma concentración de proteínas.
- Desnaturalizar las muestras de proteínas por incubación a 100 °C durante 10-15 min en colorante de carga de muestras DTT-SDS; la concentración final de colorante es 1x.
- Cargue 15 μL de las muestras desnaturalizadas y 5 μL de escalera de proteínas preteñidas en un gel SDS-PAGE con gel de resolución al 12,5% para una separación eficiente. Pase las muestras a 25 mA por gel durante 90 minutos o hasta que el frente del tinte llegue al final del gel.
- Retire cuidadosamente el gel del cassette e incube en 1x tampón de transferencia que contenga metanol.
- Prepare el sistema de transferencia húmeda y active una membrana de PVDF con metanol. Ensamble el gel y la membrana de PVDF para la transferencia húmeda, coloque un bloque de hielo en el tanque de transferencia y sumerja todo el tanque en hielo para garantizar que las condiciones de transferencia permanezcan frías. Funciona a 350 mA/100 V durante 60 min.
- Bloquee la membrana incubando en una solución de bloqueo durante 30 minutos a temperatura ambiente mientras agita suavemente en un agitador orbital a 50 rpm (órbita de 16 mm).
- Enjuague la membrana con agua estéril durante 5 minutos y repita. Luego, use un bisturí limpio para cortar cuidadosamente la membrana horizontalmente a ~ 50 kDa, utilizando la escalera de proteína visible como guía.
- Incubar la membrana que alberga proteínas mayores de 50 kDa con anticuerpos anti-α-1,6-fucosiltransferasa a 1:1000 en un tampón de diluyente de anticuerpos. Incubar la membrana con proteínas inmovilizadas de menos de 50 kDa con anti-GAPDH a 1:10.000 en tampón diluyente. Las membranas pueden incubarse durante 1 h a temperatura ambiente o durante la noche a 4 °C.
- Lave las membranas durante 5 min (x3) y luego incube con un anticuerpo secundario apropiado durante al menos 30 min a temperatura ambiente.
- Realice 3x lavados con un tampón de lavado durante 5 min, seguido de 3x lavados con agua. Luego, desarrolle la membrana con un sustrato cromogénico (o un reactivo de detección apropiado) hasta que aparezcan las bandas (1-60 min).
- Enjuague la membrana 2 veces con agua y luego deje que se seque. Captura una imagen de la membrana y realiza análisis densitométrico40.
- Para calcular la expresión relativa de proteínas en cada muestra, primero calcule la relación de la señal GAPDH en las muestras. Este es el factor de normalización para cada muestra que corrige las discrepancias en la carga de la muestra.
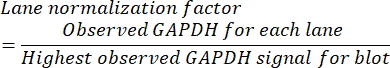
- Divida la intensidad de la señal FUT8 (para cada carril) por el factor de normalización del carril correspondiente para obtener la expresión relativa de la proteína FUT8.
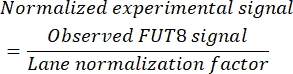
Resultados
El análisis de Western blot mostró una reducción de la expresión de la proteína FUT8 en células transfectadas con una mezcla de tres construcciones de DsiRNA Fut8 . En muestras de control transfectadas con DsiRNA no dirigido, FUT8 apareció como una doble banda a ~ 65 y 70 kDa. Dado que el peso molecular previsto de FUT8 es de 66 kDa, una reducción en la intensidad de la señal de la banda de menor peso molecular es indicativa de silenciamiento génico. Para confirmar y cuantificar el silenciamiento génico, el nivel de proteína FUT8 se normalizó al nivel relativo de proteína GAPDH. El análisis de Western blot detectó dos bandas para GAPDH a ~37 y 35 kDa. La banda de mayor peso molecular corresponde al tamaño de proteína predicho y, por lo tanto, se utiliza en los cálculos de normalización. Cuando se normalizó contra los niveles de proteína GAPDH, la expresión de la proteína FUT8 se redujo hasta en un 60% (Figura 1).
En línea con la observación de la eliminación de genes a las 48 h después de la transfección, las muestras de mAb correspondientes se procesaron para su análisis por CGE-LIF. Las estructuras de glicanos de las células de derribo mostraron una disminución en la fucosilación. Esta tendencia fue más pronunciada en estructuras agalactosiladas (G0F) y observada en menor medida en estructuras galactosiladas (G1F, G1F' y G2F). A partir de este conjunto de datos, la fucosilación total del núcleo igG disminuyó a ~ 75%, por debajo de ~ 95% de fucosilación del núcleo observada para la condición de control negativa (Figura 2). Se anticipó una mayor reducción en la fucosilación del núcleo dada la disminución de ~ 60% en los niveles de proteína FUT8. Tras la reflexión, cabe destacar que el glicoperfil representa mAbs glicosilados que se acumularon durante un período de 48 h desde la transfección, mientras que el silenciamiento génico representa los niveles de proteína presentes solo en el momento de la recolección.
Un mayor escrutinio de este método de derribo implicó variar la concentración de DsiRNA, el tiempo de cosecha y las condiciones de electroporación. Cada factor fue sondeado individualmente para determinar su relevancia. El impacto de las condiciones de pulso de electroporación en la fucosilación del núcleo y la viabilidad celular se captura en los experimentos B, C, D y E. Estos resultados demuestran una reducción de dos veces en la fucosilación del núcleo por electroporación utilizando dos pulsos de onda cuadrada (Experimento C) en comparación con un solo pulso de onda cuadrada (Experimento B), sin diferencias significativas en la viabilidad celular (Tabla 2). La condición de electroporación e3 (Experimento D) condujo a la viabilidad de celda más baja (~ 90%) y al rendimiento de IgG en este punto de tiempo. Sin embargo, las células que sobrevivieron al evento de electroporación fueron moderadamente transfectadas, como lo demuestra la disminución de ~ 10% en la fucosilación del núcleo (Tabla 2). Curiosamente, el Experimento D utilizó condiciones de electroporación que proporcionaron la mayor reducción en la fucosilación del núcleo (14,7%), pero fueron evidentemente perjudiciales para la viabilidad celular (91% -93% de viabilidad). Este conjunto limitado de experimentos ilustra la necesidad de determinar los ajustes de electroporación que permitan una permeabilización suficiente de la membrana celular sin causar daños irrevocables. También es interesante observar el papel de la concentración de siRNA y el tiempo de cosecha en la fucosilación del núcleo. En general, el aumento de la concentración de siRNA tiene una mayor influencia en la fucosilación del núcleo que el aumento del tiempo de cosecha (Experimentos B, F, G versus Experimentos A, B, H). En futuros experimentos, sería interesante valorar las concentraciones de siRNA entregadas por el método de electroporación e2.
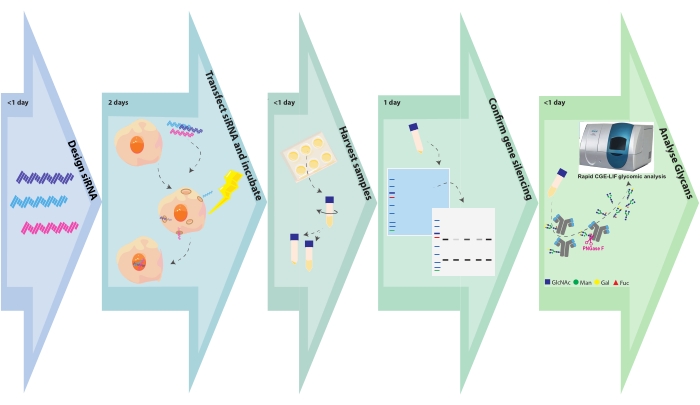
Figura 1. Diagrama de flujo experimental. Los pasos de glicoingeniería y análisis de muestras se representan con el tiempo asociado requerido para cada paso. El diseño de SiRNA toma unas pocas horas, dependiendo del número de objetivos o construcciones de genes por objetivo genético. La transfección de células CHO con siRNA se completa en unas pocas horas, y las células transformadas se dejan crecer durante 48 h. Los gránulos celulares y los sobrenadantes se cosechan en unas pocas horas. Los gránulos celulares se lisan, y las proteínas intracelulares se separan en un SDS PAGE y posteriormente se borran y se sondean con anticuerpos contra el gen objetivo. Los glicanos se separan de los anticuerpos purificados y se analizan por CGE-LIF. Estos ensayos pueden requerir 1 día cada uno. Haga clic aquí para ver una versión más grande de esta figura.
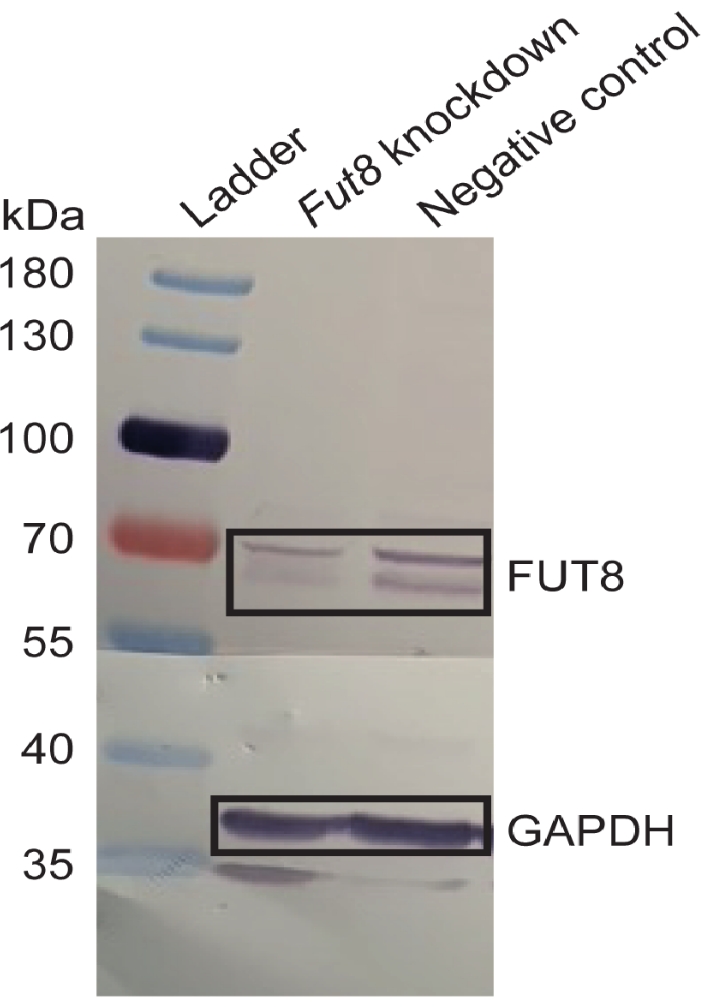
Figura 2. Confirmación de la interferencia de ARN. Detección de Western blot de los niveles de proteína α-1,6-fucosiltransferasa (FUT8) en muestras tratadas con Fut8 o DsiRNA de control no dirigido. Las bandas correspondientes a FUT8 son más intensas en control que las muestras de derribo de Fut8. También se evaluó el nivel de proteína GAPDH para normalizar la expresión génica objetivo. Todas las muestras fueron tomadas del Experimento G (ver Tabla 2). Reimpreso de Kotidis et al. 52. Haga clic aquí para ver una versión más grande de esta figura.
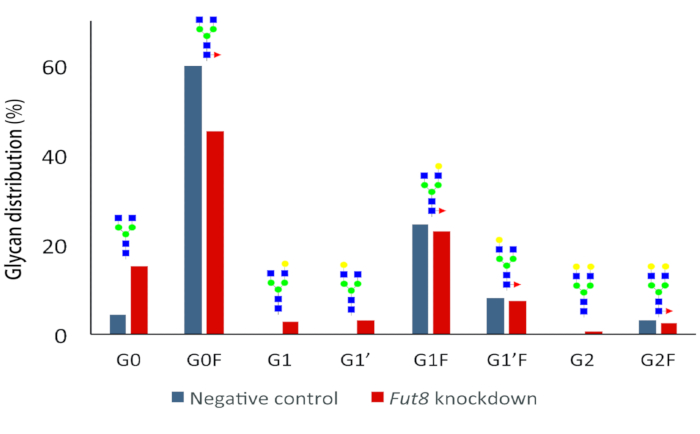
Figura 3. Efecto del knockdown de Fut8 sobre la glicosilación acumulativa de IgG a las 48 h. Se detecta un cambio en la distribución de glicanos en las muestras de derribo. En particular, la abundancia relativa de las principales estructuras fucosiladas del núcleo (G0F) se reduce mientras que las especies afucosiladas aumentan en el experimento de derribo. Las mediciones se realizaron a partir de muestras del Experimento G (ver Tabla 2). Los triplicatos biológicos realizados para cada experimento se mezclaron después de la cosecha para reducir la carga del análisis aguas abajo. Reimpreso de Kotidis et al. 52. Haga clic aquí para ver una versión más grande de esta figura.
| Nombre del experimento | Método de electroporación | Concentración de DsiRNA (nΜ) | Tiempo de cosecha (h) | Viabilidad (%) | Xv (106 células·mL-1) | Título de IgG (mg· L-1) | Diferencia en la fucosilación del núcleo (%) | ||||||
| ExpA_Negative | e1 | 500 | 24 | 98.3 | 4.71 | 122.5 | - | ||||||
| ExpA_Knockdown | e1 | 500 | 24 | 98.3 | 4.9 | 110.3 | 4.08 | ||||||
| ExpB_Negative | e1 | 500 | 48 | 95.6 | 9.55 | 453.3 | - | ||||||
| ExpB_Knockdown | e1 | 500 | 48 | 96.7 | 9.61 | 469 | 5.38 | ||||||
| ExpC_Negative | e2 | 500 | 48 | 96.3 | 9.91 | 449.3 | - | ||||||
| ExpC_Knockdown | e2 | 500 | 48 | 96.7 | 11 | 454.6 | 11.42 | ||||||
| ExpD_Negative | e3 | 500 | 48 | 90.6 | 6.25 | 318.5 | - | ||||||
| ExpD_Knockdown | e3 | 500 | 48 | 89.1 | 6.09 | 311.85 | 9.71 | ||||||
| ExpE_Negative | e4 | 500 | 48 | 91.1 | 7.2 | 380.3 | - | ||||||
| ExpE_Knockdown | e4 | 500 | 48 | 93.3 | 7.79 | 422.8 | 14.7 | ||||||
| ExpF_Negative | e1 | 750 | 48 | 96.2 | 9.7 | 501 | - | ||||||
| ExpF_Knockdown | e1 | 750 | 48 | 95.7 | 9.76 | 504.6 | 9.9 | ||||||
| ExpG_Negative | e1 | 1000 | 48 | 96.1 | 11.1 | 422.6 | - | ||||||
| ExpG_Knockdown | e1 | 1000 | 48 | 95.9 | 9.73 | 499.3 | 17.26 | ||||||
| ExpH_Negative | e1 | 500 | 72 | 94.4 | 14.3 | 925.8 | - | ||||||
| ExpH_Knockdown | e1 | 500 | 72 | 95 | 13.5 | 1018.4 | 7.37 | ||||||
Tabla 2. Optimización de la transfección. Las modificaciones iterativas del método de electroporación, la concentración de DsiRNA y el tiempo de cosecha condujeron a cambios en la viabilidad celular, la densidad celular viable, el título de IgG en el momento de la cosecha y las diferencias en la fucosilación del núcleo. Cada experimento comparó el derribo y el control negativo respectivo para determinar si la modificación produce el efecto deseado (es decir, una disminución en la fucosilación). Los ajustes de electroporación fueron los siguientes: e1: 1200 V, 0,1 ms, forma de onda cuadrada; e2: 1200 V, 2x 0,1 ms, 5 s entre pulsos, forma de onda cuadrada; e3: 150 V, 20 ms, forma de onda cuadrada; e4: 250 V, 500 μF, decaimiento exponencial. Reimpreso de Kotidis et al. 52.
Discusión
Las vías de glicosilación implican una compleja red metabólica de enzimas y proteínas accesorias. Diseccionar la función de los constituyentes de la vía es desalentador si depende solo de estrategias convencionales de ingeniería genética de knockout o knockin. Un enfoque alternativo es examinar preliminarmente los miembros de una vía utilizando un ensayo transitorio de pérdida de función. Con este fin, se combinaron dos protocolos rápidos, RNAi y detección de CGE-LIF, para crear una forma más eficiente de caracterizar los genes de glicosilación. El método descrito requiere de 5 a 7 días para su finalización en comparación con los métodos convencionales que potencialmente tardan varias semanas en completarse. Además, los entornos de investigación con capacidades de automatización podrían explotar este método para detectar más candidatos genéticos de lo que es posible con el manejo manual.
El éxito de una campaña transitoria de glicoingeniería depende en gran medida del diseño de siRNA. Los diseños personalizados de DsiRNA deben seguir las reglas descritas anteriormente, o para mayor facilidad, los usuarios pueden optar por secuencias prediseñadas disponibles comercialmente. Al igual que otras estrategias de modificación genética, el ARNi tiene el potencial de efectos fuera del objetivo. Por lo tanto, se anima a los usuarios a evaluar la orientación genética no intencional mediante métodos computacionales41. Las opciones de diseño experimental también pueden ayudar a limitar los efectos fuera del objetivo. Kittler et al. mostraron que la entrega multiplexada de siRNA condujo a una reducción en los efectos fuera del objetivo42. Aunque esto parece contradictorio, se sugiere que una mezcla maestra reduce la concentración de cada construcción de siRNA, limitando así la oportunidad de silenciamiento de genes fuera del objetivo. Otro beneficio es que la transfección simultánea de estructuras de siRNA que se dirigen al mismo gen aumenta la probabilidad de arNi exitoso. El uso de una mezcla maestra también garantiza la consistencia entre las muestras y las réplicas y acelera el proceso de transfección. Después de una selección inicial de construcciones mixtas de siRNA, se puede realizar otro experimento utilizando construcciones individuales para determinar la eficiencia del ARNi de cada secuencia. En este y otros estudios de derribo, se han agrupado hasta tres siRNA y se han entregado a las células 43,44,45. Sin embargo, puede ser deseable detectar más de tres siRNA simultáneamente para dirigirse de manera eficiente a un solo gen o para dirigirse a varios genes. De hecho, un estudio demostró el silenciamiento multiplexado mediado por siRNA de hasta seis genes a niveles comparables al silenciamiento de genes individuales46. Sin embargo, se necesitan más estudios para determinar el número máximo de construcciones de siRNA que se pueden utilizar en un grupo sin comprometer la eficiencia de silenciamiento. La estrategia multiplex fue propuesta por Martin et al. para mejorar el ritmo de los experimentos de detección de bibliotecas de ARNi46, y un concepto similar puede resultar útil para detectar genes de glicosilación.
El protocolo descrito en este documento sirve como una prueba de concepto con la expectativa de que se realicen experimentos posteriores para validar otros genes de glicosilación. Los nuevos genes de interés pueden no ser caracterizados o menos populares que Fut8, y los anticuerpos primarios para detectar el silenciamiento génico pueden ser pobres o no estar disponibles. En este escenario, se pueden utilizar métodos alternativos como la RT-PCR para cuantificar el silenciamiento génico47, pero debe tenerse en cuenta que la RT-PCR detecta el ARNm en lugar de la proteína. Cuando los anticuerpos para el western blotting están disponibles, un problema común es la mala detección o la presencia de bandas no específicas. Hay disponibles guías de solución de problemas para ayudar a los usuarios a resolver problemas comunes, y estas tienden a incluir una variedad de soluciones como la titulación primaria de anticuerpos, el bloqueo alternativo y las condiciones de detección48,49. En este estudio, FUT8 apareció inesperadamente como una banda doble a ~ 65 y ~ 70 kDa. Es posible que la banda de ~70 kDa represente FUT8 glicosilado. La evidencia bibliográfica de líneas celulares humanas describe la glicosilación ligada a O en Thr 564 50,51, un sitio que se conserva en las secuencias de hámster chino, y CHO K1 FUT8.
Como se mencionó anteriormente, las vías de glicosilación a menudo involucran una compleja gama de enzimas. El protocolo actual ha sido desarrollado, optimizado y demostrado utilizando una reacción de glicosilación monogénica controlada por Fut8. Por lo tanto, se requieren más estudios para confirmar la robustez de este método cuando el gen objetivo codifica una enzima con cinética y niveles de expresión alternativos o una vía regulada por isoenzimas con funciones redundantes.
En conjunto, la capacidad de silenciar rápidamente los genes y detectar glicoperfiles IgG modificados es una herramienta útil en el esfuerzo hacia anticuerpos glicofenieros personalizados. Los conocimientos de estudios similares a corto plazo se pueden aplicar para generar células de glicoingeniería estables para su uso en ensayos a largo plazo como el cultivo por lotes alimentados. Fuera del contexto farmacéutico, este método contribuye al estudio de la biología de los glicanos y destaca la importante función de los glicanos en el desarrollo, la salud y la enfermedad.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
PK agradece al Departamento de Ingeniería Química del Imperial College de Londres por su beca. RD agradece al Consejo de Investigación de Biotecnología y Ciencias Biológicas del Reino Unido por su beca. MM está financiado por el Consejo de Investigación de Biotecnología y Ciencias Biológicas del Reino Unido (Referencia de la subvención: BB/S006206/1). IAG agradece al Consejo Irlandés de Investigación (Beca No. GOIPG/2017/1049) y CONACyT (Beca N° 438330).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Software de 32 quilates | SCIEX | contactar con el fabricante | Software para la adquisición y análisis de datos de glicanos utilizando el protocolo de análisis y el método de separación Fast Glycan. |
| Acetonitrilo, solvente | Sigma Aldrich | 34851 | grado |
| Anticuerpo anti-FUT8 | AbCam | ab198741 | Conejo policlonal a Fut8. Utilice este anticuerpo para cuantificar la expresión de la proteína Fut8; reemplace este anticuerpo si usa siRNA dirigido a un gen diferente. |
| Anticuerpo anti-GAPDH | AbCam | ab181602 | Conejo monoclonal para GAPDH. Existen genes alternativos de mantenimiento y podrían ser los preferidos por el usuario. |
| Espectrofotómetro BioDrop | Biochrom | 80 3006 55 | Instrumento utilizado para cuantificar la concentración de proteínas. |
| BLItz | ForteBio | 45 5000 | . Sistema de análisis de proteínas sin etiqueta. |
| MARCA Hemocitómetro | Sigma Alrich | BR717810 | Dispositivo de cámara de recuento |
| Cartucho capilar | SCIEX | A55625 | Cartucho capilar premontado con ventana (30 cm de longitud total, 375 y micro; m diámetro exterior (diámetro exterior), x 50 y micro; m diámetro interior (d.i.). |
| Análisis de glicanos C100HT — electroforesis capilar | SCIEX | fabricante de contactos | El instrumento de electroforesis en gel capilar, ahora se utiliza el instrumento CESI 8000 Plus. |
| CD CHO Medium | Thermo Fisher Scientific | 10743029 | Reemplácelo con un medio de cultivo apropiado para la línea celular de elección. |
| Tubos centrífugos, 15 mL | Greiner Bio | 188261 | Tubo de polipropileno estéril. |
| Tubos centrífugos, 50 mL | Greiner Bio | 227270 | Tubo de polipropileno estéril. |
| CHO IgG | MedImmune | Gift | Hámster chino Células de ovario que expresan un anticuerpo monoclonal IgG (CHO T127). Creado utilizando el sistema GS. |
| Solución salina tamponada con fosfato (DPBS) | Gibco | de | 14190144 1x PBS, sin calcio ni magnesio. |
| Matraces Erlenmeyer con tapa de ventilación, 125 mL | 431143 Corning | Reemplácelo con un recipiente de cultivo adecuado para cultivar la línea celular de su elección. | |
| Matraces Erlenmeyer con tapa de ventilación, 250 mL | 431144 Corning | Reemplácelo con un recipiente de cultivo adecuado para cultivar la línea celular de su elección. | |
| Kit de análisis y etiquetado rápido de glicanos | SCIEX | B94499PTO | etiqueta N-glicanos con APTS y luego utiliza un sistema de limpieza basado en perlas magnéticas para eliminar el exceso de APTS. |
| Fut8 DsiRNA | IDT | Custom | diseñado a medida DsiRNA dirigido a Fut8. |
| Cubetas Gene Pulser, 0,4 cm | Bio-Rad | 1652088 | Cubeta de electroporación. |
| Pulsador de genes Xcell Sistema Eucariota | Bio-RAD | 165 2661 | Insturment. Unidad principal Xcell con extensor de capacitancia (CE) Mocdule y ShockPod. |
| Membrana de PVDF | Merck-Millipore | IPFL00010 | Membrana de transferencia Immunoblot, fondo bajo. |
| L-metionina sulfoximina (MSX) | Sigma Aldrich | M5379 | Solo necesario para líneas celulares CHO que utilizan el sistema de selección de glutamina sintetasa (GS). |
| Kimwipes | Thermo Fisher Scientific | 10623111 | Toallitas con baja pelusa, alta absorbencia y químicamente inertes. |
| M-PER Reactivo de extracción de proteínas de mamíferos | Thermo Fisher Scientific | 78505 | Los tampones de lisis alternativos, como RIPA, también son adecuados. |
| Metanol, solvente | 10365710 | Fisher Scientific | . |
| Tubos de microcentrífuga, | Eppendorf | 616201 | esterilizables en autoclave. |
| Sistema de celda de electroforesis vertical Tetra Mini-PROTEAN | Bio-Rad | 1658035FC | Instrumento. Capacidad de 4 geles, para geles de fundición manual de 1,0 mm de espesor, con módulo Mini Trans-Blot y fuente de alimentación PowerPac HC. |
| NC-Slide A8 | ChemoMetec | 942 0003 | Portaobjetos de 8 cámaras para usar con NucleoCounter NC 250. |
| DsiRNA de control negativo, 5 nmol | IDT | 51 01 14 04 | DsiRNA no dirigido. |
| Tampón dúplex libre de nucleasas | IDT | 11-01-03-01 | Tampón de reconstitución para DsiRNA. |
| NucleoCounter NC-250 | Chemometec | contacta con el fabricante | Instrumento. Analizador de células automatizado |
| Escalera de página-regla, de 10 a 180 kDa | Thermo Fisher Scientific | 26616 | Patrones de proteínas mixtas azules, naranjas y verdes para SDS PAGE y Western blot. |
| Tubos de PCR | Greiner Bio | 608281 | Tubos esterilizables en autoclave para aliqouts de DsiRNA y preparación de glicanos. |
| Puntas de filtro de pipeta esterilizadas (10, 200, 1000 y micro; L) | Gibson | F171203, F171503, F171703 | Puntas de filtro estériles para evitar la contaminación por ARN. |
| Enzima PNGasa F | New England Biolabs | P0704S | Escisión enzimática de glicanos a partir de glicoproteínas. |
| Columnas de polipropileno, 1 mL | Qiagen | 34924 | Columnas para cromatografía de flujo gravitatorio. |
| Cóctel de inhibidores de proteasas | Sigma Aldrich | P8340 | Inhibición de serina, cisteína, proteasas aspárticos y aminopeptidasas |
| Proteína-A Esferas de agarosa | Merck-Millipore | 16 125 | Para la purificación de inmunoglobulinas humanas, de ratón y de conejo. |
| Biosensor de proteína-A | ForteBio | 18 5010 | Puntas funcionalizadas con proteína A para una rápida cuantificación de anticuerpos. |
| RNaseZap | Invitrogen | AM9780 | Elimina la contaminación por ARNasa. |
| Muestra diluyente | ForteBio | 18 1104 | Activate Protein A tips. |
| Pipetas serológicas (5, 10, 25 mL) | Corning | 4487, 4488, 4489 | Se utiliza para técnicas de cultivo de células estériles. |
| Solución de cianoborohidruro de sodio 1 M en THF | Sigma Aldrich | 296813 | Agente reductor. |
| Solución 18 | ChemoMetec | 910-3018 | Reactivo de tinción que contiene naranja de acridina (AO) y 4',6-diamidino-2-fenilindol (DAPI) |
| Filtros de tubo de centrífuga Spin-X | Corning | 8161 | 0,22 y micro; m, membrana de acetato de celulosa. |
| Placa de suspensión con tapa, 6 pocillos | Greiner Bio | 657 185 | Placa de cultivo hidrofóbica para el crecimiento de cultivos en suspensión. |
| Filtros de jeringa, 0.22 μ m | Sartorius | 514 7011 | Acetato de celulosa sin tensioactivos (SFCA) |
| Jeringas con punta Luer Lock, 20 mL | Fisher Scientific | 10569215 | Para una conexión segura con el filtro de jeringa. |
| Solución de Azul | de Tripán Gibco 15250061 | Tiñe las células muertas y moribundas. | |
| Vivaspin 500, 3.000 MWCO | Sartorius | VS0191 | Polietersulfona |
| WesternBreeze Chromogenic Kit, anti-conejo | Thermo Fisher Scientific | WB7105 | Western blot kit de detección de Western blot, tampones de bloqueo alternativos y diluyentes de anticuerpos pueden ser elaborados por el usuario utilizando recetas disponibles en línea. |
Referencias
- Jefferis, R. Glycosylation as a strategy to improve antibody-based therapeutics. Nature Reviews Drug Discovery. 8 (3), 226-234 (2009).
- Rathore, A. S., Winkle, H. Quality by design for biopharmaceuticals. Nature Biotechnology. 27 (1), 26-34 (2009).
- Eon-Duval, A., Broly, H., Gleixner, R. Quality attributes of recombinant therapeutic proteins: An assessment of impact on safety and efficacy as part of a quality by design development approach. Biotechnology Progress. 28 (3), 608-622 (2012).
- Lalonde, M. -E., Durocher, Y. Therapeutic glycoprotein production in mammalian cells. Journal of Biotechnology. 251, 128-140 (2017).
- Mimura, Y., et al. Glycosylation engineering of therapeutic IgG antibodies: challenges for the safety, functionality and efficacy. Protein & Cell. 9 (1), 47-62 (2018).
- Walsh, G. Biopharmaceutical benchmarks 2018. Nature Biotechnology. 36 (12), 1136-1145 (2018).
- Zhang, M., Koskie, K., Ross, J. S., Kayser, K. J., Caple, M. V. Enhancing glycoprotein sialylation by targeted gene silencing in mammalian cells. Biotechnology and Bioengineering. , (2010).
- Kanda, Y., et al. et al. of a GDP-mannose 4,6-dehydratase (GMD) knockout host cell line: a new strategy for generating completely non-fucosylated recombinant therapeutics. Journal of Biotechnology. 130 (3), 300-310 (2007).
- Umaña, P., Jean-Mairet, J., Moudry, R., Amstutz, H., Bailey, J. E. Engineered glycoforms of an antineuroblastoma IgG1 with optimized antibody-dependent cellular cytotoxic activity. Nature Biotechnology. 17 (2), 176-180 (1999).
- Xu, X., et al. et al. genomic sequence of the Chinese hamster ovary (CHO)-K1 cell line. Nature Biotechnology. 29 (8), 735-741 (2011).
- Chan, K. F., et al. et al. of GDP-fucose transporter gene (Slc35c1) in CHO cells by ZFNs, TALENs and CRISPR-Cas9 for production of fucose-free antibodies. Biotechnology Journal. 11 (3), 399-414 (2016).
- Zhang, P., et al. Identification of functional elements of the GDP-fucose transporter SLC35C1 using a novel Chinese hamster ovary mutant. Glycobiology. 22 (7), 897-911 (2012).
- Amann, T., et al. Genetic engineering approaches to improve posttranslational modification of biopharmaceuticals in different production platforms. Biotechnology and Bioengineering. 116 (10), 2778-2796 (2019).
- Karottki, K. J., et al. Awakening dormant glycosyltransferases in CHO cells with CRISPRa. Biotechnology and Bioengineering. 117 (2), 593-598 (2020).
- Fire, A., et al. Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans. Nature. 391 (6669), 806-811 (1998).
- Hammond, S. M., Bernstein, E., Beach, D., Hannon, G. J. An RNA-directed nuclease mediates post-transcriptional gene silencing in Drosophila cells. Nature. 404 (6775), 293-296 (2000).
- Bernstein, E., Caudy, A. A., Hammond, S. M., Hannon, G. J. Role for a bidentate ribonuclease in the initiation step of RNA interference. Nature. 409 (6818), 363-366 (2001).
- Shields, R. L., et al. et al. of fucose on human IgG1 N-linked oligosaccharide improves binding to human FcγRIII and antibody-dependent cellular toxicity. Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. et al. Absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Mori, K., et al. Engineering Chinese hamster ovary cells to maximize effector function of produced antibodies using FUT8 siRNA. Biotechnology and Bioengineering. 88 (7), 901-908 (2004).
- Imai-Nishiya, H., et al. Double knockdown of alpha1,6-fucosyltransferase (FUT8) and GDP-mannose 4,6-dehydratase (GMD) in antibody-producing cells: a new strategy for generating fully non-fucosylated therapeutic antibodies with enhanced ADCC. BMC Biotechnology. 7, 84(2007).
- Beuger, V., et al. et al. silencing of fucosyltransferase 8 in Chinese-hamster ovary cells for the production of antibodies with enhanced antibody immune effector function. Biotechnology and Applied Biochemistry. 53 (1), 31(2009).
- Templeton, N., Dean, J., Reddy, P., Young, J. D. Peak antibody production is associated with increased oxidative metabolism in an industrially relevant fed-batch CHO cell culture. Biotechnology and Bioengineering. 110 (7), 2013-2024 (2013).
- Hussain, H., et al. A comparative analysis of recombinant Fab and full-length antibody production in Chinese hamster ovary cells. Biotechnology and Bioengineering. 118 (12), 4815-4828 (2021).
- Shimoyama, H., et al. Partial silencing of fucosyltransferase 8 gene expression inhibits proliferation of Ishikawa cells, a cell line of endometrial cancer. Biochemistry and Biophysics Reports. 22, 100740(2020).
- Tummala, S., et al. Evaluation of exogenous siRNA addition as a metabolic engineering tool for modifying biopharmaceuticals. Biotechnology Progress. 29 (2), 415-424 (2013).
- Carillo, S., et al. Comparing different domains of analysis for the characterisation of N-glycans on monoclonal antibodies. Journal of Pharmaceutical Analysis. 10 (1), 23-34 (2020).
- Reusch, D., et al. Comparison of methods for the analysis of therapeutic immunoglobulin G Fc-glycosylation profiles-Part 2: Mass spectrometric methods. mAbs. 7 (4), 732-742 (2015).
- Donini, R., Haslam, S. M., Kontoravdi, C. Glycoengineering Chinese hamster ovary cells: a short history. Biochemical Society Transactions. 49 (2), 915-931 (2021).
- Szigeti, M., Chapman, J., Borza, B., Guttman, A. Quantitative assessment of mAb Fc glycosylation of CQA importance by capillary electrophoresis. ELECTROPHORESIS. 39 (18), 2340-2343 (2018).
- Ruhaak, L. R., et al. Optimized workflow for preparation of APTS-labeled N-glycans allowing high-throughput analysis of human plasma glycomes using 48-channel multiplexed CGE-LIF. Journal of Proteome Research. 9 (12), 6655-6664 (2010).
- Patenaude, A. -M., et al. N-glycosylation analysis of mouse immunoglobulin G isolated from dried blood spots. Electrophoresis. 42 (24), 2615-2618 (2021).
- Karst, D. J., et al. Modulation and modeling of monoclonal antibody N-linked glycosylation in mammalian cell perfusion reactors. Biotechnology and Bioengineering. 114 (9), 1978-1990 (2017).
- Dadouch, M., Ladner, Y., Perrin, C. Analysis of monoclonal antibodies by capillary electrophoresis: sample preparation, separation, and detection. Separations. 8 (1), 4(2021).
- Fakhr, E., Zare, F., Teimoori-Toolabi, L. Precise and efficient siRNA design: a key point in competent gene silencing. Cancer Gene Therapy. 23 (4), 73-82 (2016).
- Birmingham, A., et al. A protocol for designing siRNAs with high functionality and specificity. Nature Protocols. 2 (9), 2068-2078 (2007).
- Makrydaki, E., et al. Immobilised enzyme cascade for targeted glycosylation. , (2022).
- Bulletin_6201.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6201.pdf (2022).
- Bulletin_6376.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6376.pdf (2022).
- Dot Blot Analysis. , Available from: https://imagej.nih.gov/ij/docs/examples/dot-blot/index.html (2022).
- Yilmazel, B., et al. Online GESS: prediction of miRNA-like off-target effects in large-scale RNAi screen data by seed region analysis. BMC Bioinformatics. 15 (1), 192(2014).
- Kittler, R., et al. Genome-wide resources of endoribonuclease-prepared short interfering RNAs for specific loss-of-function studies. Nature Methods. 4 (4), 337-344 (2007).
- Stec, E., et al. A multiplexed siRNA screening strategy to identify genes in the PARP pathway. Journal of Biomolecular Screening. 17 (10), 1316-1328 (2012).
- Brown, J. M., et al. Ligand conjugated multimeric siRNAs enable enhanced uptake and multiplexed gene silencing. Nucleic Acid Therapeutics. 29 (5), 231-244 (2019).
- Parsons, B. D., Schindler, A., Evans, D. H., Foley, E. A direct phenotypic comparison of siRNA pools and multiple individual duplexes in a functional assay. PLoS One. 4 (12), 8471(2009).
- Martin, S. E., et al. Multiplexing siRNAs to compress RNAi-based screen size in human cells. Nucleic Acids Research. 35 (8), 57(2007).
- Popp, O., Moser, S., Zielonka, J., Rüger, P., Hansen, S., Plöttner, O. Development of a pre-glycoengineered CHO-K1 host cell line for the expression of antibodies with enhanced Fc mediated effector function. mAbs. 10 (2), 290-303 (2018).
- Yang, P. -C., Mahmood, T. Western blot: Technique, theory, and trouble shooting. North American Journal of Medical Sciences. 4 (9), 429(2012).
- Troubleshooting Western Blots with the Western Blot Doctor. Bio-Rad Laboratories. , Available from: https://www.bio-rad.com/en-uk/applications-technologies/troubleshooting-western-blots-with-western-blot-doctor?ID=MIW4HR15 (2022).
- Steentoft, C., et al. Precision mapping of the human O-GalNAc glycoproteome through SimpleCell technology. EMBO. 32 (10), 1478-1488 (2013).
- FUT8 - Alpha-(1,6)-fucosyltransferase - Proteomics. , Available from: https://www.nextprot.org/entry/NX_Q9BYC5/proteomics (2022).
- Kotidis, P., et al. Rapid antibody glycoengineering in CHO cells via RNA interference and CGE-LIF N-glycomics. Methods in Molecular Biology. 2370, 147-167 (2022).
Reimpresiones y permisos
