Metodą przesiewową służącą do wykrywania utleniającego środowiska wewnątrzkomórkowego jest pomiar utleniania CM-H2DCFDA. Po utlenieniu wewnątrz komórki CM-H2DCFDA zmienia się z związku niewykazującego fluorescencji w związek fluorescencyjny. Zmianę fluorescencji mierzy się za pomocą cytometrii przepływowej, co pozwala określić liczbę komórek znajdujących się w środowisku utleniającym.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Test przesiewowy stresu oksydacyjnego w linii komórkowej astrocytów kotów, G355-5
W tym artykule
Podsumowanie
Streszczenie
Często sugerowanym mechanizmem wirusowego uszkodzenia neuronów jest stres oksydacyjny. Astrocyty pełnią istotną rolę w kontrolowaniu stresu oksydacyjnego w ośrodkowym układzie nerwowym (OUN). Astrocyty pomagają utrzymać środowisko homeostatyczne dla neuronów, a także chronią neurony przed reaktywnymi formami tlenu (RFT). CM-H2DCFDA jest przenikającym przez błony komórkowe wskaźnikiem obecności RFT. CM-H2DCFDA wnika do komórki jako związek niewykazujący fluorescencji, a fluorescencyjny staje się po usunięciu grup octanowych przez esterazy komórkowe i utlenieniu związku. Liczba komórek wykazujących zieloną fluorescencję, mierzona za pomocą cytometrii przepływowej, jest wskaźnikiem liczby komórek znajdujących się w stanie utlenienia. CM-H2DCFDA jest podatny na utlenianie przez liczne, różne gatunki RFT. Ten brak specyficzności w odniesieniu do tego, które RFT mogą utleniać CM-H2DCFDA sprawia, że związek ten jest cennym odczynnikiem do stosowania we wczesnych etapach badania patogenezy, ponieważ test ten może być wykorzystany do przesiewowego wykrywania utleniającego środowiska komórkowego, niezależnie od tego, który rodnik tlenowy lub kombinacja ROS odpowiada za stan komórek. Po ustaleniu obecności ROS poprzez utlenianie CM-H2DCFDA, a następnie można przeprowadzić dodatkowe eksperymenty w celu ustalenia, które ROS lub kombinacje ROS biorą udział w konkretnym procesie patogenezy. Wyniki niniejszego badania wykazują, że po dodaniu nadtlenku wodoru następuje wzrost CM-H2Wykryto fluorescencję DCFDA w stosunku do kontroli solnej, co wskazuje, że analiza ta jest wartościowym testem do wykrywania środowiska oksydacyjnego w komórkach G355-5, linii komórkowej astrocytów kocich.
Protokół
1. Hodowla komórkowa astrocytów kocich i traktowanie H2O2
- Hodować linię komórkową G35-5 w kolbie o powierzchni 75 cm2 w pożywce DMEM z dodatkiem składników odżywczych w temperaturze 37°C i przy 5% CO2 aż do uzyskania 60% konfluencji (˜ 5 dni). Wymieniać pożywkę co 1-2 dni lub w razie potrzeby, aby utrzymać zdrową kulturę.
- Usunąć pożywkę i dodać 2 ml 0,25% trypsyny. Odlepić komórki poprzez pipetowanie przez 45 s - 1 min w temperaturze pokojowej (RT).
- Szybko przenieść zawiesinę do probówki stożkowej o pojemności 15 ml zawierającej 10 ml pożywki. Delikatnie wymieszać.
- Wirować przy 300 x g w temperaturze 23°C przez 3 min, aby uzyskać pellet. Odlać supernatant, nie naruszając pelletu.
- Dodać 6-7 ml świeżej pożywki i resuspender komórki.
- Dodać ˜ 1 ml komórek do każdego dołka płytki 6-dołkowej. Dodać 2-3 ml pożywki do każdego dołka i inkubować do uzyskania 80-90% konfluencji.
- Przygotować 100μM roztwór nadtlenku wodoru (H2O2) w pożywce.
- Usunąć pożywkę z każdego dołka i zastąpić ją albo 2 ml świeżej pożywki (kontrola), 2 ml H2O2 (próba) lub 2 ml DPBS. Inkubować w temperaturze 37°C przy 5% CO2 przez 3 h.
- Usunąć roztwory i dodać 1 ml trypsyny, aby odlepić komórki. Przenieść komórki do probówki Eppendorf o pojemności 1,7 ml zawierającej 0,5 ml DPBS. Krok ten należy przeprowadzać dla każdego dołka oddzielnie, aby zapobiec śmierci komórek w wyniku przedłużonej inkubacji z trypsyną.
- Wirować przy 300 x g przez 3 min, odlać supernatant i resuspender w 1 ml DPBS.
2. Barwienie w celu wykrycia ROS
- Wszystkie etapy barwienia należy przeprowadzać przy minimalnej ekspozycji na światło, aby zapobiec fotoblaknięciu.
- Do kontroli pozytywnej dodać 1 μl 50 mM CCCP. Inkubować w temperaturze 37°C, przy 5% CO2 przez 5 min.
- Do grupy H2O2 dodać 5 μl 10 mM roztworu CM-H2DCFDA. Inkubować w temperaturze 37°C, przy 5% CO2 przez 15-30 min. Do próbki z solą fizjologiczną nie dodaje się barwnika.
- Próbki przemyć 2 ml DPBS w celu usunięcia resztek barwnika.
- Wirować przy 30 x g przez 3 min w celu uzyskania osadu.
- Komórki resuspendować w 0,5 ml DPBS. Do każdej próbki, z wyjątkiem soli fizjologicznej, dodać 1 μl PI.
- Przenieść próbki do probówek do cytometrii przepływowej o pojemności 5 ml.
- Analizować za pomocą cytometru przepływowego.
3. Cytometria przepływowa
- Analizę próbek należy przeprowadzić na cytometrze przepływowym Beckman Coulter FC50 (lub równoważnym), wyposażonym w laser argonowy 48 nm oraz następujące filtry pasmowe: 525, 75 i 620 nm, wszystkie z tolerancją ± 20 nm.
- Przygotować odpowiednie kontrole: komórki niebarwione, barwione tylko CM-H2DCFDA, barwione tylko PI oraz podwójnie barwione (kontrola negatywna).
- Stworzyć protokół zawierający następujące histogramy dwuwymiarowe (dot-ploty): FS vs. SS oraz PI vs. CM-H2DCFDA. Protokół powinien również zawierać następujące histogramy: liczba komórek vs. FL1, FL2 i FL3, odpowiadające poszczególnym barwnikom.
- Przed analizą próbek sprawdzić stan urządzenia, poziomy płynów oraz pojemnik na odpady. Urządzenie należy rozgrzewać przez co najmniej 20 min.
- Oczyścić urządzenie i przeprowadzić kalibrację przy użyciu odpowiednich kulek kalibracyjnych zgodnie ze standardami producenta.
- Wybrać odpowiedni protokół i przeprowadzić analizę próbek.
- Oczyścić urządzenie w sposób opisany wcześniej.
- Oczyścić linię próżni zgodnie ze standardami producenta.
- Wyłączyć przepływ i oczyścić głowicę oraz linię próżni.
- Wyłączyć oprogramowanie oraz komputer.
4. Reprezentatywne wyniki:
Wyniki cytometrii przepływowej przeanalizowano przy użyciu programu FlowJo 7.6, a kontrole barwienia wykorzystano do obiektywnego ustawienia bramkowania. Na tej podstawie zdrowe komórki pojawiają się po lewej stronie histogramu, natomiast ROS (stres oksydacyjny) wykrywano jako przesunięcie komórek w prawo. Rysunek 1 przedstawia wyniki wpływu nadtlenku wodoru na zdrowe astrocyty kocie. Do pomiaru intensywności CM-H2DCFDA, która wskazuje na obecność ROS, wykorzystano dane z kanału FL1. Zgodnie z oczekiwaniami, w próbce traktowanej H2O2 wykryto wyższy poziom ROS. Jest to widoczne na histogramie jako przesunięcie intensywności fluorescencji z lewej strony w prawą. Przy porównaniu zdrowych komórek traktowanych DMEM i DPBS nie stwierdzono istotnych zmian w ilości ROS (Rys. 2).
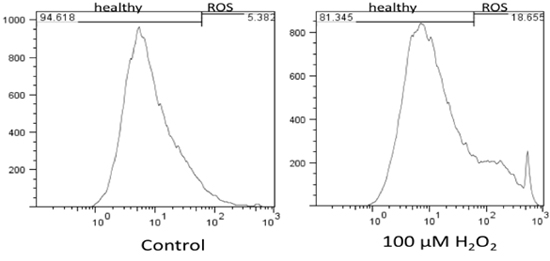
Rycina 1. Wyniki cytometrii przepływowej poziomu stresu oksydacyjnego w zdrowych astrocytach kocich oraz efekt H2O2 na zdrowych komórkach. Wyniki wskazują, że H2O2 zwiększa poziomy ROS w zdrowych komórkach w porównaniu z komórkami niepoddanymi działaniu czynnika (DMEM).
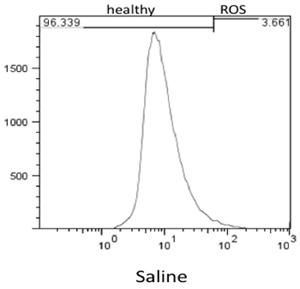
Rysunek 2. Wyniki cytometrii przepływowej poziomu ROS wykrytego w zdrowych komórkach inkubowanych przez 3 h w DPBS.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Często sugerowanym mechanizmem wirusowego uszkodzenia neuronów jest stres oksydacyjny 1, 4, 7, 9, 13, 15, 16, 18-22, 27, 31. W zasadzie postuluje się, że pod wpływem ekspozycji na wirusy glej (astrocyty i mikroglej) uwalnia reaktywne rodniki tlenowe, takie jak wodorotlenek, anion ponadtlenkowy, tlenek azotu i/lub nadtlenek wodoru, które są toksyczne dla neuronów. Podobnie stres oksydacyjny został wskazany jako główny mechanizm patologiczny w neurotoksyczności indukowanej przez metamfetaminę 2, 6, 17...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Dziękujemy firmie ReadiSorb Products za hojne wsparcie tych badań.
Podziękowania
Dziękujemy firmie ReadiSorb Products za hojne wsparcie tych badań.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DMEM | Cellgro | 15-013-CV | |
| Witaminy do pożywki MEM | Cellgro | 25-020-cl | 1% (v/v) |
| L-glutamina | Hyclone | 17-605E | 1% (v/v) |
| Niezbędne aminokwasy nieistotne | Hyclone | 25-025-cl | 1% (v/v) |
| płodowa surowica bydlęca | Hyclone | SH30071.03 | 20% (v/v) |
| Niezbędne aminokwasy | Cellgro | 25-030-cl | 0,2% (v/v) |
| system do filtracji próżniowej 500 ml | VWR international | 87006-076 | |
| probówki stożkowate 15 ml | Falcon BD | 352097 | |
| 75 cm2 kolby do hodowli tkankowych | Falcon BD | 353136 | |
| płytka do hodowli tkankowej z 6 dołkami | Falcon BD | 353224 | |
| CM-H2DCFDA | Invitrogen | C6827 | |
| jodek propidyny (PI) | Sigma-Aldrich | P4170-10mg | |
| Trypsyna | Lonza Inc. | 17-160F | |
| H2O2 | Sigma-Aldrich | H6520 | |
| antybiotyk HyQ | Hyclone | SV30079.01 | 0,1% (v/v) |
| komórki G355-5 | ATCC | CRL-2033 | Normalny mózg kota |
Bibliografia
- Bukrinsky, M. I., Nottet, H. S., Schmidtmayerova, H. L., Dubrovsky, H., Flanagan, C. R., Mullins, M. E., Lipton, S. A., Gendelman, H. E. Regulation of nitric oxide synthase activity in human immunodeficiency virus type 1 (HIV-1)-infected monocytes: implications for HIV-associated neurological disease. J Exp Med. 181, 735-745 (1995).
- Cadet, J. L., Ali, S., Epstein, C. Involvement of oxygen-based radicals in methamphetamine-induced neurotoxicity: evidence from the use of CuZnSOD transgenic mice. Ann N Y Acad Sci. 738, 388-3891 (1994).
- Cathcart, R., Schwiers, E., Ames, B. N. Detection of picomole levels of hydroperoxides using a fluorescent dichlorofluorescein assay. Anal Biochem. 134, 111-116 (1983).
- Chao, C. C., Hu, S., Peterson, P. K. Glia: the not so innocent bystanders. J Neurovirol. 2, 234-239 (1996).
- Cooper, A. J., Kristal, B. S. Multiple roles of glutathione in the central nervous system. Biol Chem. 378, 793-802 (1997).
- Cubells, J. F., Rayport, S., Rajendran, G., Sulzer, D. Methamphetamine neurotoxicity involves vacuolation of endocytic organelles and dopamine-dependent intracellular oxidative stress. J Neurosci. 14, 2260-2271 (1994).
- Dawson, V. L., Dawson, T. M., Uhl, G. R., Snyder, S. H. Human immunodeficiency virus type 1 coat protein neurotoxicity mediated by nitric oxide in primary cortical cultures. Proc Natl Acad Sci U S A. 90, 3256-329 (1993).
- Desagher, S., Glowinski, J., Premont, J. Astrocytes protect neurons from hydrogen peroxide toxicity. J Neurosci. 16, 2553-2562 (1996).
- Dewhurst, S., Gelbard, H. A., Fine, S. M. Neuropathogenesis of AIDS. Mol Med Today. 2, 16-23 (1996).
- Dringen, R. Metabolism and functions of glutathione in brain. Prog Neurobiol. 62, 649-671 (2000).
- Dringen, R., Hamprecht, B. Glutathione restoration as indicator for cellular metabolism of astroglial cells. Dev Neurosci. 20, 401-407 (1998).
- Dringen, R., Pfeiffer, B., Hamprecht, B. Synthesis of the Antioxidant Glutathione in Neurons: Supply by Astrocytes of CysGly as Precursor for Neuronal Glutathione. J Neurosci. 19, 562-569 (1999).
- Everall, I. P. H. udson, L, R. W. K. erwin Decreased absolute levels of ascorbic acid and unaltered vasoactive intestinal polypeptide receptor binding in the frontal cortex in acquired immunodeficiency syndrome. Neurosci Lett. 224, 119-1122 (1997).
- Gabriel, C., Camins, A., Sureda, F. X., Aquirre, L., Escubedo, E., Pallas, M., Camarasa, J. Determination of nitric oxide generation in mammalian neurons using dichlorofluorescin diacetate and flow cytometry. J Pharmacol Toxicol Methods. 38, 93-938 (1997).
- Gendelman, H. E., Genis, P., Jett, M., Zhai, Q. H., Nottet, H. S. An experimental model system for HIV-1-induced brain injury. Adv Neuroimmunol. 4, 189-1893 (1994).
- Hayman, M., Arbuthnott, G., Harkiss, G., Brace, H., Filippi, P., Philippon, V., Thomson, D., Vigne, R., Wright, A. Neurotoxicity of peptide analogues of the transactivating protein tat from Maedi-Visna virus and human immunodeficiency virus. Neuroscience. 53, 1-6 (1993).
- Hirata, H., Ladenheim, B., Rothman, R. B., Epstein, C., Cadet, J. L. Methamphetamine-induced serotonin neurotoxicity is mediated by superoxide radicals. Brain Res. , 677-6345 (1995).
- Koka, P., He, K., Zack, J. A., Kitchen, S., Peacock, W., Fried, I., Tran, T., Yashar, S. S., Merrill, J. E. Human immunodeficiency virus 1 envelope proteins induce interleukin 1, tumor necrosis factor alpha, and nitric oxide in glial cultures derived from fetal, neonatal, and adult human brain. J Exp Med. 182, 941-951 (1995).
- Kong, L. Y., Wilson, B. C., McMillian, M. K., Bing, G., Hudson, P. M., Hong, J. S. The effects of the HIV-1 envelope protein gp120 on the production of nitric oxide and proinflammatory cytokines in mixed glial cell cultures. Cell Immunol. 172, 77-83 (1996).
- Koutsilieri, E., Gotz, M. E., Sopper, S., Sauer, U., Demuth, M., ter Meulen, V., Riederer, P. Regulation of glutathione and cell toxicity following exposure to neurotropic substances and human immunodeficiency virus-1 in vitro. J Neurovirol. 3, 342-349 (1997).
- Lipton, S. A. Similarity of neuronal cell injury and death in AIDS dementia and focal cerebral ischemia: potential treatment with NMDA open-channel blockers and nitric oxide-related species. Brain Pathol. 6, 507-517 (1996).
- Lipton, S. A., Yeh, M., Dreyer, E. B. Update on current models of HIV-related neuronal injury: platelet-activating factor, arachidonic acid and nitric oxide. Adv Neuroimmunol. 4, 181-188 (1994).
- Mills, E. M., Takeda, K., Yu, Z. X., Ferrans, V., Katagiri, Y., Jiang, H., Lavigne, M. C., Leto, T. L., Guroff, G. Nerve growth factor treatment prevents the increase in superoxide produced by epidermal growth factor in PC12 cells. J Biol Chem. 273, 22165-22168 (1998).
- Peuchen, S., Duchen, M. R., Clark, J. B. Modulation of the glutathione redox state in adult astrocytes. Biochem Soc Trans. 24, 449S-449S (1996).
- Possel, H., Noack, H., Augustin, W., Keilhoff, G., Wolf, G. 2,7-Dihydrodichlorofluorescein diacetate as a fluorescent marker for peroxynitrite formation. FEBS Lett. 416, 175-178 (1997).
- Sagara, J., Makino, N., Bannai, S. Glutathione efflux from cultured astrocytes. J Neurochem. 66, 1876-1881 (1996).
- Stefano, G. B., Smith, E. M., Paemen, L. R., Hughes, T. K. Jr HIV gp120 associated neurological deficits: a potential role for nitric oxide and other signal molecules. Advances in Neuroimmunology. 3, 47-57 (1993).
- Sundaresan, M., Yu, Z. X., Ferrans, V. J., Irani, K., Finkel, T. Requirement for generation of H2O2 for platelet-derived growth factor signal transduction. Science. 270, 296-299 (1995).
- Wang, X. F., Cynader, M. S. Astrocytes provide cysteine to neurons by releasing glutathione. J Neurochem. 74, 1434-1442 (2000).
- Wilson, J. X. Antioxidant defense of the brain: a role for astrocytes. Can J Physiol Pharmacol. 75, 1149-1163 (1997).
- Zenger, E., Collisson, E. W., Barhoumi, R., Burghardt, R. C., Danave, I. R., Tiffany-Castiglioni, E. Laser cytometric analysis of FIV-induced injury in astroglia. Glia. 13, 92-100 (1995).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
