Różne poziomy i wzorce ścinania płynu są znane z modulowania ekspresji genów śródbłonka, fenotypu i podatności na choroby. Omawiamy montaż i zastosowanie "pierścieni ścinających": modelu, który wytwarza jednokierunkowe, okresowe wzorce naprężeń ścinających. Pierścienie ścinane są proste w montażu, ekonomiczne i mogą wytwarzać wysoką wydajność ogniw.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Montaż i zastosowanie "pierścieni ścinających": nowy model śródbłonka dla orbitalnego, jednokierunkowego i okresowego przepływu płynów oraz naprężeń ścinających
W tym artykule
Podsumowanie
Streszczenie
Odchylenia od normalnych poziomów i wzorce ścinania płynu naczyniowego odgrywają ważną rolę w fizjologii i patofizjologii naczyń krwionośnych, wywołując adaptacyjne i patologiczne zmiany w fenotypie śródbłonka i ekspresji genów. W szczególności nieprzystosowawcze skutki okresowego, jednokierunkowego naprężenia ścinającego wywołanego przepływem mogą wywoływać różnorodne skutki dla kilku typów komórek naczyniowych, w szczególności komórek śródbłonka. Chociaż do tej pory wyhodowano komórki śródbłonka o różnym pochodzeniu anatomicznym, dogłębne analizy ich reakcji na ścinanie płynu były utrudnione przez względną złożoność modeli ścinania (np. równoległa komora przepływu płytkowego, stożek i model przepływu płytkowego). Chociaż wszystkie te podejścia są doskonałe, takie modele są skomplikowane technicznie i mają wady, takie jak stosunkowo długi i złożony czas konfiguracji, małe powierzchnie, wymagania dotyczące pomp i ciśnienia, często wymagające uszczelniaczy i uszczelek, co stwarza wyzwania zarówno dla utrzymania sterylności, jak i niemożności przeprowadzenia wielu eksperymentów. Gdyby jednak dostępne były modele przepływu i ścinania o wyższej przepustowości, większy postęp w zakresie reakcji ścinania śródbłonka naczyniowego, w szczególności badań nad okresowym ścinaniem na poziomie molekularnym, mógłby być szybszy. W tym miejscu opisujemy budowę i zastosowanie pierścieni ścinających: nowatorski, prosty w montażu i niedrogi model hodowli tkankowej o stosunkowo dużej powierzchni, który z łatwością pozwala na dużą liczbę powtórzeń eksperymentalnych w jednokierunkowych, okresowych badaniach naprężeń ścinających na komórkach śródbłonka.
Wprowadzenie
Wykazano, że naprężenie ścinające płynu moduluje programy genów śródbłonka 1-5 poprzez aktywację elementów cis-regulatorowych6, aktywność acetylotransferazy histonowej7 i elementów odpowiedzi na stres ścinający (SSRE)8. Naprężenie ścinające wpływa na wkład śródbłonka w krzepnięcie poprzez modulację ekspresji czynnikatkankowego 9 i tkankowego aktywatora plazminogenu (tPA)10. Naprężenie ścinające wpływa również na kontrolę angiogenezy11 i przebudowę naczyń poprzez regulację syntezy i reakcji PDGF-B8. Śródbłonkowe mediatory wazoaktywne adrenomedullina, endotelina-1, urotensyna II i relaksyna są również regulowane przez ścinanie12. Transkrypcja śródbłonkowej produkcji syntazy tlenku azotu i produkcji tlenku azotu jest zależna od ścinania10. Ścinanie kontroluje również śródbłonkową ekspresję ICAM-113. Naprężenie ścinające wywołane przepływem może zatem silnie wpływać na dużą różnorodność reakcji śródbłonka. Co ważne, pulsacje naczyń krwionośnych wydają się obecnie odgrywać ważną rolę w patofizjologii zarówno prawidłowego starzenia się naczyń, jak i form otępienia naczyniowego14, a nawet mogą przyczyniać się do innych chorób neurodegeneracyjnych, takich jak stwardnienie rozsiane15.
Komórki śródbłonka żylnego i tętniczego są z natury narażone na różnorodne wzorce przepływu hemodynamicznego in vivo, a wiele różnych fenotypów komórek śródbłonka może być wykazywanych16. W zależności od wielkości i okresowości przepływu, wpływ na komórki śródbłonka może obejmować aktywację komórek zapalnych i apoptozę, co może odzwierciedlać zmiany w ekspresji genów lub białek17,18. Badania nad reakcjami komórek śródbłonka na zjawisko ścinania pozostają zatem skomplikowane ze względu na trudności w tworzeniu modeli in vitro, które odpowiednio wytwarzają takie wzorce ścinania.
Wiele różnych eksperymentalnych protokołów zostało opracowanych w celu zastosowania naprężeń ścinających płynu do monowarstw komórek śródbłonka. Jednym z najczęściej stosowanych systemów jest równoległa płytowa komora przepływowa, która tworzy równomierny przepływ laminarny w komorze19-21. Pompa perystaltyczna jest zwykle podłączona w celu wytworzenia przepływu okresowego, który może podsumować charakterystykę przepływu zwykle występującą w wielu miejscach in vivo22. Inna popularna konfiguracja wykorzystuje model "stożka i płyty", w którym naprężenie ścinające płynu jest określane przez prędkość obrotową stożka23. Zarówno systemy, jak i inne podobne do nich układy, mogą być żmudne w konfiguracji i wymagać komponentów, które mogą być stosunkowo drogie i niedostępne dla wielu laboratoriów.
Innym poważnym ograniczeniem tych obecnych modeli jest stosunkowo mała liczba powtórzonych badań, które mogą być wykonywane jednocześnie, każde o stosunkowo małej powierzchni. Zwiększa to czas i złożoność takich podejść. Dlatego idealnym modelem, który indukuje jednokierunkowe i okresowe ścinanie, może być taki, w którym można łatwo skonfigurować dużą liczbę powtórzeń badań, z których każdy ma stosunkowo dużą powierzchnię. Ponadto wyżej wymienione modele wymagają dość wyrafinowanej konfiguracji, co dla wielu użytkowników może być zbyt kosztowne. Model, który może powodować zakłócenia ścinania płynów przy użyciu podstawowych materiałów laboratoryjnych, może mieć kilka zalet.
Prosta i bardzo ekonomiczna metoda stosowania jednokierunkowego, okresowego naprężenia ścinającego polega na umieszczeniu okrągłych czaszek na wytrząsarce orbitalnej24. Protokół ten jest bardzo prosty i w razie potrzeby można go skalować w celu uzyskania dużej liczby powtórzeń badań, z których każdy ma stosunkowo dużą powierzchnię. Jednak komórki znajdujące się w środku naczynia są wystawione na inne wzorce przepływu niż komórki wzdłuż obwodu, powodując mieszane komórkowe odpowiedzi fenotypowe w tym samym naczyniu.
W tym bieżącym raporcie opisujemy budowę i zastosowanie 'pierścieni ścinających', naszego modelu do tworzenia jednokierunkowych i okresowych naprężeń ścinających. Konstrukcja pierścienia ścinanego skutecznie ogranicza "mieszane" fenotypy wywołane ścinaniem komórkowym poprzez ograniczenie ścieżki przepływu w okrągłej naczyniu hodowlanej do peryferii poprzez umieszczenie pierścienia wewnętrznego. Konstrukcja i działanie pierścienia ścinającego jest proste i ekonomiczne i można je łatwo skalować, aby pomieścić szeroką gamę wytrząsarek orbitalnych przy użyciu powszechnie dostępnych materiałów do hodowli tkankowych. Model ten można zastosować w eksperymentach z komórkami śródbłonka w celu zapewnienia jednokierunkowych i okresowych wzorców przepływu na poziomie fizjologicznym i patofizjologicznym.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Konstrukcja pierścieni ścinających o średnicy 150 mm (Rysunek 1)
UWAGA: Pierścienie ścinające można konstruować w wielu różnych wymiarach, zmieniając rozmiary zewnętrznej i wewnętrznej szalki Petriego, co pozwala na uzyskanie urządzeń o różnej całkowitej powierzchni, wydajności komórek i zakresach generowanych sił ścinających. Niniejszy raport opisuje zastosowanie szalki 150 mm w połączeniu z wewnętrzną szalką 100 mm, co daje całkowitą powierzchnię 98 cm2 (Rysunek 2).
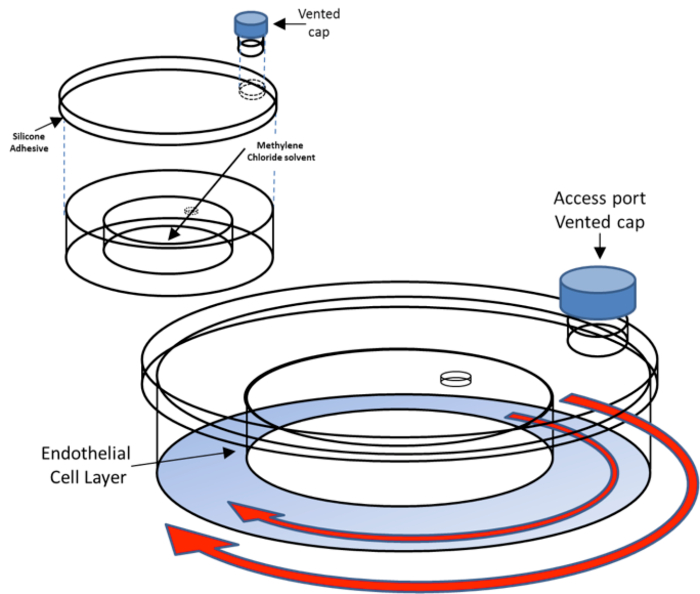
Rycina 1. Montaż pierścienia ścinającego. Górna część ryciny przedstawia częściowo zmontowany pierścień ścinający. Jeśli między naczyniem wewnętrznym a zewnętrznym nie utworzyła się całkowicie szczelna spoina, należy wstrzyknąć 0,5 ml chlorku metylenu przez otwór o średnicy 3 mm za pomocą pipety transferowej. Pierścień ścinający zostaje uszczelniony poprzez nałożenie warstwy silikonowego kleju gumowego o grubości 1 mm wokół wewnętrznej krawędzi górnej części pierścienia. Dolna część ryciny przedstawia zmontowany pierścień ścinający. Kolor niebieski reprezentuje obszar wysianych komórek śródbłonka. Zewnętrzne i wewnętrzne czerwone strzałki wskazują ruch orbitalny pierścienia ścinającego oraz medium wewnątrz pierścienia po umieszczeniu go na wytrząsarce orbitalnej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2. Pomiary powierzchni dla pierścienia ścinającego o średnicy 150 mm (nie w skali). Górny panel przedstawia odśrodkowe przemieszczanie się cieczy w stronę zewnętrznego pierścienia w odpowiedzi na rotację orbitalną. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Utwórz szablon konstrukcyjny pierścienia ścinającego, generując w programie do prezentacji profil krawędzi zewnętrznej o średnicy 150 mm z wewnętrzną średnicą 100 mm umieszczoną w centrum koła 150 mm. Wydrukuj szablon na arkuszu białego papieru A4.
- Pipetuj 10 ml chlorku metylenu (dichlorometanu) do szklanej szalki Petriego o średnicy 150 mm. Krytyczne jest, aby szalka była szklana, a nie polistyrenowa (ani z innego tworzywa winylowego), ponieważ chlorek metylenu rozpuszcza większość tworzyw sztucznych i jest tutaj wykorzystywany do łączenia komponentów plastikowych.
UWAGA: Podczas wszystkich prac konstrukcyjnych należy używać rękawic i zapewnić odpowiednią wentylację w dygestorium. Chlorek metylenu jest substancją drażniącą w kontakcie ze skórą i wykazuje działanie hepatotoksyczne. - Dopasuj plastikową szalkę Petriego o średnicy 150 mm do zewnętrznego szablonu pierścienia ścinającego.
- Wywierć otwór o średnicy 3 mm w centrum szalki 100 mm za pomocą narzędzia rotacyjnego. Usuń wszelkie wióry plastikowe powstałe podczas wiercenia.
- Trzymając szalkę w rękawiczce, odwróć ją i zanurz górną krawędź szalki Petriego 100 mm z poprzedniego kroku w chlorku metylenu na około 3 s.
- Przenieś „zwilżoną” szalkę 100 mm krawędzią w dół na środek szalki 150 mm, starannie dopasowując szalkę 100 mm do zaznaczonego szablonu. Chlorek metylenu stopi tworzywo, łącząc szalki 100 mm i 150 mm. Delikatnie obracaj szalkę 100 mm zgodnie i przeciwnie do ruchu wskazówek zegara kilka razy, aby zapewnić dobrą adhezję do szalki 150 mm.
UWAGA: Należy zachować szczególną ostrożność, aby zapewnić prawidłowe ustawienie wewnętrznej szalki w centrum szalki zewnętrznej. Ekscentryczne ustawienie może prowadzić do różnic w naprężeniu ścinającym w różnych miejscach pierścienia ścinającego. Należy uważać, aby chlorek metylenu przypadkowo nie skapnął na zewnętrzną część toru szalki Petriego 150 mm podczas umieszczania szalki 100 mm. Spowoduje to stopienie tworzywa na dolnej powierzchni, na której będą rosły komórki, tworząc nierówną powierzchnię, co może powodować zaburzenia przepływu. - Po wyschnięciu chlorku metylenu odwróć nowo połączone szalki Petriego i dokładnie sprawdź punkty styku, aby upewnić się, że między dwiema szalkami Petriego powstała szczelna spoina.
- Jeśli szczelna spoina nie powstała całkowicie, wstrzyknij 0,5 ml chlorku metylenu przez otwór 3 mm za pomocą pipety transferowej. Podnieś szalkę i delikatnie nią zakręć, aby chlorek metylenu dotarł do krawędzi.
UWAGA: Jeśli obrót będzie zbyt szybki, chlorek metylenu może wylać się do zewnętrznej części szalki 150 mm, deformując powierzchnię wzrostu komórek i niszcząc pierścień ścinający. Nieszczelne pierścienie ścinające należy odrzucić. - Uszczelnij otwór w szalce 100 mm, nakładając pasek silikonowego uszczelniacza o szerokości 3 mm.
- Za pomocą narzędzia rotacyjnego z płaską głowicą tnącą odetnij górną część (3 cm) stożkowej polistyrenowej probówki do hodowli tkankowej o pojemności 15 ml, pozostawiając co najmniej 1 cm probówki poniżej zakrętki. Wypoleruj krawędź odciętej probówki do uzyskania gładkiej i płaskiej powierzchni, używając płaskiej strony głowicy tnącej. Usuń wszelkie wióry plastikowe powstałe podczas szlifowania.
- Odrysuj odciętą stożkową probówkę 15 ml na pokrywce szalki 150 mm za pomocą markera, w odległości około 0,5 cm od krawędzi szalki. Wywierć otwór wewnątrz narysowanego koła, pozostawiając margines około 1-2 mm od krawędzi koła.
- Umieść górną część odciętej probówki stożkowej nad wywierconym otworem. Za pomocą pipety transferowej nanieś około 250 µl chlorku metylenu na odcięte krawędzie probówki stożkowej, aby połączyć probówkę z pokrywką 150 mm.
- Zamknij pokrywkę 150 mm na szalce 150 mm, nakładając pasek silikonowego uszczelniacza o grubości 1 mm wokół wewnętrznej krawędzi górnej szalki Petriego.
2. Sterylizacja pierścieni ścinających
- Do nowo utworzonego pierścienia ścinającego (shear ring) pipetować około 10 ml soli fizjologicznej z buforem fosforanowym (PBS) przez otwór probówki stożkowej o pojemności 15 ml. Obracać naczynie, aby usunąć wszelkie zanieczyszczenia z wnętrza pierścienia. Usunąć PBS za pomocą pipety Pasteura lub aspiratora próżniowego.
- Powtarzać poprzedni krok do momentu usunięcia zanieczyszczeń.
- W celu sterylizacji pierścienia ścinającego zastosować kombinację płukania 70% etanolem oraz naświetlania promieniowaniem UV.
- Odkręcić odpowietrzoną zakrętkę, pipetować około 10 ml 70% etanolu przez otwór dostępowy, a następnie ponownie zakręcić naczynie. Kilkakrotnie obracać i odwracać pierścień ścinający, upewniając się, że jego wnętrze zostało dokładnie wypłukane.
- W dygestorium odessać nadmiar 70% etanolu. Za pomocą butelki z rozpylaczem dokładnie spryskać zakrętkę oraz otwór dostępowy 70% etanolem.
- Umieścić pierścień ścinający wraz z zakrętką pod promieniowaniem UV w komorze do hodowli tkanek do całkowitego wyschnięcia.
- Po wyschnięciu ponownie zakręcić naczynie i przechowywać wysterylizowane pierścienie ścinające w temperaturze pokojowej do czasu ich użycia podczas wysiewu komórek.
3. Badania nad naprężeniem ścinającym
- Wysiać komórki śródbłonka w wysterylizowanych pierścieniach do generowania naprężeń ścinających (shear rings) zgodnie ze standardowym protokołem hodowli komórkowej, zazwyczaj stosując stosunek rozcieńczenia 1:4 dla przekształconych linii komórek śródbłonka.
UWAGA: Komórki śródbłonka mikro naczyniowego siatkówki szczura zostały zakupione komercyjnie. Komórki śródbłonka mózgu człowieka (hCMEC/D3) zostały przekazane jako darowizna od dr. Pierre-Olivera Courauda (Inserm, Francja) i były hodowane w pełnej podstawowej pożywce dla komórek śródbłonka (EBM). - Pozostawić hodowle do momentu osiągnięcia konfluencji przed rozpoczęciem badań nad przepływem. Użyć 30 ml pożywki do hodowli tkanek (10% płodowej surowicy cielęcej, pożywki Eagle'a modyfikowanej przez Dulbecco z 1% penicyliny/streptomycyny/amfoterycyny). Wymieniać pożywkę do hodowli komórkowej co 3 dni i utrzymywać komórki w temperaturze 37 °C przy 7,5% CO2 i 92,5% powietrza pokojowego.
- Umieścić wytrząsarkę orbitalną w inkubatorze.
Uwaga: Wytrząsarki orbitalne są zazwyczaj ciężkie (>10 kg). Należy umieścić wytrząsarkę orbitalną na dolnej półce inkubatora, aby zminimalizować obciążenie półki i wibracje. - Umieścić eksperymentalne pierścienie do generowania naprężeń ścinających na wytrząsarce orbitalnej. Pierścienie kontrolne (statyczne) umieścić w tym samym inkubatorze.
- Oszacować maksymalne naprężenie ścinające wewnątrz pierścienia za pomocą równania
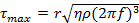 gdzie
 to promień rotacji wytrząsarki orbitalnej (w cm),
 to lepkość pożywki (w poizach),
 to gęstość pożywki (w g/ml), a
 to częstotliwość obrotów (w obrotach/s)24.
- Ustawić prędkość obrotową na wytrząsarce orbitalnej na pożądaną wartość rpm (np. 90 rpm), pozostawiając pierścienie na wytrząsarce przez wymagany czas aplikacji naprężenia ścinającego (np. 72 h).
UWAGA: Wytrząsarki orbitalne mogą generować ciepło, dlatego należy początkowo monitorować temperaturę w inkubatorze, aby upewnić się, że przez cały czas trwania eksperymentu utrzymuje się 37 °C. Alternatywnie pierścienie można przenieść do komór środowiskowych (np. modułowej komory inkubacyjnej), a następnie umieścić je w inkubatorze rotacyjnym. - Po wystawieniu warstw komórek na działanie sił ścinających przez pożądany czas, wyjąć pierścienie z inkubatora. Zdjąć pokrywkę pierścienia i pobrać komórki i/lub pożywkę do przeprowadzenia wybranych analiz końcowych (np. Western blotting, FACS, itp.)25.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W niniejszym opracowaniu prezentujemy reprezentatywne wyniki uzyskane zarówno dla monowarstw komórek śródbłonka mózgu hCMEC/D3, jak i komórek śródbłonka mikrokrążenia siatkówki szczura, hodowanych w pierścieniach ścinających.
Po doprowadzeniu monowarstw komórek śródbłonka mózgu hCMEC/D3 do konfluencji w pełnej pożywce EBM, pierścienie ścinające umieszczono na wytrząsarce orbitalnej na 72 godziny. Korzystając z równania z kroku 3...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Konstrukcja układu pierścieni ścinanych do wystawiania komórek śródbłonka na ścinanie jest prostym podejściem do wykonywania badań naprężeń ścinających. Niemniej jednak istnieje kilka kroków, które mają kluczowe znaczenie dla uzyskania doskonałych pierścieni ścinanych i lepszych wyników. Między pierścieniem wewnętrznym i zewnętrznym należy wykonać pełne uszczelnienie, aby zapobiec wyciekom mediów, które mogłyby spowodować niespójne naprężenia ścinające między próbkami. Jeżeli nie zostanie wykonane pełne uszczelnienie, na...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
J. Winny Yun jest stypendystką fundacji Annette Funicello. J. Steven Alexander ma wsparcie badawcze z Wydziału Neurologii, LSUHSC-S.
Podziękowania
Autorzy dziękują za pomoc Panu Christopherowi Nguyenowi, Aaronowi Hunterowi oraz programom szkoleniowym Shreveport Jumpstart, SMART i Biostart, a także wydziałowi Biofizyki Centenary College of Louisiana, Shreveport, LA.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 100 x 20 mm plastikowe naczynie do hodowli tkankowych | Corning | 430167 | Naczynia muszą być polistyrenowe |
| 150 x 25 mm plastikowe naczynie do hodowli tkankowych | Corning | 430599 | Naczynia muszą być polistyrenowe |
| 150 mm szklane szalki Petriego | Fisher | 3160150BO | |
| 15 ml plastikowe rurki do kultur tkankowych z polistyrenu | Falcon | 352099 | |
| Chlorek metylenu | Sigma-Aldrich | D65100 | |
| uszczelniacz z kauczuku silikonowego | DAP | 7079808641 | |
| etanol | Decon | 2701 | |
| Pipeta transferowa 3 ml | |||
| narzędzie obrotowe i zestaw | Dremel | 4000-6/50 | |
| narzędzie obrotowe głowica tnąca | Dremel | EZ476 | |
| narzędzie obrotowe głowica | |||
| wytrząsarka orbitalna | |||
| inkubator | |||
| Biologia komórkowa | RA-6065 |
Bibliografia
- Resnick, N., Gimbrone, M. A. Hemodynamic forces are complex regulators of endothelial gene expression. FASEB J. 9 (10), 874-882 (1995).
- Malek, A. M., Izumo, S. Control of endothelial cell gene expression by flow. J Biomech. 28 (12), 1515-1528 (1995).
- Ando, J., Kamiya, A. Flow-dependent Regulation of Gene Expression in Vascular Endothelial Cells. Jpn Heart J. 37 (1), 19-32 (1996).
- Resnick, N., Yahav, H., et al. Endothelial Gene Regulation by Laminar Shear Stress. Adv Exp Med Biol. 430, 155-164 (1997).
- Gaucher, C., et al. In vitro impact of physiological shear stress on endothelial cells gene expression profile. Clin Hemorheol Mico. 37 (1-2), 99-107 (2007).
- Fisslthaler, B., et al. Identification of a cis -Element Regulating Transcriptional Activity in Response to Fluid Shear Stress in Bovine Aortic Endothelial Cells. Endothelium-J Endoth. 10 (4-5), 267-275 (2003).
- Chen, W., Bacanamwo, M., Harrison, D. G. Activation of p300 Histone Acetyltransferase Activity Is an Early Endothelial Response to Laminar Shear Stress and Is Essential for Stimulation of Endothelial Nitric-oxide Synthase mRNA Transcription. J Biol Chem. 283 (24), 16293-16298 (2008).
- Sumpio, B. E., et al. Regulation of PDGF-B in Endothelial Cells Exposed to Cyclic Strain. Arterioscl Throm Vas. 18 (3), 349-355 (1998).
- Yang, Y., et al. Triplex-forming oligonucleotide inhibits the expression of tissue factor gene in endothelial cells induced by the blood flow shear stress in rats. Acta Pharm Sinic. 41 (9), 808-813 (2006).
- Sumpio, B. E., Chang, R., Xu, W. -J., Wang, X. -J., Du, W. Regulation of tPA in endothelial cells exposed to cyclic strain: role of CRE, AP-2, and SSRE binding sites. Am J Physiol. 273 (5 Pt 1), C1441-C1448 (1997).
- Silberman, M., et al. Shear stress-induced transcriptional regulation via hybrid promoters as a potential tool for promoting angiogenesis. Nato Adv Sci Inst Se. 12 (3), 231-242 (2009).
- Dschietzig, T., et al. Flow-induced pressure differentially regulates endothelin-1, urotensin II, adrenomedullin, and relaxin in pulmonary vascular endothelium. Biochem Biophys Res Commun. 289 (1), 245-251 (2001).
- Nagel, T., Resnick, N., Atkinson, W. J., Dewey, C. F., Gimbrone, M. A. Shear stress selectively upregulates intercellular adhesion molecule-1 expression in cultured human vascular endothelial cells. J Clin Invest. 94 (2), 885-891 (1994).
- Bateman, G. A., Levi, C. R., Schofield, P., Wang, Y., Lovett, E. C. The venous manifestations of pulse wave encephalopathy: windkessel dysfunction in normal aging and senile dementia. Neuroradiology. 50 (6), 491-497 (2008).
- Juurlink, B. H. J. Is there a pulse wave encephalopathy component to multiple sclerosis. Curr Neurovasc Res. 12 (2), 199-209 (2015).
- Topper, J. N., Gimbrone, M. A. Jr Blood flow and vascular gene expression: fluid shear stress as a modulator of endothelial phenotype. Mol Med Today. 5 (1), 40-46 (1999).
- Tzima, E., et al. A mechanosensory complex that mediates the endothelial cell response to fluid shear stress. Nature. 437 (7057), 426-431 (2005).
- Li, Y. -S. J., Haga, J. H., Chien, S. Molecular basis of the effects of shear stress on vascular endothelial cells. J Biomech. 38 (10), 1949-1971 (2005).
- Reinhart-King, C. A., Fujiwara, K., Berk, B. C. Physiologic Stress-Mediated Signaling in the Endothelium. Method Enzymol. 443, 25-44 (2008).
- Frangos, J. A., McIntire, L. V., Eskin, S. G. Shear stress induced stimulation of mammalian cell metabolism. Biotechnol Bioeng. 32 (8), 1053-1060 (1988).
- Lane, W. O., et al. Parallel-plate Flow Chamber and Continuous Flow Circuit to Evaluate Endothelial Progenitor Cells under Laminar Flow Shear Stress. J Vis Exp. (59), (2012).
- Reinitz, A., DeStefano, J., Ye, M., Wong, A. D., Searson, P. C. Human brain microvascular endothelial cells resist elongation due to shear stress. Microvasc Res. 99, 8-18 (2015).
- Dewey, C. F., Bussolari, S. R., Gimbrone, M. A., Davies, P. F. The Dynamic Response of Vascular Endothelial Cells to Fluid Shear Stress. J Biomed Eng. 103 (3), 177(1981).
- Dardik, A., et al. Differential effects of orbital and laminar shear stress on endothelial cells. J Vasc Surg. 41 (5), 869-880 (2005).
- Honda, S., et al. Ligand-induced adhesion to activated endothelium and to vascular cell adhesion molecule-1 in lymphocytes transfected with the N-formyl peptide receptor. J Immunol. 152 (8), 4026-4035 (1994).
- Watt, S. M., Gschmeissner, S. E., Bates, P. A. PECAM-1: its expression and function as a cell adhesion molecule on hemopoietic and endothelial cells. Leukemia Lymphoma. 17 (3-4), 229-244 (1995).
- Fujiwara, K. Platelet endothelial cell adhesion molecule-1 and mechanotransduction in vascular endothelial cells. J Intern Med. 259 (4), 373-380 (2006).
- Dusserre, N. PECAM-1 Interacts With Nitric Oxide Synthase in Human Endothelial Cells: Implication for Flow-Induced Nitric Oxide Synthase Activation. Arterioscl Throm Vas. 24 (10), 1796-1802 (2004).
- Bagi, Z. PECAM-1 Mediates NO-Dependent Dilation of Arterioles to High Temporal Gradients of Shear Stress. Arterioscl Throm Vas. 25 (8), 1590-1595 (2005).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
