Bu derleme, geçici reseptör potansiyel ankyrin 1'in (TRPA1) CIPN'nin patogenezindeki mekanik rolünü incelemeyi ve immünomodülatör ve anti-inflamatuar müdahale için terapötik bir hedef olarak potansiyelini değerlendirmeyi amaçlamaktadır.
Derleme makalesi
Kemoterapi Kaynaklı Çevresel Nöropatide TRPA1: İmmünomodülasyon ve Anti-İltihabi Tedavi İçin Umut Vadeden Bir Hedef
Bu makalede
Özet
Özet
Kemoterapi kaynaklı periferik nöropati (CIPN), kemoterapi ajanının periferik sinir sistemine zarar vermesiyle ortaya çıkan yaygın ve ciddi bir klinik durumdur ve genellikle distal uzuvlarda anormal ağrı ile sıcak-soğuk uyarılara karşı duyarlılığın artmasıyla karakterize edilir. Ancak, CIPN için çok az klinik tedavi mevcuttur, bu nedenle etkili tedavi yöntemlerini belirlemek kritik öneme sahiptir. Geçici reseptör potansiyeli ankyrin 1 (TRPA1), bir yaralanma reseptörü olarak, CIPN'nin patogenezi ve ilerlemesi sırasında oksidatif stres, inflamatuar aracılar ve hipotermik durumlar tarafından aktive edilebilir. TRPA1, aşağı akış inflamatuar yolunu modüle eder ve inflamatuar faktörler ile nöropeptidlerin salınımını teşvik eder; bu da anormal bağışıklık regülasyonuna yol açar; bu da nörojenik inflamatuar yanıt ve ağrı sinyallerine yol açar. Bu çalışmada, TRPA1'in CIPN patogenezindeki rolü incelenmiş, nöroinflamasyonu inhibe ederek TRPA1'i CIPN'i tedavi etmek için hedefleme olasılığı doğrulanmış ve TRPA1 antagonistleri ile doğal bitkilerin klinik tedavisinde kullanılması olanakları araştırılmıştır.
Giriş
Kanser, küresel halk sağlığı için büyük sorunlardan biri olmayadevam ediyor 1. Kemoterapi, kanserin hayatta kalmasını artırmada kritik rol oynasa da, genellikle ciddi yan etkilerle birlikte gelir; bunlar arasında CIPN en yaygın ve karmaşık komplikasyonlardan biridir. CIPN, klinik olarak simetrik ağrı, parestezi ve distal ekstremitelerde soğuk veya ısıya karşı anormal hassasiyetlekarakterize edilir 2 ve bazı hastalarda ince motor koordinasyonu dabozulmuş olabilir 3. CIPN görülmesi bildirilen vakalar yaklaşık %50 ile %90 arasında değişir ve vakaların yaklaşık %30-40'ı kronik nörolojikkomplikasyonlara ilerleyebilir 2, bu da hastaların yaşam kalitesini ve tedavi uyumunu önemli ölçüde düşürür. CIPN geliştirme riski, uygulama şekli (tek doz, kümülatif doz veya tedavi süresi), eşlik ilaçlar, yaş, anemi, yüksek vücut kitle indeksi (BMI) ve önceden var olan nöropati 2,4,5 dahil olmak üzere birçok faktörden etkilenir. Nörotoksisiteyi farklı derecelerde indükleyen antineoplastik ajanlar arasında platin bazlı bileşikler, taksanlar, vinka alkaloidleri, proteazom inhibitörleri (örneğin bortezomib), epigenetik veya immünomodülatör ilaçlar (talidomid ve lenalidomid gibi) ve mikrotübul inhibitörleri (örneğin eribulin) bulunur.6.
Şu anda CIPN yönetimi için farmakolojik seçenekler sınırlı kalmaktadır. Amerikan Klinik Onkoloji Derneği (ASCO), CIPN tedavisi için kanıta dayalı destekli tek farmakolojik müdahale olarak duloksetini önermektedir. Klinik çalışmalar, duloksetinin CIPN ile ilişkili ağrıyı hafifletmede etkili olduğunu göstermiştir; terapötik faydası en çok platin bazlı kemoterapî ajanların, özellikle oksaliplatin (OXA) tarafından indüklenen nöropatide belirginleşmektedir; oysa taksan ve vinka alkaloidleri gibi diğer ajanların neden olduğu CIPN'deki etkinliği çalışmalar arasında daha değişken görünür7. Analjezik etkinliğinin kanıtlanmış olmasına rağmen, duloksetinin genel klinik faydası orta düzeyde olup, öncelikle CIPN'i önlemek veya altta yatan patolojik değişiklikleri tersine çevirmek yerine semptomatik rahatlama sağlar. Ayrıca, duloksetin genellikle iyi tolere edilse de, tedavi yorgunluk, uykusuzluk ve mide bulantısı gibi hafif ila orta derecede yan etkilerle birlikte olabilir ve bu da bazı hastalarda uzun vadeli bağlılığı sınırlayabilir. Semptomatik yönetim için gabapentin ve pregabalin gibi diğer yaygın kullanılan ajanlar da kullanılmakta ancak CIPN 8,9'da tutarsız veya tatmin edici olmayan terapötik sonuçlar göstermiştir. Bu nedenle, CIPN için daha etkili önleyici stratejiler geliştirmeye ve yeni terapötik hedeflerin belirlenmesine acil bir ihtiyaç vardır.
Son yıllarda, CIPN'nin patogenezi anlayışının derinlemesine anlaşılmasıyla, inflamatuar yanıt, oksidatif stres ve sinirsel plastisitedeki değişiklikler gibi birden fazla mekanizma giderek artan ilgiçekmiştir 10,11,12. Bunlar arasında, oksidatif stres ve nöroinflamasyon, CIPN'de nöronal hasarın başlangıcı ve ilerlemesinde merkezi katkı sağlayanlar olarak kabul edilir. Önemli olarak, duyusal nöronlarla bolca eksprese edilen redoks-duyarlı bir iyon kanalı olan TRPA1 kanalı, oksidatif stres ve inflamatuar sinyalleri nöronal aşırı uyarılabilirlik ve ağrı aşırı duyarlılığı ile ilişkilendiren önemli moleküler aracı olarakortaya çıkmıştır 13,14. Öncelikle zararlı ısı algılayan TRPV1 ve soğuk uyarılarını algılayan TRPM8'den farklı olarak, TRPA1 4-hidroksinonenal (4-HNE)15 gibi çeşitli oksidatif ve elektrofilik metabolitlere karşı yüksek hassasiyetiyle karakterize edilir. TRPA1'in aktivasyonu genellikle kritik sisteinkalıntıları 16'nın kovalent modifikasyonunu içerir; bu mekanizma, TRPA1'i kemoterapi kaynaklı oksidatif ve lipid peroksidasyon stresini ağrı aşırı hassasiyetinin gelişimiyle ilişkilendiren kritik moleküler köprü olarak konumlandırır. Ayrıca, birkaç hayvan çalışması, kemoterapi kaynaklı nöropatik ağrıda TRPA1'in fonksiyonel bir etkisini göstermiştir. Özellikle, OXA kaynaklı nöropati modellerinde, TRPA1'in genetik ablasyonu veya farmakolojik blokajı soğuk ve mekanik allodinini belirgin şekilde hafifletmiştir; bu da TRPA1'in CIPN17,18 patogenezine kritik bir katkısını gösterir.
Özellikle, TRPA1, periferik nosiseptif nöronlarda yüksek derecede eksprese edilen redoks-duyarlı bir iyon kanalıdır. Kemoterapi ajanları sıklıkla nöronlarda mitokondriyal işlev bozukluğu, oksidatif stres ve lipid peroksidasyonunu indükler ve bu da 4-HNE gibi reaktif oksijen türlerinin (ROS) ve lipid peroksidasyon ürünlerinin aşırı birikmesine yol açar. Bu reaktif moleküller, TRPA1'in anahtar sistein kalıntılarını kovalent olarak değiştirebilir veya aktivasyon eşiğini değiştirebilir; bu da kanal açılmasına, Ca²⁺ girişine ve nöronal depolarizasyona yol açar, böylece ağrı iletimi ve inflamatuar sinyalleriartırır 19,20,21. Önceki çalışmalar, TRPA1'in soğuğa duyarlı olduğunu ve endozen inflamatuar aracılar tarafından aktive edilebileceğini, bu da soğuk kaynaklı ağrı aşırıduyarlılığının gelişimine katkıda bulunduğunu göstermiştir 22. Ayrıca, TRPA1'in hücresel redoks durumu tarafından modüle edilen ve anormal mekanik ağrı ile aşırı duyarlılığa katılan mekanik bir iyon kanalı olarak görev yaptığıgösterilmiştir 22,23. Nöronların ötesinde, TRPA1 aynı zamanda birden fazla bağışıklık hücre tipinde de eksprese edilir; aktivasyonu sitokin salınımını ve inflamatuar kaskadları modüle ederek periferik nöro-iltihabı daha da artırır24. Birlikte, TRPA1'in soğuk hassasiyeti, mekanik duyarlılığı ve redoks duyarlılığı, kemoterapi kaynaklı oksidatif stres ile ardından gelen patolojik ağrı süreçleri arasında net bir mekanik bağlantı kurarak CIPN'nin başlanmasına ve korunmasına katkıda bulunur. Buna göre, TRPA1'in oksidatif stres ve nöroinflamatuar toksisitenin kısır döngüsünü bozmak için hedeflenmesi, kemoterapi kaynaklı periferik nöropatik ağrının yönetimi için umut verici bir terapötik strateji temsil edebilir. Mevcut çalışmalarda, TRPA1'i hedefleyen müdahale stratejileri birden fazla model sisteminde doğrulanmıştır. In vitro, DRG nöron kültürleri kalsiyum görüntüleme ile birleşerek TRPA1 aktivasyonunun kemoterapi kaynaklı nöron uyarılabilirliği üzerindeki etkisini doğrulamak için yaygın olarakkullanılır 25. In vivo, CIPN genellikle OXA, paklitaksel veya bortezomib kullanılarak kemirgenlerde indüklenir, ardından TRPA1'in farmakolojik veya genetik inhibisyonu ve ardından soğuk ile mekanik aşırı duyarlılık gibi davranışsaldeğerlendirmeler yapılır 17,26,27. Terapötik düzeyde, TRPA1 antagonistleri preklinik modellerde nöropatik ağrıyı hafifletmede etkinliğigöstermiştir 28,29. Bu bulgular birlikte, TRPA1'i CIPN için bir terapötik strateji olarak hedefleyen translasyonel araştırmalar için sağlam bir deneysel temel sağlar.
Mevcut araştırmalar TRPA1 ile CIPN arasında olası bir bağlantı ortaya koymuştur. Ancak bu çalışmalar ağırlıklı olarak TRPA1'in ağrı sinyali iletimi üzerindeki doğrudan etkisi ve inflamatuar yanıttaki yerel rolüne odaklanmıştır. Ancak, TRPA1'in bağışıklık yanıtlarını modüle ederek CIPN'in genel patolojik sürecini etkileme mekanizmalarına dair sistematik araştırma ve derinlemesine inceleme eksikliği hâlâ vardır. Bu nedenle, bu makale TRPA1'in CIPN patogenezindeki rolünü araştırmaya odaklanarak CIPN'in potansiyel mekanizmalarını tartışmaktadır. TRPA1 antagonistleri ve doğal bitkiler üzerine yapılan araştırmaların mevcut durumu, TRPA1'in inhibe edilmesinin CIPN tedavisinde anti-inflamatuar bağışıklık etkileri üretmesinin mümkünlüğünü doğrulamak amacıyla özetlenmiştir. Bu makalenin yeniliği, TRPA1'in CIPN'nin patogenezindeki rolünü bağışıklık düzenleyici bir bakış açısından sistematik olarak incelemekte; önceki araştırma sınırlamaları yalnızca sinir hücreleri veya lokal iltihap üzerindeki etkilerine odaklanmıştır. Ayrıca, CIPN'i tedavi etmek için ilaçların geliştirilmesine yeni hedefler ve teorik destek sağlar; bu da büyük bilimsel öneme ve klinik uygulama değerine sahiptir.
İnceleme ve perspektif
1. CIPN için potansiyel mekanizmalar
CIPN'nin patomekanizması karmaşıktır ve kemoterapi ilaçları kaynaklı mitokondriyal disfonksiyon, oksidatif stres, bağışıklık sistemi anormallikleri, iyon kanalı düzensizliği, dorsal kök ganglion (DRG) nöron hasarı ve nöronal sitoskelet 2,30,31,32,33,34,35,36,37 ile ilişkilidir. 38,39,40,41,42. Tablo 1, CIPN'de yer alan spesifik patojenik mekanizmaların genel bir özetini sunar.
- Mitokondriyal işlev bozukluğu ve oksidatif stres
Kemoterapi ajanları mitokondriyal morfolojik değişikliklere, biyoenerjîk bozulmalara ve aşırı ROS üretimine yol açar; bu da mitokondriyal yapısal hasar, fonksiyonel bozukluk ve oksidatifstrese yol açar 12,43. Bu olaylar bağışıklık hücrelerini aktive eder, proinflamatuar sitokin seviyelerini yükseltir ve inflamatuar sinyal yollarını tetikler; nihayetinde CIPN'nin gelişimine katkıda bulunur. Özellikle, platin bazlı kemoterapi ajanları platin-DNA adduktları oluşturur ve DRG'de birikir ve burada çekirdek DNA (nDNA) ile mitokondriyal DNA (mtDNA) ile bağlanırlar. Bu, çapraz bağlanmayı teşvik eder, nükleer DNA'nın yapısını ve sentezini değiştirir, DNA/mitokondriyal hasarı indükler, ROS üretimini artırır, hasar reseptörü bağlantılı kanalları aktive eder ve nöron apoptozunu indükler. Ayrıca, OXA'nın astrositleri aktive ederek ve mitogen-aktive protein kinaz (MAPK) yolunda proinflamatuar sitokinleri yükselterek nöropatik ağrıya neden olduğuna dair kanıtlar da vardır.
Platin bazlı bileşiklerin yanı sıra, diğer kemoterapi ajanları da çeşitli mekanizmalarla mitokondriyal bütünlüğü bozabilir. Paclitaxel, hem aksonal hem de mitokondriyal taşınıma müdahale eder ve mitokondriyal geçirgenlik geçiş gözeneğinin (mPTP) açılmasına yol açar. Bu olay, mitokondriyal zar potansiyelinin kaybı, aşırı ROS oluşumu, ATP tükenmesi, kalsiyum akışı ve mitokondriyal şişlik ile sonuçlanır. Bortezomib ise proteasom aktivitesini inhibe eder ve hücresel protein homeostazını bozar, böylece mitokondriyal yapısal hasar ve fonksiyonel bozulmaya yol açar. Bu değişiklikler, mitokondriyal şişlik ve vakuolizasyon, kalsiyum düzensizliği, solunum zincirinin baskılanması, ATP üretiminin azalması ve ROS birikimi olarak kendini gösterir. Ayrıca, vinkristin (VCR), mikrotübul polimerizasyonunu inhibe eder; bu da aksonlar boyunca mitokondriyal taşınımı tehlikeye atar ve ardından membran potansiyelinin azalmasına, kalsiyum homeostazının bozulmasına ve anormal nöronal uyarılabilirliğe yol açar. Bu ajanlar toplamla, kemoterapi ilaçlarının nörotoksik etkilerindeki mitokondriyal disfonksiyonun merkezi rolünüvurgular. 41,44,45,46,47.
Benzer şekilde, mitokondriyal disfonksiyon proinflamatuar sinyalin merkezi düzenleyicisi olarak görev yaparken, iltihap ise mitokondriyal hasarı daha da kötüleştirir ve böylece nörotoksisite kısır bir döngüoluşturur 30,31. Özellikle, bu süreçte üretilen ROS, doğrudan redoks-duyarlı iyon kanalı TRPA1'i aktive eder; kalsiyum akışını, nöronal aşırı uyarılabilirliği ve soğuk ile mekanik allodini gibi karakteristik CIPN ile ilişkili semptomları oluşturur. Bu nedenle, oksidatif stres, mitokondriyal hasar, TRPA1 aktivasyonu ve CIPN'in patogenezini birbirine bağlayan kritik bir bağlantı noktası olarak görev yapar. Şekil 1, mitokondriyal disfonksiyon ve oksidatif stresin CIPN gelişimine katkıda bulunduğu mekanizmaları göstermektedir. - Bağışıklık sistemindeki anormallikler
- Nöroimmün Etkileşimler
Nöroimmün etkileşimler, CIPN'nin gelişimi ve kasıllığında kritik rol oynar. Artan kanıtlar, sinir ve bağışıklık sistemleri arasındaki iletişimin patogeneze önemli ölçüde katkıda bulunduğunu göstermektedir. Kemoterapi ajanları hücresel stres ve aksonal hasarı indükler ve makrofajlar ile glial hücrelerde Toll-like receptor 4 (TLR4) sinyalini aktive eden hasarla ilişkili moleküler desenlerin (DAMP) salınmasına yol açar. Bu aktivasyon, M1 makrofaj polarizasyonunu ve CCL2 ile CXCL10 gibi kemokinlerin salgılanmasını teşvik eder; bu hücreler CD4+ ve CD8+ T lenfositlerini ve B hücrelerini DRG'ye dahil ederken, anti-inflamatuar T hücrelerininsayısını 48,49,50,51 azaltır. Nötrofiller, kemoterapinin sitotoksik etkilerine karşı oldukça hassas olmalarına rağmen, bu da sistemik nötropeniye yol açsa, kemoterapi kaynaklı nöropati sırasında periferik sinir sistemi ve DRG'de nötrofil aktivasyonu ve infiltrasyonun arttığını birkaç çalışmabildirmiştir 32. Mast hücreler (MC'ler), bağışıklık hücrelerini alarak ve çeşitli inflamatuar sitokinler salgılayarak proinflamatuar yanıtları daha da düzenler. Ayrıca, proinflamatuar sitokinler doğal katil (NK) hücrelerin aktivitesini baskılayabilir, nöroinflamasyonu ve oksidatif stresi artırarak CIPNilerlemesini teşvik edebilir 52.
Kemoterapi ajanları ayrıca duyusal nöronlarda bağışıklık ve nöronal fonksiyonlarla ilişkili genlerin ifadesini değiştirebilir. Örneğin, VCR, aktive eden transkripsiyon faktörü 3 (Atf3) ve nörotensin (Nts) ifadesini artırır, böylece kemokin salınımını modüle eder ve bağışıklık hücrelerinin DRG'ye katılımını teşvik eder; bu da nöroinflamatuar yanıtı etkiler. OXA, inflamatuar aracıların sentezinde ve nöronal plastisitenin modülasyonunda rol alan prostaglandin-H2 D-izomeraz (Ptgds) ve küçük nükleolar RNA konak geni 1'in (Snhg1) ekspresyonunu düzenler; bu genler, inflamatuar aracıların sentezinde ve nöronal plastisitenin modülasyonunda rol oynar; böylece nöron uyarılabilirliği ve ağrı sinyal iletimini etkiler. Buna karşılık, sisplatin (CDDP) lipokalin-2 (Lcn2) ve çinko parmak homeoboxu 2'nin (Zfhx2) ifadesini değiştirerek nöronal metabolik homeostazı ve transkripsiyonel düzenlemeyi bozur ve bu nedenle nöroinflamasyon ve nöronal işlev bozukluğunuteşvik eder 53. Kemoterapi stresi altında bu gen ifade profillerinin düzensizliği, CIPN'in patogenezi sırasında nöronal hasar ile bağışıklık aktivasyonu arasındaki karmaşık etkileşimi ortaya koymaktadır.
Ayrıca, TRPA1 sadece duyusal nöronlarla değil, makrofajlar ve MC'ler gibi bağışıklık hücrelerinde de ifade edilir ve burada proinflamatuar sitokinlerin salınımını aracılık eder. TRPA1'in bu çift nöronal ve bağışıklık ekspresyonu, CIPN'in altında yatan nöroimmün çapraz iletişim ve iltihabı yönlendiren önemli bir moleküler bağlantı olarak hizmet edebilir. - Nöroinflamasyonun Alevlenmesi
Kemoterapötik ajanlar, DRG'deki uydu glial hücrelerin (SGC), omurilikteki mikroglia ve astrositlerin, aksonların Schwann hücrelerinin aktivasyonunu ve bağışıklık aracı salgılanmasınımodüle eder 54. Bağışıklık hücresi aktivasyonu, nöroinflamasyon ve nöronal duyarlılığı destekleyen tümör nekroz faktörü-alfa (TNF-α), interlökin-1 beta (IL-1β), interlökin-6 (IL-6), interlökin-8 (IL-8), interlökin-20 (IL-20) gibi proinflamatuar sitokinlerin seviyelerini artırır; Buna karşılık, interlökin-10 (IL-10) ve interlökin-4 (IL-4) gibi anti-inflamatuar sitokinlerin ekspresyonu baskılanır ve bu da iltihapın çözünürlüğünü düşürür. Paralel olarak, CCL2, CXCL1, CXCL12, CX3CL1 ve CCL3 gibi kemokinler, bağışıklık hücresi alımına ve glial-nöron etkileşimlerine katkıda bulunur. Bu değişiklikler, MAPK ve aktif B hücrelerinin nükleer faktörü kappa-ışık zinciri güçlendiricisi (NF-κB) gibi temel inflamatuar sinyal yollarını birlikte aktive eder; bu da sitokin üretimini ve nöronal aşırı uyarılabilirliği daha da artırır 54,55,56,57,58,59. Şekil 2, bağışıklık sisteminin düzensizliğinin CIPN'i neden oluşturduğu mekanizmaları göstermektedir.
Önemli olarak, son çalışmalar TRPA1'in bu inflamatuar kaskadların kritik bir aşağı akış efektörü ve amplifikasyonu olarak işlev gördüğünü göstermiştir. Proinflamatuar sitokinler ve oksidatif aracılar, duyusal nöronlar üzerindeki TRPA1 kanallarını duyarlı hale getirebilir veya doğrudan aktive edebilir; böylece nöroinflamasyonu artan nöronal uyarılma ve ağrı aşırı hassasiyetiyle ilişkilendirir; CIPN60,61.
- Nöroimmün Etkileşimler
- İyon kanalı düzensizliği
- Potasyum kanalları
Kemoterapi ajanları nöroinflamatuar bir yanıt tetikler; bu da Kir4.1 kanallarının anormal ekspresyonuna yol açar; bu da SGC'lerin aktivasyonunu, glial fibriller asit proteininin (GFAP) yukarı regulasyonunu ve proinflamatuar sitokinlerin (örneğin TNF-α ve IL-6) salınımını teşvik eder. Bu, DRG nöronların uyarılabilirliğini artırır ve CIPN33'ü indükler. - TRP Kanalları
TRP kanalları, CIPN ile ilişkili inflamatuar yanıt ve nöropatik ağrıda rol oynar ve kemoterapi kaynaklı oksidatif stresle aktive edilebilir. Bunlar arasında, ağırlıklı olarak duyusal nörlerde lokalize olan TRPA1 kanalı, kalsitonin genine bağlı peptid (CGRP) ve madde P (SP) gibi nöropeptidleri salgılayarak nörojenik iltihabı aracılık eder; bu kanallar bağışıklık hücrelerinin yaralanma noktalarına katılımını teşvik eder. Bu arada, TRPA1 glial ve bağışıklık hücrelerinde de ekspresyona girer; aktivasyonu proinflamatuar sitokinler ve kemokinlerin salınımını uyarır, bağışıklık hücresinin toplanımını daha da artırır ve inflamatuar yanıtı artırır. Toplu olarak, TRPA1 sinir ve bağışıklık sistemleri arasında kritik bir köprü görevi görür ve CIPN'de iltihaplanma ile nöronal aşırı duyarlılığın artmasına katkıda bulunur. Bu nedenle, TRPA1 antagonizması, CGRP ve SP salınımını engelleyerek, nörojenik iltihabı ve bağışıklık hücresinin çağrılmasını azaltarak ve proinflamatuar sitokinseviyelerini 62 düşürerek çift nöro-immün modülasyon yoluyla ağrıyı hafifletebilir.
Singh ve ark. OXA tedavisinin, sıçanların DRG'lerinde geçici reseptör potansiyeli vanilloid 1 (TRPV1) ve geçici reseptör potansiyeli M8 (TRPM8) ile TRPA1 arasında birlikte ifade edilmesini artırdığını ve bunun nöropatik ağrı davranışlarının artmasına yol açtığını bildirdi. Özellikle, TRPA1 ve TRPV1, kemoterapi kaynaklı ağrı sinyalinde fonksiyonel çapraz konuşmayı paylaşır; ancak mevcut klinik uygulamalar esas olarak TRPV1 agonisti kapsaisin üzerine odaklanır; bu kapsaisin neuropatik ağrıyı hafifletmek için TRPV1-eksprese eden nosiseptörleriduyarsızlaştırır 34. Bu, TRPA1'i hedefleyen analjezik stratejilerin gelecekteki geliştirilmesi için içgörü sağlar. Toplu olarak, TRPA1 oksidatif stres, bağışıklık aktivasyonu ve ağrı sinyalinin kritik bir bütünleyicisi olarak görev yapar ve CIPN'de hem analjezik hem de anti-inflamatuar tedaviler için umut vadeden bir hedef haline gelir.
- Potasyum kanalları
- DRG nöron hasarı
- Doğrudan Nöron Hasarı
DRG, CIPN'den etkilenen birincil bölgedir, ancak nöronal hasar mekanizmaları kemoterapi ajanları arasında farklılık gösterir. Şekil 3, çeşitli ilaçlar tarafından indüklenen DRG nöron hasarında yer alan belirgin yolları göstermektedir. Örneğin, PTX, makrofajların DRG'ye sızmasını teşvik eder; bu da intraepidermal sinir liflerinin (IENF) sayısını azaltır ve CIPN35'in ilerlemesini hızlandırır. Platin bazlı ajanlar DRG nöronlarında birikir, bu da mitokondriyal işlev bozukluğuna, aşırı ROS oluşumuna ve nöronal apoptoza neden olur. Talidomid doğrudan DRG nöron hasarını indükleyebilir. Ayrıca, birkaç kemoterapi ajanı sodyum, potasyum ve kalsiyum iyon kanallarının ifadesini ve işlevini değiştirerek nöron aşırıuyarılabilirliğe yol açar 36,37. DRG'deki mikrotubul yapılarının bozulması, aksonal taşınmayı daha da zorlaştırır ve Waller dejenerasyonuna yol açar; bu da nihayetinde sinir lifi kaybına ve sinir iletimininbozulmasına yol açar 38. - Dolaylı bağışıklık aracılı hasar
Doğrudan nöronal toksisiteye ek olarak, kemoterapî ajanlar dolaylı olarak DRG nöronları doğuştan gelen bağışıklık sinyallerinin aktivasyonu yoluyla zarar verebilir. Bu ajanların neden olduğu hücresel hasar, DAMP'ler salgılar; bu da TLR4 gibi desen tanıma reseptörlerini (PRR) ve gelişmiş glikasyon son ürünleri (RAGE) reseptörlerini aktive eder. Bu reseptörlerin aktivasyonu nöroinflamatuar kaskadları indüke eder, nöronal uyarılmayı artırır ve nöropatik ağrıyıartırır 39. Bu bulgular toplamda, kemoterapîtik ajanların hem doğrudan sitotoksik mekanizmalar hem de dolaylı bağışıklık aracılı yollar yoluyla DRG hasarını invaze ettiğini ve böylece CIPN'nin başlangıcına ve ilerlemesine katkıda bulunduğunu göstermektedir.
- Doğrudan Nöron Hasarı
- Nöronal sitoskeletin bozulması
Önceki çalışmalar, mikrotubul depolimerizasyonunun nöronların yapısal bütünlüğünü doğrudan zayıflattığını ve aksonal uzamayı zayıflattığını göstermiştir. Sitoskeletin sökülmesi, nöronal yüzeyde düzensizliklere yol açar ve bu mekanik değişiklikler CIPN40'ın fiziksel özellikleri olabilir. Chine ve ark. tarafından yapılan başka bir çalışma, Hsp27'nin aksonal yapıyı koruyarak CIPN'i önleyebildiğini ilk kez göstermiştir. Geleneksel anti-inflamatuar mekanizmaların aksine, Hsp27 apoptotik yolları düzenleyerek ve sitoskelet stabilitesini koruyarak nöroprotektif etkileruygular 46.
Vinca alkaloidleri (vinkristin, VCR gibi) özellikle β-tubulin uçlarına bağlanır, mil oluşumunu ve aksonal taşınmayı engeller; bu da mikrotubul depolimerizasyonuna ve nörit büyümesindekusurlara yol açar 40. Buna karşılık, paklitaksel mikrotubulları stabilize eder ve onların depolimerizasyonunu engeller; böylece aksonlar içinde elektrik sinyal iletimi ve mitokondriyal taşınımı bozar; bu da periferik sinir liflerinin demiyelinleşmesiniindükler 41. Bortezomib, proteazomal olmayan bir yol aracılığıyla aşırı mikrotübul polimerizasyonu oluşturur, nörit uzanmasını engeller ve aksonaldejenerasyonu tetikler.
Bu ilaçlar birlikte aksonal taşıma bozukluğuna, nöronal apoptoz ve sinirsel iletken kaybına yol açar ve CIPN'nin temel patolojik temelini oluşturur. Ayrıca, RhoA/ROCK/LIMK/kofilin sinyal yolunun aktivasyonu, aktin filament yeniden modellenmesini engeller ve aksonalrejenerasyonu 63 daha da inhibe eder. Sitoskelet bozulması ayrıca mitokondriyal taşıma bozuklukları ve kalpain aktivasyonu ile etkileşime girerek, CIPN64'ün ilerlemesini hızlandıran acımasız bir "yapı-enerji-apoptoz" döngüsü oluşturur.
2. TRPA1 ile ilişkili CIPN mekanizmaları
TRPA1, hücre zarında genellikle homotetramer olarak bulunan seçici olmayan bir katyon kanalıdır. TRP kanallarına özgü altı transmembran segmenti (S1-S6) içerir. Bunlar arasında, S1-S4 voltaj sensörü benzeri alanı (VSLD) oluştururken, S5 ve S6 iyonların geçtiği gözeneği şekillendirir. Bu bölgeler, kanalın aktivasyonu ve ağrılı, termal ve kimyasal uyarıları algılamadaki rolüiçin gereklidir 65. TRPA1'in uzun N-terminal bölgesi, diğer proteinlerle etkileşimleri aracılık eden ve kanal düzenlemesine katkıda bulunan birden fazla ankyrin tekrar domaini (ARD) içerir. Bu bölge aynı zamanda ağrı sinyalinde rol alan kinazların modülasyonu içinönemli bir nokta olarak hizmet eder 66,67. C-terminalinde, TRP benzeri alan transmembran bölgesine bağlanır ve kanal kapıştırmasında merkezi bir rol oynar. Bu domainin hareketi, S5 ve S6'nın yeniden düzenlenmesiyle birlikte, kanal açılması ve Ca2+ girişinin temelini oluşturur; bu da iltihap ve ağrıyla ilgili aşağı akış sinyal yollarını aktiveeder 68,69. Genel olarak, ARD'ler, transmembran helisler (S1-S6) ve TRP benzeri domain, TRPA1 aktivasyonunu ve ağrı ile inflamatuar sinyal etkisindeki rolünü belirleyen başlıca yapısal özelliklerdir. Şekil 4, TRPA1'in kemoterapi ajanları tarafından aktivasyonuyla ilgili temel yapısal alanlarını gösterirken, Tablo 2 TRPA1 61,62,70,71,72,73,74,75,76,77,78,79 ile ilişkili CIPN mekanizmalarını özetler,80,81,82,83.
- CIPN'de TRPA1'in oksidatif stres aracılı aktivasyonu
- Oksidatif stres, kemoterapötik ilaçların hem antitümör etkinliği hem de nörotoksisitesinde önemli bir katkı sağlar84. TRPA1, kemoterapi sırasında yüksek oksidatif stres koşullarında aktive olan redoks ve elektrofil hassasiyetli bir iyon kanalı olarak işlev görür. Oksitlenmiş fosfolipidler (OxPAPC'ler) ve diğer reaktif oksijen türleri (ROS) türevleri (ROS) TRPA1'in N-terminal bölgesinde sistein kalıntılarını kovalent olarak değiştirerek kanalı aktive eder ve kalsiyum akışını teşvik eder. Bu aktivasyon, CIPN patogenezinde anormal ağrı iletimi ve nörojenik iltihabı aracılık eden CGRP ve SP gibi nöropeptidler ve inflamatuar aracıların salınmasına yol açar. Bu arada, kemoterapi ilaçlarının tetiklediği periferik iltihaplanma, duyusal gangliyonlarda aşırı ROS'un oluşumuna ve birikmesine yol açar; bu da TRPA1'i daha da aktive eder ve yükseltir; böylece inflamatuar ve mekanik aşırı duyarlılığı85 artıran ROS-TRPA1 pozitif geri besleme döngüsü oluşturur.
CDDP kaynaklı CIPN de bu mekanizmaya dayanır; çünkü CDDP ağız dokularında ROS üretimini teşvik eder; bu da TRPA1'i aktive eder ve kalıcı orofasiyal ağrıyayol açar 86. Benzer şekilde, OXA TRPA1 aktivitesini birden fazla mekanizma yoluyla modüle eder. Bir yandan, OXA, glutatyon hassasiyetli bir mekanizma aracılığıyla TRPA1'i doğrudan aktive eder ve DRGnöronları 71,87'de sitoplazmik asitleşmeye yol açar. Öte yandan, OXA prolil hidroksilazı (PHD) inhibe eder; böylece TRPA1'in N-terminal bölgesinde prolin kalıntılarının hidroksillenmesini engeller; bu da kanalın ROS'a duyarlılığını artırır ve soğukuyarılara karşı tepkisini belirgin şekilde artırır 71. Buna ek olarak, OXA p38 MAPK sinyal yolunu aktive eder ve TRPA1 aracılı soğuk aşırıhassasiyeti 88'i daha da teşvik eder.
Hayvan çalışmaları bu mekanizmaları destekleyen güçlü kanıtlar sağlamıştır. OXA ile tedavi edilen yabani tip farelerde belirgin mekanik allodini ve soğuk aşırı duyarlılığı gözlemlenmişken, bu yanıtlar TRPA1 nakatlantlıfarelerde 89 anlamlı şekilde zayıflamıştır. TRPA1 aktivasyonu, oksidatif stresi ve ağrı sinyali iletimini teşvik ederek ROS üretimini artırarak ağrıyanıtını sürdürerek 90 sürdüren CIPN'nin zebrafish larva modelinde de tutarlı bulgular elde edildi. Bu bulgular toplamda, TRPA1'in ROS algılama ile ağrı güçlendirmesini birbirine bağlayan kritik bir bağlantı olarak işlev gördüğünü ve oksidatif stresin CIPN'de nöropatik ağrıyı aracılık ettiği merkezi bir yol oluşturduğunu göstermektedir.
- Oksidatif stres, kemoterapötik ilaçların hem antitümör etkinliği hem de nörotoksisitesinde önemli bir katkı sağlar84. TRPA1, kemoterapi sırasında yüksek oksidatif stres koşullarında aktive olan redoks ve elektrofil hassasiyetli bir iyon kanalı olarak işlev görür. Oksitlenmiş fosfolipidler (OxPAPC'ler) ve diğer reaktif oksijen türleri (ROS) türevleri (ROS) TRPA1'in N-terminal bölgesinde sistein kalıntılarını kovalent olarak değiştirerek kanalı aktive eder ve kalsiyum akışını teşvik eder. Bu aktivasyon, CIPN patogenezinde anormal ağrı iletimi ve nörojenik iltihabı aracılık eden CGRP ve SP gibi nöropeptidler ve inflamatuar aracıların salınmasına yol açar. Bu arada, kemoterapi ilaçlarının tetiklediği periferik iltihaplanma, duyusal gangliyonlarda aşırı ROS'un oluşumuna ve birikmesine yol açar; bu da TRPA1'i daha da aktive eder ve yükseltir; böylece inflamatuar ve mekanik aşırı duyarlılığı85 artıran ROS-TRPA1 pozitif geri besleme döngüsü oluşturur.
- TRPA1'in bağışıklık düzenlemesi ve inflamatuar ağrıdaki rolü
TRPA1, hem çevresel duyusal sinir sisteminde hem de çeşitli bağışıklık hücre tiplerinde eksprese edilen redoks-duyarlı, seçici olmayan bir katyon kanalıdır. Kemoterapi ilaçlarıyla indüklenen oksidatif, nitratif ve aldehit stresleri ile ayrıca inflamatuar aracılar ve elektrokimyasal uyarıclar tarafından aktive edilebilir; böylece CIPN sırasında inflamatuar yanıtlar ve ağrı duyarlılığında kritik rol oynar24,91,92.- TRPA1, bağışıklık hücresi aracılı nöroinflamasyonu düzenler
Periferik sinir sisteminde, TRPA1 en iyi şekilde DRG duyusal nöronlarında tanımlanır ve burada nosisepsiyonun önemli bir aracısı olarak hizmet eder. Kemoterapi sırasında, öncelikle yaralı nöronlardan ve çevresindeki Schwann hücrelerinden kaynaklanan yüksek ROS, reaktif azot türleri (RNS) ve aldehit metabolitleri doğrudan nöronal TRPA1'i aktive edebilir; bu da nöron uyarılabilirliği ve ağrı aşırıduyarlılığını artırır 93. Bu arada, duyusal nöronlarda TLR4 sinyalinin DRG nöronlarında TRPA1 ekspresyonunu artırdığı ve böylece ağrı aşırıhassasiyetini artırdığı gösterilmiştir.
Nöronların ötesinde, Schwann hücreleri oksidatif stresle aktive edilebilen TRPA1'i de ifade eder. Aktive edilmiş Schwann hücreleri, ROS sinyallerini güçlendirir ve inflamatuar aracılar salgılar; böylece nöroinflamasyonu sürdüren ve CIPN 72,73'ün gelişimine katkıda bulunan "Schwann hücresi-nöron-TRPA1" geri besleme döngüsü oluşturur. Hayvan çalışmaları, siyatik sinirde yerleşik makrofajların azalmasının Schwann hücresi TRPA1 aktivasyonu ve oksidatif stresle oluşan kanserle ilgili ağrıyı belirgin şekilde azalttığını göstermiştir; bu da Schwann hücreleri ile miyeloid hücreler arasındaki etkileşimivurgulamaktadır 73.
Duyusal nöronlara ek olarak, TRPA1 makrofajlar, T hücreleri, NK hücreleri ve MC'ler dahil olmak üzere birçok bağışıklık hücresi popülasyonunda fonksiyonelolarak ifade edilir 24,74,95. Kemoterapi sırasında üretilen ROS, RNS ve metabolitler, bu hücrelerde TRPA1'i aktive edebilir ve hücretipine bağlı olarak çeşitli bağışıklık yanıtlarına yol açar 91. Makrofajlarda TRPA1, proinflamatuar aktivasyonu baskılar, anti-inflamatuar fenotipi destekler ve makrofaj infiltrasyonunu sınırlar; böylece anti-inflamatuar ve doku koruyucu etkileruygular 14,96. Lenfositlerde TRPA1 aktivasyonu, T hücresi aktivasyonunu ve efektör fonksiyonlarını baskılar; bu da T hücresi aracılı bağışıklıkyanıtlarını olumsuz düzenler; 97; TRPA1 aracılı Ca2+ girişi ise NK hücresi sitotoksisitesini artırabilir ve sinir hasarı sonrası nöroinflamatuar yanıtlarımodüle edebilir 52,74. Mast hücrelerinde TRPA1 aktivasyonu, stres kaynaklı degranülasyon ve proinflamatuar sinyalizasyonda rol oynamış ve alerjik ve nörojenik iltihabın artmasına katkıdabulunmuştur 24,75.
Bu gözlemler birlikte, TRPA1'in nöronları, Schwann hücrelerini ve bağışıklık hücrelerini birbirine bağlayan bir sinyal merkezi olarak hizmet ettiğini, her hücre tipinde yüksek TRPA1 aktivasyonunun CIPN'in başlatılması ve sürdürülmesine katkıda bulunduğunu göstermektedir. Şekil 5 , TRPA1 aracılı nöroimmün çapraz konuşma ve ağrı sinyalinin CIPN'de önerilen mekanizmalarını göstermektedir. - İnflamatuar ağrıda TRPA1 ve CIPN ile ilişkili nosisepsiyonda
Duyusal sinir sisteminde TRPA1 ağırlıklı olarak DRG'nin birincil duyusal nöronlarında, trigeminal ganglionlarda (TG) ve vagal ganglionda (VG) lokalize olmuştur. Kemoterapîtik ajanlar tarafından indüklenen oksidatif stres ürünleri, inflamatuar aracılar ve protein kinaz sinyalasyonu (PKA/PKC) TRPA1 fosforilasyonunu ve kanal aktivitesiniartırır 26. Kanal aktivasyonu, hücre içi Ca2+ girişini artırır ve SP, nörokinin A (NK-A) ve CGRP gibi nöropeptidlerin salınımını tetikler; bu da vazodilatasyonu, plazma ekstravazasyonunu ve bağışıklık hücresinin katılımını teşvik eder; böylece nörojenik iltihaplanma ve ağrıduyarlılığı oluşur 62.
İltihap koşullarda, proinflamatuar sitokinlerin (IL-1 ailesi, TNF-α, IL-6, IL-8) ve kemokin (CXCL5/CXCR2) yüksek seviyeleri ROS üretimini ve TRPA1 aktivasyonunu artırır; bu da DRG nöronlarının membran depolarizasyonuna ve aşırı uyarılabilirliğine yol açar ve nihayetinde nöropatik ağrıya katkıda bulunur. Ayrıca, NGF gibi inflamatuar aracılar TRPA1 ifadesini artırır ve iltihap ile ağrıyı sürdüren pozitif bir geri besleme döngüsüoluşturur 14,98,99,100. TRPA1 ayrıca hem periferik hem de sentral sensibilizasyona katılarak ağrı iletiminiartırır 101.
Ayrıca, TRPA1, iltihapla ilgili yolları modüle ederek nosiseptif sinyalleri destekler. Yukarı regülasyonlu TRPA1, Caa2+ girişini artırır ve pannexin-1 (PANX1) yolunu aktive eder, adenozin trifosfat (ATP) salınımını artırır. Nörotransmitter olarak görev yapan ekstraselüler ATP, ağrı aşırıhassasiyetine 102 katkıda bulunur. Kemoterapötik ajanlar ayrıca bradikinin B2 reseptörlerinin aktivasyonu ve mast hücrelerinde aşağı akış PLC/PKCε sinyalizasyonu yoluyla TRPA1'i hassaslaştırabilir ve CIPN ile ilgili ağrıyıkötüleştirir 103. Buna karşılık, loperamid gibi opioid bileşiklerin TRPA1 ve voltaj kapılı sodyum kanalı (VGSC) aktivitesini baskıladığı, mikrogliyal aktivasyonu ve oksidatif stresi inhibe ettiği ve dolayısıyla hiperaljeziyi hafiflettiği gösterilmiştir.
Özetle, TRPA1, CIPN'de oksidatif stres ile inflamatuar sinyalizasyonu birbirine bağlayan önemli bir moleküler hedef olarak hizmet eder. Bağışıklık hücreleri ile duyusal nöronlar arasındaki çift yönlü etkileşimleri koordine ederek, TRPA1 sadece iltihabı başlatıp yaymakla kalmaz, aynı zamanda ağrıyı da artırır; bağışıklık regülasyonu, nöroinflamasyon ve nosiseptif aşırı duyarlılık arasında kritik bir köprü görevi görür. - TRPA1 aracılı iyon kanalı çapraz saçmalığı ve DRG nöron duyarlılığı
TRPA1, özellikle DRG'de yaralı duyusal nöronlarla yüksek derecede ekspreslenir ve CIPN'yi aracı kılan bir iyon kanalı olarak görev yapar. Nöron uyarılabilirliğini modüle eder ve birden fazla iyon kanalıyla etkileşim yoluyla nosiseptif sinyal iletimi destekler. Örneğin, TRPV1'in aktivasyonu TRPA1 hassasiyetini artırabilir ve her iki kanal da sıklıkla birlikte eksprese edilir; bu da soğuk allodiniye ve mekanik hiperaljezi 76,106'ya sinerjik olarak katkıda bulunur. Ayrıca, TRPA1, soğuğa duyarlı kanal TRPM8 ile tamamlayıcı işlevler sergiler: TRPM8, 25-28 °C aralığında zararsız soğutma hissleri sağlarken, TRPA1 17 °C'nin altında aktive olur ve şiddetli, zararlı soğuk uyaranlarını tespit etmekten sorumludur. Her iki kanalın anormal aktivasyonu, CIPN hastalarında yaygın olarak gözlemlenen soğuk aşırı hassasiyetinde roloynamıştır 77. Kemoterapi kaynaklı oksidatif stres ve artan Ca2+ kanal aktivitesi, TRPA1 kanallarını daha da aktive edebilir ve bu da voltaj kapılı Na+ kanallarına bağlı sık sık aksiyon potansiyeli ateşlenmesine yol açar (Nav1.7)78,79. Ayrıca, Zn2+ doğrudan TRPA1'i aktive ederek CGRP80'in salınımını teşvik edebilirken, voltaj kapılı K+ kanalları (Kv7) bu süreçte olumsuz bir düzenleyicietki uygular. Toplu olarak, TRPA1 ile TRPV1, TRPM8, Ca2+, Na+, K+ ve Zn2+ kanalları dahil diğer iyon kanalları arasındaki işbirlikçi etkileşim, CIPN'de nöronal uyarılabilirliği ve nosiseptif iletimi artırır.
Ayrıca, hücre içi pH homeostazı TRPA1 aktivitesini modüle edebilir. Na+/H+ değiştirici 1 (NHE1), hücre içi pH'ı düzenleyerek TRPA1 hassasiyetini etkiler. İltihap veya kemoterapi kaynaklı yaralanma koşullarında, TRPA1 ve NHE1 DRGnöronları 87,107'de etkileşir ve hücre içi asitleşme TRPA1'in yanıt vermesini artırır; bu da hareket potansiyelinin sıklığını artırır ve glutamat ile CGRP 82,83 gibi nörotransmitterlerin salınımını artırır. Bu süreç, inflamatuar ağrı ve soğuk aşırı hassasiyetine katkıda bulunur ve nöroinflamasyonu daha da destekler. Buna karşılık, DRG nöronlarında TRPA1 ekspresyonunun veya fonksiyonunun inhibisyonu, nosiseptif iletim ve nöroinflamatuar yanıtları belirgin şekilde azaltır108.
Özetle, TRPA1, CIPN'de oksidatif stres ile iyon kanalı sinyalini birbirine bağlayan merkezi bir moleküler merkez olarak hizmet eder. Çoklu iyon kanalları ve hücre içi düzenleyici mekanizmalarla kapsamlı çapraz iletişim yoluyla TRPA1, duyusal nöronların aşırı uyarılmasını ve ağrı aşırı duyarlılığını teşvik eder; CIPN ile ilişkili ağrının tedavisinde kritik bir moleküler hedeftir. Şekil 6 , TRPA1'in nöronal uyarılabilirliği modüle etme mekanizmasını ve çeşitli iyon kanallarıyla etkileşimler yoluyla nosiseptif sinyalleri nasıl artırdığını göstermektedir.
- TRPA1, bağışıklık hücresi aracılı nöroinflamasyonu düzenler
3. CIPN tedavisinde TRPA1'i hedefleme potansiyeli
Önceki bölümde, TRPA1'in nöroinflamatuar bir kaskad yanıtı tetikleyerek CIPN'i hafifletmek için kilit bir hedef olduğunu açıkladık. TRPA1'in etki mekanizması iki unsurdur: bir yandan TRPA1, nöroinflamatuar kaskad tarafından doğrudan modüle edilir ve CIPN'in patolojik sürecine katılır; öte yandan, TRPA1 inflamatuar sinyallerle etkileşime girer; bu sinyaller nörotoksik yanıtları aracılık eder ve nöron hasarını daha da kötüleştirir. Bu nedenle, TRPA1'in hedefli inhibisyonu, oksidatif stresi ve nöroinflamatuar yanıtları azaltabilir, ağrı sinyallerini azaltabilir ve nihayetinde CIPN ile ilişkili semptomları iyileştirebilir. Şekil 7 , TRPA1'in spesifik antagonistler veya doğal bitkisel ajanlar tarafından inhibisyonunun CIPN ile ilişkili nöropatik ağrıyı azalttığı önerilen mekanizmaları göstermektedir.
- TRPA1 antagonisti
TRPA1, dışsal maddeler (örneğin hardal yağı ve sinnamaldehit) ve endojen maddeler (örneğin oksidatif stres ürünleri ve iltihap aracılar) tarafından aktive edilebilir ve ağrı, kaşıntı ve iltihaplanmayaneden olabilir 109. Bu nedenle, TRPA1 ağrı yönetimi, iltihap hastalıkları ve nörolojik bozukluklar dahil olmak üzere geniş uygulama potansiyeline sahip terapötik bir hedef olarak kabul edilmiştir. Bu nedenle, TRPA1 antagonistlerini araştırmak ve geliştirmek çok önemlidir.
Birçok TRPA1 antagonisti, CIPN 109,110,111,112,113,114,115,116,117'yi hafifletmede potansiyel terapötik değer göstermiştir. Birincil mekanizmaları, TRPA1 aracılı oksidatif stres yanıtlarını, kalsiyum akışını ve nöroinflamatuar sinyalleşmeyi bastırarak TRPA1 aktivitesi üzerinde antagonistik etkiler uygular. Preklinik çalışmalarda, seçici TRPA1 blokeri HC-030031, OXA ve CDDP kaynaklı mekanik ve soğuk aşırı hassasiyetini anlamlı şekildehafifletmiştir 28. Bu arada, GRC-17536 ve LY-3526318 gibi yeni nesil antagonistler, diyabetik nöropati, kronik öksürük ve osteoartrit kaynaklı nöropatik ağrı için faz II klinik denemelerine geçti ve iyi tolere edilebilirlik ve önetkinlik 109.113 gösterdi.
Tablo 3, temsil TRPA1 antagonistlerinin mevcut gelişim durumu ve klinik uygulamalarının özetini sunar. Bu çalışmalar, nöropatik ağrı tedavisinde TRPA1 antagonistlerinin translasyonel potansiyelini destekleyen klinik kanıtlar sunmaktadır. Ancak, çoğu TRPA1 antagonisti hâlâ düşük biyoyararlanılım ve potansiyel hedef dışı etkilernedeniyle sınırlıdır 115,118,119 ve henüz CIPN'e özgü klinik değerlendirmeye girmemiştir. Gelecekteki araştırmalar, bileşik seçiciliğini ve farmakokinetik özelliklerini optimize etmeye odaklanmalı, ayrıca TRPA1 inhibisyonunun bu bağlamdaki terapötik önemini doğrulamak için özellikle CIPN'i hedefleyen klinik denemeler tasarlamalıdır.
Doğrudan antagonizmanın yanı sıra, TRPA1 aktivitesinin diğer moleküler hedefler üzerinden modülasyonu da CIPN'de umut vaat etmiştir. Sigma-1 reseptörleri çeşitli iyon kanallarında düzenleyici işlevler uygular ve Sigma-1 reseptör antagonistlerinin, TRPA1 kanallarının plazma zarı ifadesini ve fonksiyonunu önemli ölçüde inhibe ettiği gösterilmiştir; böylece OXA kaynaklı CIPN model farelerde ağrı semptomlarının ilerlemesiniönlerler 89. Trevisan ve ark. tarafından yapılan bir çalışma, bortezomib tarafından indüklenen CIPN aşırı duyarlılığının belirtilerinin, kemoterapi120 öncesi veya sırasında TRPA1 antagonisti HC-030031 veya antioksidant α-lipoik asit kullanımıyla etkili bir şekilde önlenip hafifletilebileceğini göstermiştir. Ayrıca, kemoterapi ilaçları kaynaklı nörotoksisite bağlamında, TRPA1 inhibitörleri kalsiyuma bağlı proinflamatuar sinyalleri azaltarak nörolojik hasarı hafifletebilir.
Özetle, TRPA1 antagonistleri, bu kanalın fonksiyonunu modüle ederek ve diğer mekanizmalarla birlikte ağrı aşırı hassasiyetini azaltmak ve sinir hasarını hafifletmek için CIPN'nin önlenmesi ve tedavisinde önemli roller oynar. - TRPA1 aktivitesinin modülatörleri CIPN tedavisi için yeni seçenekler olarak
TRPA1, nöroinflamatuar kaskad yanıt ve nörotoksik hasar yoluyla CIPN'in patolojik süreçlerinde yer almakta ve CIPN tedavisinde yeni bir hedef olabilir.
Birçok çalışma, bazı doğal bitkilerin ve aktif bileşenlerinin TRPA1 kanal aktivitesinin düzenlenmesiyle yakından ilişkili olduğunu ve anti-inflamatuar ve analjezik etkiler gibi biyolojik etkiler sergilediklerini, böylece CIPN'in önlenmesi ve tedavisi için potansiyel stratejiler sağladığını göstermiştir. Örneğin, liquiritinin önemli anti-inflamatuar özelliklere sahip olduğu gösterilmiştir121, allisin ise antioksidan ve anti-inflamatuar özellikleri nedeniyle ağrı aljezik potansiyeli gösterir122; her iki bileşik de TRPA1 kanal aktivitesinin modülasyonunda yer alır. Bu bulgulara dayanarak, bu doğal bileşiklerin TRPA1 aktivitesinin düzenlenmesiyle CIPN ile ilişkili ağrı algısını ve nöroinflamatuar yanıtları hafifletebileceği ve böylece potansiyel terapötik etkiler geliştirebileceği öne sürülmektedir. Daha ileri çalışmalar, mentolün TRPA1 kanalları üzerinde çift yönlü düzenleyici bir etki gösterdiğini, TRPA1'i düşük konsantrasyonlarda aktive ederken yüksek konsantrasyonlarda etkinliğini inhibe ettiğini ortaya koymuştur. Bu nedenle mentolün uygun kullanımı, TRPA1 aktivitesini modüle ederek CIPN hastalarında analjezik ve anti-inflamatuar etkiler elde edebilir123. Benzer şekilde, geleneksel olarak kan dolaşımını teşvik etmek için ısıtıcı tedavi olarak kullanılan tarçın, ana aktif bileşeni olarak sinnamaldehit içerir. Li ve ark. ise cinnamaldehitin TRPA1 reseptörlerini aktive ettiğini, kahverengi yağ dokusunda termogenezi teşvik ettiğini ve böylece vücut sıcaklığını korumaya ve soğuk hassasiyetini hafifletmeye yardımcı olduğunu bildirdi124. Ayrıca, sinnamaldehit nükleer faktör eritroidle ilişkili faktör 2'yi (Nrf2) aktive ederek antioksidan yanıtı artırır125. Mentol, TRPA1'i daha yüksek konsantrasyonlarda inhibe ederek CIPN'ye özgü mekanik ve soğuk allodinini rahatlatabilirken, sinnamaldehit TRPA1 aktifleyici ve Nrf2 aracılı antioksidan mekanizmaları aracılığıyla kemoterapi kaynaklı oksidatif stresi dengeleyebilir ve CIPN hastalarında soğuk intoleransını iyileştirebilir. Ayrıca, bergenin monohidrat, ligustrazin, saikosaponin ve Notopterygium incisum'un su özlerinin nöropatik ağrıyı azalttığı gösterilmiştir126,127,128,129.
Tablo 4 TRPA1 ligandlarının doğal bitkisel kaynaklarını ve CIPN'i hafifletmedeki olası mekanizmalarını özetler. Bu bulgular, TCM bileşenlerinin CIPN'de nörotoksisiteyi azaltmadaki potansiyelini vurgulamaktadır. Çeşitli doğal bileşikler potansiyel terapötik etkileri olan TRPA1 modülatörleri olarak tanımlanmış olsa da, çoğu hâlâ in vitro ve hayvan araştırma aşamalarını da inceledi ve CIPN'deki etkinliğinin kanıtları esas olarak preklinik modellerden türetilmiştir. Buna karşılık, sadece mentol sınırlı insan kaynaklı kavram kanıtına ve devam eden kayıtlı klinik denemelere sahiptir130. Bu bulgular topluca, TRPA1 hedefleyen doğal ürünlerin CIPN ile ilişkili nörotoksisiteyi azaltmada büyük umut vaat ettiğini, ancak translasyon potansiyelini ve terapötik etkinliğini doğrulamak için daha iyi tasarlanmış klinik çalışmalara ihtiyaç olduğunu göstermektedir.
Bitki özetlerinden tanımlanan doğal TRPA1 modülatörleri, sadece ağrı yönetimi için yeni terapötik perspektifler sağlamakla kalmaz, aynı zamanda CIPN tedavisi için potansiyel doğal kaynakları da temsil eder. Artan kanıtlar, doğal bileşiklerin kemoterapi kaynaklı nörotoksik semptomları TRPA1 aşırı aktivasyonunu bastırarak veya kanal üzerinde çift yönlü düzenleyici etkiler uygulayarak hem analjezik hem de anti-enflamatuar sonuçlar elde ederek iyileştirebileceğini göstermektedir. Ancak, umut vadeden preklinik potansiyellerine rağmen, sistematik klinik doğrulama yetersiz kalmaktadır. Ayrıca, bu bileşikler genellikle çoklu hedef ve çok yol düzenleyici özellikler sergiler; bu da TRPA1 modülasyonunun genel terapötik etkilerine ne kadar özel katkısını tanımlamayı zorlaştırır. Gelecekteki çalışmalar, doğal TRPA1 modülatörlerinin CIPN'i etkilediği moleküler mekanizmaları aydınlatmaya, TRPA1 ile diğer iyon kanalları veya sinyal yolları arasındaki sinerjistik etkileşimleri araştırmaya ve etkinliklerini ve güvenliğini doğrulamak için iyi tasarlanmış klinik denemeler yürütmeye odaklanmalıdır. Bu tür çabalar, TRPA1 hedefleyen doğal ajanların CIPN yönetimi için pratik stratejilere dönüştürülmesinde hayati olacaktır.
4. Tartışma
Uluslararası Kanser Araştırma Ajansı'nın (IARC) en son istatistiklerine göre, 2022 yılında yaklaşık 20 milyon yeni kanser vakası olacak ve bu kanser hastalarının yaklaşık %50'si sonunda kanser veya komplikasyonlarından ölecek. IARC tahminleri ayrıca 2050 yılında yıllık yeni kanser vakalarının 35 milyonu aşacağını gösteriyor. Bu nedenle kanser, dünya çapında önemli bir halk sağlığı sorunudur ve hastalıkların küresel yüküne en büyük katkılardanbiridir. Kanser için yeni tedaviler (örneğin, hedefli tedaviler ve immünoterapi) araştırmaya ve geliştirilmeye devam etse de, kemoterapi kanser tedavisinde hâlâ merkezi bir rol oynamaktadır. CIPN, kemoterapinin yaygın bir yan etkisidir ve tedavi sürecini ve etkinliğini etkiler. Ancak CIPN'nin patogenezi belirsizdir ancak mitokondriyal işlev bozukluğu, oksidatif stres, bağışıklık sistemindeki anormallikler, iyon kanalı düzensizliği ve DRG nöron hasarı ile ilişkiliolabilir 2. Şu anda ASCO tarafından CIPN hastalarında ağrı yönetimi için yalnızca duloksetin önerilmiştir. Analjezik etkinliği gösterilmesine rağmen, duloksetinin genel klinik faydası orta düzeyde olup, öncelikle CIPN'i önlemekte veya altta yatan patolojik değişiklikleri tersine çevirmek yerine semptomatik rahatlama sağlar8. Bu nedenle, CIPN'nin potansiyel hedeflerini araştırmak, ilaç geliştirme ve hassas tedavi için önemlidir.
Nosiseptif sinyalizasyonun temel aracıları olan TRP kanalları, CIPN tedavilerinin geliştirilmesi bağlamında giderek daha fazla ilgi görmektedir. TRP kanalları arasında, TRPA1'in çeşitli kemoterapötik ajanlarla ağrı aşırı duyarlılığının indüklenmesinde kilit bir faktörolduğu öne sürülmüştür. Bu nedenle, bu çalışma TRPA1'in CIPN'nin patogenezindeki rolüne odaklanmakta ve Şekil 8'de gösterildiği gibi, nöropatik ağrıyı nasıl aracılık ettiğini daha ayrıntılı olarak açıklamaktadır. Bu kanal, oksidatif stresle anormal mekanik ağrı ve soğuk aşırı hassasiyeti tetiklemekiçin aktive edilir 61,70,71 ve bağışıklık hücrelerini modüle ederek nöroinflamasyonu yönlendirerek inflamatuar nosisepsiyondayer alır 62,72,73,74,75. Ayrıca, TRPA1 kanalları TRPV1, TRPM8 ve Ca2+, Nav1.7, Zn2+ ve Kv7 gibi voltaj kapılı kanallarla etkileşime girer. Bu etkileşimler, nöropatik ve inflamatuar ağrı yanıtlarınıartırır 76,77,78,79,80,81. Böyle sinerjik modülasyonun önemli klinik sonuçları vardır. TRPA1, TRPV1 ve TRPM8 duyusal nöronlarda birlikte eksprese edildiği ve birbirlerinin aktivitesini karşılıklı olarak düzenleyebildiği için, çift veya çoklu hedefli inhibitörler, yalnızca TRPA1'i hedefleyenlere göre daha belirgin analjezik etkiler üretebilir. Ayrıca, bu sinerjik etkileşim, her bileşiğin daha düşük dozlarda benzer analjezik etkililiğe ulaşmasını sağlar ve böylece potansiyel yan etkileri azaltır. Benzer şekilde, CIPN nörotoksisitesinin hedefi olan DRG TRPA1 tarafından etkilenir. TRPA1'in aktivasyonu, DRG nöronların uyarılabilirliğini artırır; bu da DRG'den nörotransmitterlerin salınımını teşvik eder ve nosiseptif semptomlara karşı aşırı duyarlılığın artmasınayol açar 82,83. Sonuç olarak, TRPA1, CIPN hastalarında nöropatik ağrıyı nöroinflamatuar bir kaskad yanıtı tetikleyerek şiddetlendirebilir. Bu nedenle, TRPA1'i antagonize etmek, CIPN'in inflamatuar ve ağrılı semptomlarını etkili bir şekilde hafifletebilir; bu da TRPA1 antagonistleri ile doğal bitkilerin uygulanmasının çok önemli olduğunu gösterir.
TRPA1 antagonistlerinin etkinliği hayvan modellerinde etkili şekilde gösterilmiştir. Örneğin, TRPA1 KO farelerinde ve TRPA1 antagonistlerinin (örneğin, HC-030031) uygulanmasında, kemoterapötik ilaçlarla indüklenen nöropatik ağrı semptomları anlamlı şekildeazalır 86,89. Ancak, TRPA1 antagonistlerinin uygulanmasında hâlâ sınırlamalar vardır; çünkü CIPN hastaları için klinik denemeler henüz yapılmamış olup, TRPA1 antagonistlerinin insanlarda güvenlik ve etkinliğinin daha ileri değerlendirilmesi ve doğrulanması gerektiğini öne sürmektedir. Örneğin, kemirgenler ile insanlar arasındaki TRPA1 ekspresyon kalıpları ve antagonistlere duyarlılık farklılıkları, preklinik ve klinik sonuçlar arasında farklılıklara yol açabilir. Ayrıca, hayvanlardan insanlara deneysel dozların dönüşümü belirsiz kalmaktadır ve bu da ilaç geliştirmenin karmaşıklığını daha da artırmaktadır.
Ayrıca, TRPA1'in CIPN'de terapötik hedef olarak nasıl işlev gördüğü kesin mekanizmalar henüz tam olarak açıklanmamış ve dokuya özgü rolleri daha fazla araştırma gerektirmektedir. TRPA1'in duyusal nöronlar, Schwann hücreleri ve bağışıklık hücrelerinde geniş yayımlanması göz önüne alındığında, farklı hücresel bağlamlarda spesifik işlevlerini ayırt etmek hâlâ zordur. Mevcut çalışmaların çoğu sistemik TRPA1 antagonistlerine dayanır, bu da gözlemlenen etkileri belirli hücresel bölümlere kesin olarak atfetmeyi zorlaştırır. Vurgulanmalıdır ki, duyusal nöronlarla ifade edilen TRPA1 doğrudan nosiseptif sinyal iletimi sağlarken, Schwann hücrelerinde ve bağışıklık hücrelerinde TRPA1 öncelikle ağrı hassasiyetini ikincil olarak modüle eden inflamatuar ve mikroçevresel süreçleri düzenler. Bu nedenle, TRPA1'in dokuya özgü silinmesi önemli mekanik içgörüler sağlar. TRPA1'in nöronal spesifik kaybı, nosiseptor uyarılabilirliği ve ağrı iletimindeki doğrudan rolünü açıklayabilirken, Schwann hücresine özgü delesiyon TRPA1'e bağlı oksidatif stres ve glial-nöron etkileşimlerinin sürekli nöroinflamasyonu nasıl teşvik ettiğini açıklayabilir. Önemli olarak, bağışıklık hücresine özgü TRPA1 etkisi modelleri (örneğin, makrofajlar veya T hücrelerinde) CIPN'de nöroimmün çapraz iletişim ve inflamatuar düzenlemeye immün TRPA1 sinyalinin katkısını tanımlamaya yardımcı olur. Bu tür yaklaşımlar, doku ve hücre spesifik TRPA1 fonksiyonlarını anlamamızı önemli ölçüde derinleştirir ve daha hassas terapötik stratejilerin geliştirilmesini kolaylaştırır. Bu arada, CIPN tedavisinde TRPA1 antagonizmasının birçok yönü daha fazla araştırılmaya hak kazanmamaktadır. Örneğin, TRPA1'in farklı kemoterapötik ajanlar tarafından indüklenen CIPN'de farklı fonksiyonel roller gösterip göstermediği ve etkinliğinin optimal terapötik etkinliğe ulaşmak için daha hassas şekilde nasıl modüle edilebileceği önemli ve çözülmemiş sorular olarak kalmaktadır.
Bu bağlamda, TRPA1 antagonistlerinin doğal bitkisel bileşikler veya geleneksel Çin tıbbı formülasyonlarıyla birleşik kullanımı, umut verici bir terapötik yaklaşımı temsil etmektedir. Bu tür kombinasyon tedavileri sadece ilaçla ilişkili toksisiteyi azaltmakla kalmaz, aynı zamanda çoklu hedefli sinerjik etkilerle etkinliği artırabilir. Genel olarak, antagonize TRPA1 bağışıklık yanıtlarını modüle edebilir ve nöroinflamatuar zincirleri kesebilir; böylece nörotoksisite ve nöron hasarını etkili bir şekilde azaltarak CIPN'in klinik yönetimi için yeni içgörüler ve potansiyel stratejiler sunar.
Sonuçlar
Bu inceleme, TRPA1 ile CIPN arasındaki karmaşık ilişkiyi ve TRPA1 antagonizmasının tedavisindeki potansiyel anti-inflamatuar etkilerini kapsamlı bir şekilde incelemektedir. Preklinik çalışmalar, farmakolojik inhibitörü veya TRPA1'in genetik silinmesinin nöroinflamasyonu baskılayabileceğini, nöronal uyarılmayı azaltabileceğini ve nörotoksisiteyi azaltabileceğini, böylece CIPN semptomlarını hafifletebilecek anti-enflamatuar ve analjezik etkiler oluşturabileceğini göstermiştir. Ancak mevcut araştırmalarda hâlâ bazı sınırlamalar bulunmaktadır. Gelecekteki çalışmalar, TRPA1'in CIPN'deki etkisinin altında yatan spesifik moleküler mekanizmaları daha da incelemeli, hedefleme stratejilerini optimize etmeli ve TRPA1 antagonistlerinin güvenliği ve etkinliğini doğrulamak için büyük ölçekli klinik çalışmalar yürütmelidir. Bu, CIPN hastaları için daha hassas ve etkili tedavi seçenekleri sağlayacaktır.
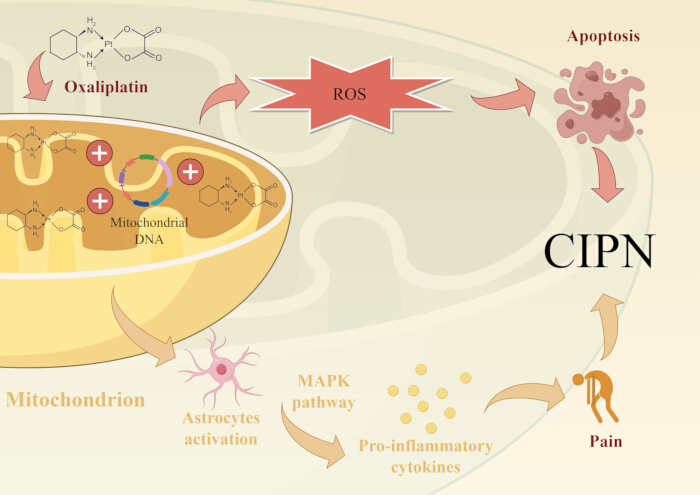
Şekil 1: Mitokondriyal işlev bozukluğu ve oksidatif stres kaynaklı CIPN mekanizmaları. Platin bazlı kemoterapi ajanları, DRG'de biriken platin-DNA adduktları oluşturur ve burada nDNA ve mtDNA'ya bağlanırlar. Bu durum DNA/mitokondriyal hasarı indükler, ROS üretimini artırır ve nöronal apoptozu indükler. Ayrıca, OXA'nın astrositleri aktive ederek ve MAPK yolunda proinflamatuar sitokinleri yükselterek nöropatik ağrıya neden olduğuna dair kanıtlar bulunmaktadır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
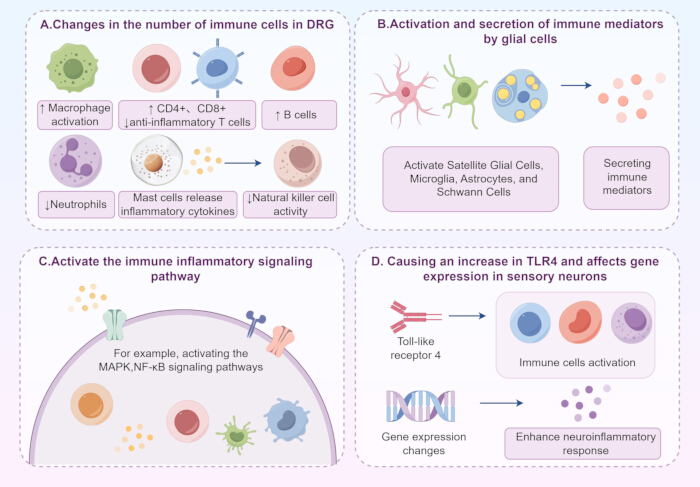
Şekil 2: Bağışıklık sistemindeki anormalliklerle CIPN indüksiyonunun mekanizmaları. (A) Kemoterapi ajanları makrofaj aktivasyonuna, DRG'deki T lenfositlerinin (CD4+), sitotoksik T hücrelerinin (CD8+) ve B hücrelerinin sayısının artmasına ve anti-inflamatuar T hücreleri ile nötrofil sayısının azalmasına yol açar. MC'ler, bağışıklık hücrelerini toplayarak ve CIPN'de çeşitli inflamatuar sitokinler salgılayarak CIPN'nin ilerlemesine katkıda bulunur; böylece NK hücrelerinin aktivitesini azaltır; bu da nöroinflamasyon ve oksidatif stresi artırır. (B) Kemoterapi ajanları, DRG'deki SGC'ler, omurilikteki mikroglia ve astrositler, aksonlardaki Schwann hücreleri aracılığıyla aktivasyon ve bağışıklık aracı salgılanmasını modüle eder; bu da duyusal nöronların uyarılabilirliğini artırır ve CIPN'de ağrı aşırı duyarlılığını artırır. (C) MAPK ve NF-κB gibi immüno-inflamatuar sinyal yollarının aktivasyonu, nöroinflamatuar yanıtların şiddetlenmesinde de önemli bir rol oynar. (D) Kemoterapi ajanları ayrıca bağışıklık hücrelerini aktive edebilir ve TLR4'ü artırarak ve ilişkili gen düzensizliğini tetikleyerek nöroinflamatuar yanıtları artırabilir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
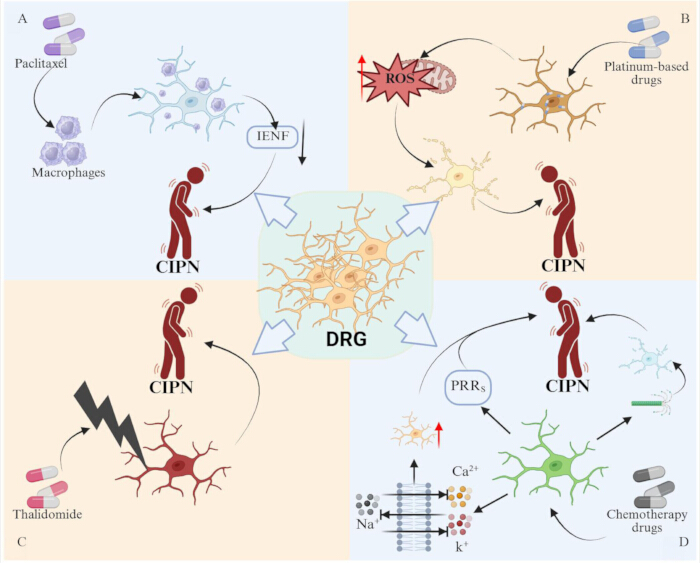
Şekil 3: DRG, kemoterapî ajanların CIPN'i tetiklemesi için önemli bir hedeftir. (A) PTX, makrofajların DRG'ye sızmasına yol açabilir, bu da IENF sayısının azalmasına yol açar. (B) Platin ilaçlar DRG'de birikir, bu da mitokondriyal işlev bozukluğuna ve artan ROS seviyelerine yol açar; bu da nöronal apoptozu teşvik eder. (C) Talidomid doğrudan DRG'ye zarar verebilir. (D) Kemoterapi ajanları ayrıca sodyum, potasyum ve kalsiyum iyon kanallarını değiştirerek, mikrotubul yapısını bozarak ve PRR'leri aktive ederek DRG nöronlarına zarar verebilir. Bu şeklin daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
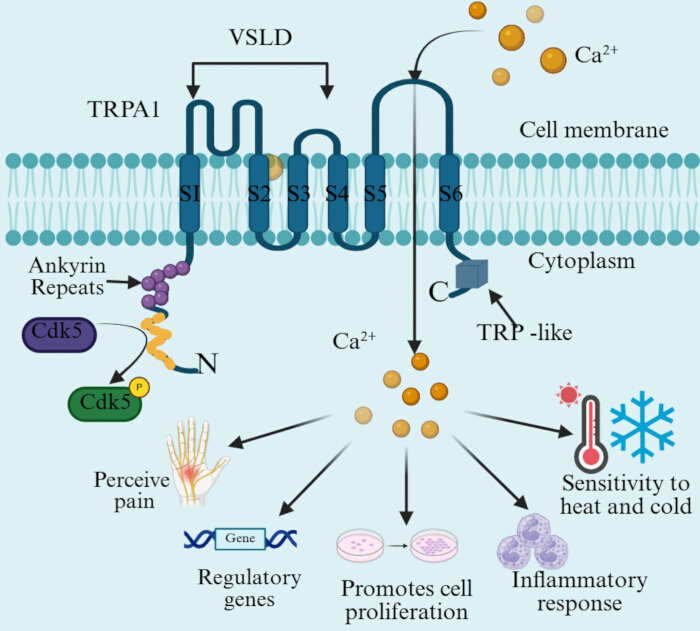
Şekil 4: TRPA1'in kemoterapi ajanları tarafından aktivasyonuyla ilgili temel yapısal alanları. TRPA1 kanalı, altı transmembran α-helikal parça (S1-S6) içerir. Bunlar arasında S1-S4 VSLD'yi oluştururken, S5 ve S6 içbükey bir gözenek döngüsü yapısı oluşturur. TRPA1 kanalının hem NH2 hem de COOH uçları sitoplazmada yer alır. Daha uzun NH2 uçlarından biri ARD'ler ve Cdk5 bölgesini içerirken, TRPA1'in C-terminali TRP benzeri bir domain içerir ve transmembran yapısal domaine bağlıdır. Kanal aktivasyonu Ca2+ inakışına neden olabilir; bu da gen ifadesini düzenleyen, hücre çoğalmasını teşvik eden ve inflamatuar yanıtları tetikleyen hücre sinyal yollarını tetikler. TRPA1'in yapısı, ağrı ve ısı/soğuk hassasiyetini algılamadaki işlevini belirler. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
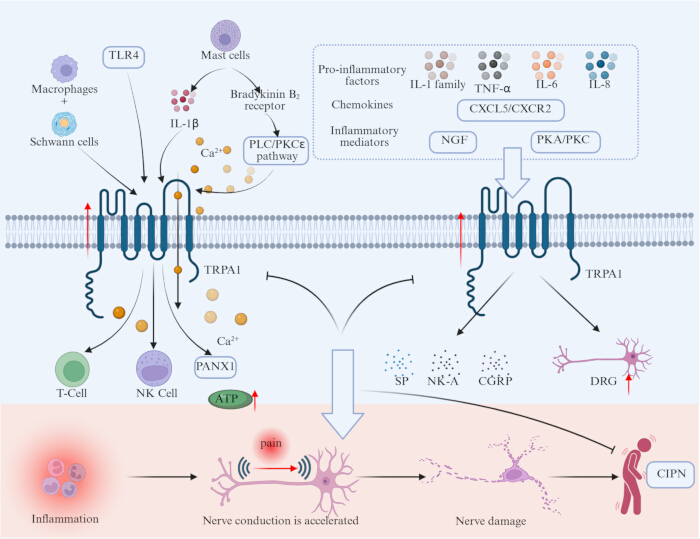
Şekil 5: TRPA1, bağışıklık hücresi aracılı nöroinflamatuar nosisepsiyonu düzenler. Bağışıklık hücreleri (makrofajlar, Schwann hücreleri ve MC'ler), proinflamatuar faktörler (IL-1 ailesi, TNF-α, IL-6, IL-8), kemokinler (CXCL5/CXCR2), inflamatuar aracılar (NGF, PKA/PKC) ve TLR4 TRPA1 kanallarını aktive edebilir. TRPA1 kanallarının aktivasyonu, hücre içi Ca2+ konsantrasyonunu artırabilir; bu da SP, NK-A ve CGRP salınımını teşvik eder, bağışıklık hücrelerini (T hücreleri, NK hücreleri) etkiler ve iltihapla ilgili yolları (PANX1 yolu) modüle eder; böylece DRG nöronların uyarılabilirliğini artırır ve nöroinflamasyon ile kalıcı ağrıyı sürdürür. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
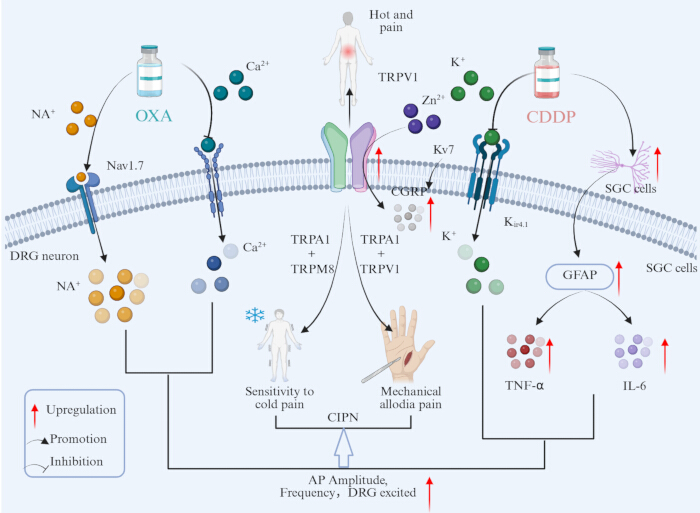
Şekil 6: TRPA1, ağrı sinyalini hızlandırmak için iyon kanallarını modüle eder. TRPA1 ve TRPM8 soğukluk aşırı hassasiyetinde, TRPA1 ve TRPV1 ise mekanik allodinide yer alır. Ayrıca, voltaj kapılı Ca2+, Nav1.7, Zn2+, Kv 7 ve Kir4.1 kanallarına sahip TRPA1 kanalları, inflamatuar aracıların (örneğin CGRP, GFAP) ve proinflamatuar faktörlerin (örneğin TNF-α, IL-6) salınımını teşvik eder; bu da DRG nöronlarının aşırı uyarılabilirliğini tetikler; bu da nöropati ve inflamatuar ağrıyı şiddetlendirmede sinerjik bir etki yaratır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
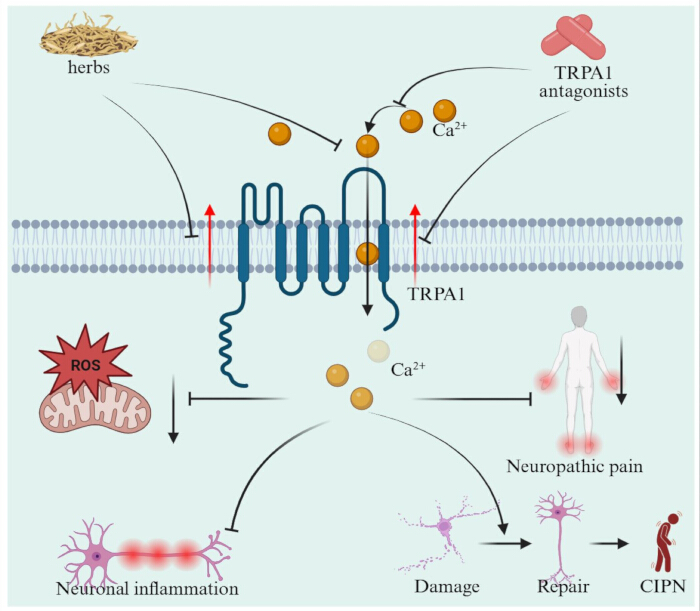
Şekil 7: CIPN tedavisinde TRPA1'i hedefleme potansiyeli. TRPA1 antagonistleri ve doğal bitkilerin kullanımı, TRPA1 kanal aktivitesini engelleyerek Ca2+ akısı ve oksidatif stresi azaltabilir; bu da nöroinflamatuar yanıtları bastırır ve nöropatik ağrıyı azaltır; nihayetinde sinir hasarını azaltır ve CIPN ile ilişkili semptomları iyileştirir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
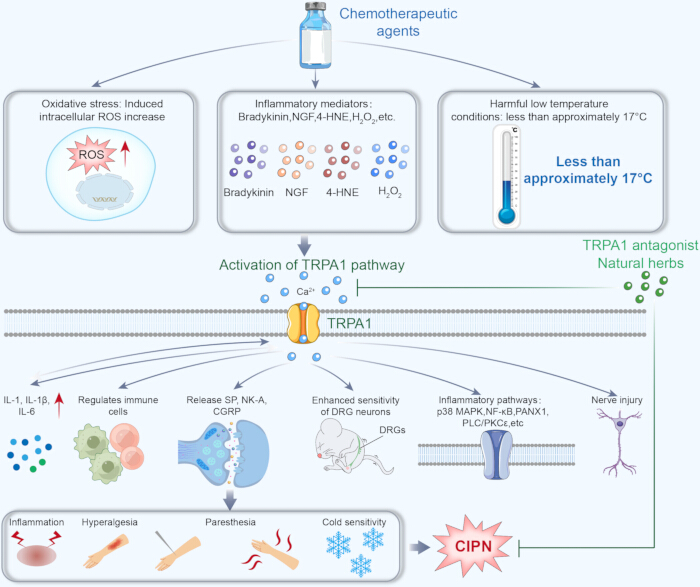
Şekil 8: TRPA1'in inhibrelenmesi. CIPN için Terapötik Bir Strateji. TRPA1 aktivasyonu CIPN'de iltihabı ve aşırı duyarlılığı tetikler; antagonistler veya bitkiler tarafından inhibisyonu nörojenik iltihabı, nosiseptif duyarlılığı ve CIPN semptomlarını azaltabilir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Tablo 1: CIPN'in altında yatan potansiyel mekanizmalar. Kemoterapi ajanları, mitokondriyal işlev bozukluğu ve oksidatif stres, bağışıklık sistemi anormallikleri, iyon kanalı düzensizliği, DRG nöron hasarı ve nöronal sitoskeletin bozulması gibi birçok patolojik yol yoluyla CIPN'ye katkıda bulunur. Bu mekanizmalar topluca nöroinflamasyon, nörotoksisite ve nöropatik ağrıya yol açar. Bu tabloyu indirmek için lütfen buraya tıklayın.
Tablo 2: TRPA1 ile ilişkili CIPN mekanizmaları. TRPA1, oksidatif stresle tetiklenen aktivasyon, bağışıklık modülasyonu ve iltihaplanma, iyon kanalı etkileşimleri ve DRG nöron hasarı gibi birçok patolojik süreçle CIP'e katkıda bulunur. Bu mekanizmalar topluca nöronal uyarılabilirliği artırır ve nöropatik ağrı ile aşırı duyarlılığı destekler. Bu tabloyu indirmek için lütfen buraya tıklayın.
Tablo 3: Temsilci TRPA1 antagonistlerinin mevcut gelişim durumu ve klinik göstergeleri. Bu tablo, preklinik ve klinik çalışmalarda incelenen başlıca TRPA1 antagonistlerini, etki mekanizmalarını, terapötik endikasyonlarını ve ilaç geliştirme aşamalarını özetlemektedir. Bu ajanlar TRPA1 kanal aktivitesini inhibe eder ve böylece CIPN ve diğer patolojik durumlarla ilişkili oksidatif stres, iltihap ve nöropatik ağrıyı azaltır. Bu tabloyu indirmek için lütfen buraya tıklayın.
Tablo 4: TRPA1 ligandlarının doğal bitkisel kaynakları ve CIPN'i hafifletmedeki potansiyel mekanizmaları. Bu tablo, TRPA1 aktivitesini modüle eden temsil eden doğal bileşikler ve bitkisel özetleri, kaynakları, kimyasal türleri, deneysel koşullar ve moleküler hedefleri dahil olmak üzere özetler. Bu doğal ajanlar, TRPA1 ve ilgili sinyal yollarını düzenleyerek nöroprotektif ve anti-inflamatuar etkiler uygular; böylece CIPN ile ilişkili oksidatif stresi, nöroinflamasyonu ve nöronal aşırı uyarılabilirliği azaltır. Bu tabloyu indirmek için lütfen buraya tıklayın.
Açıklamalar
Açıklanacak finansal çıkar çatışması yoktur.
Teşekkürler
Yazarlar, Mingzhu Li'nin grubunun tüm üyelerine destek ve yardımları için teşekkürlerini sunar. Bu el yazması, Çin Ulusal Doğa Bilimleri Vakfı (82104838), Çin Teşvik Vakfı Kıvılcım Programı (XH-D001) ve Liaoning Eyalet Anahtar Araştırma ve Geliştirme Programı (2024JH2/102500062) tarafından desteklenmiş ve bu program minnettarlıkla kabul edilmektedir. Şekil 1 ve Şekil 2 FigDraw kullanılarak çizildi.
Kaynaklar
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).