Qui, un flusso di lavoro per l'analisi di espressione di cultura e gene delle cellule endoteliali sotto sollecitazione di taglio fluido è presentato. È inclusa una disposizione fisica per alloggiamento e monitoraggio più alloggiamenti di flusso in un ambiente controllato e l'uso di un RNA di riferimento esogeno per PCR quantitativa contemporaneamente.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Analisi dell'espressione genica di cellule endoteliali esposte per Shear Stress utilizzando più flusso parallelo-piastra Chambers
In questo articolo
Sommario
Abstract
Descriviamo un flusso di lavoro per l'analisi dell'espressione genica da cellule endoteliali soggette a un costante utilizzando più monitorato parallelo-piastra flusso camere a flusso laminare. Le cellule endoteliali formano il rivestimento cellulare interno dei vasi sanguigni e sono cronicamente esposti alla forza di attrito del flusso sanguigno chiamato shear stress. In condizioni fisiologiche, funzione delle cellule endoteliali in presenza di diverse condizioni di sollecitazione di taglio. Così, l'applicazione delle condizioni di sollecitazione di taglio in modelli in vitro può fornire una maggiore visibilità sulle risposte endoteliali in vivo. La camera di flusso parallelo-piastra precedentemente pubblicata da Lane et al. 9 è adattato per studiare la regolazione genica endoteliale in presenza ed assenza di flusso laminare (non pulsante) costante. Chiavi adattamenti in allestimento per flusso laminare come presentato qui includono un ambiente grande, dedicato ai circuiti di flusso simultaneo di casa, il monitoraggio delle portate in tempo reale e l'inclusione di un riferimento esogeno RNA per la normalizzazione della dati quantitativi di PCR in tempo reale. Per valutare più trattamenti/condizioni con l'applicazione della sollecitazione di taglio, più circuiti di flusso e pompe sono utilizzate contemporaneamente all'interno dell'incubatore stesso riscaldata e umidificata. La portata di ogni circuito di flusso è misurata continuamente in tempo reale per standardizzare le condizioni di sollecitazione di taglio in tutto gli esperimenti. Perché questi esperimenti hanno più condizioni, usiamo anche un RNA di riferimento esogeno è a spillo-al momento dell'estrazione del RNA per la normalizzazione di estrazione del RNA e l'efficienza di sintesi del cDNA del primo-filo. Questi passaggi di ridurre al minimo la variabilità tra i campioni. Questa strategia è impiegata nella nostra pipeline per l'analisi di espressione genica con esperimenti di sollecitazione di taglio utilizzando la camera di flusso parallelo-piastra, ma parti di questa strategia, come ad esempio l'esogeno fa riferimento spike-nel RNA, può facilmente e in modo conveniente essere usati per altre applicazioni.
Introduzione
Le cellule endoteliali vascolari formano il rivestimento cellulare interno dei vasi sanguigni nel sistema cardiovascolare chiuso delle specie superiori. Essi formano l'interfaccia tra sangue e tessuti e sono caratterizzati da luminal e superfici abluminale. L'endotelio è un sistema diversificato, attivo e adattivo che regola il flusso sanguigno, traffico di sostanze nutritive, l'immunità e la crescita di nuovi vasi sanguigni1. Nel corpo, le cellule endoteliali presenti normalmente in un ambiente dove sono esposti per la forza di attrito della circolazione, sollecitazione di taglio2. Sollecitazione di taglio è un regolatore importante di cellule endoteliali gene expression3e cellule endoteliali tentano di mantenere la sollecitazione di taglio all'interno di un determinato intervallo2,4. Cellule endoteliali dimostrano angiogenici patterning in assenza di sollecitazione di taglio5 che possono migliorare la perfusione tissutale. Modelli regionali di flusso disturbato e alterato shear stress sono associati con l'espressione di geni infiammatori6 e lo sviluppo di aterosclerosi7,8. Così, modelli che includono la sollecitazione di taglio sono una componente importante di comprensione regolazione genica endoteliale.
Descriviamo un metodo per lo studio della regolazione genica in cellule endoteliali vascolari sotto sollecitazione di taglio. Questo sistema utilizza flusso non pulsante e imita i livelli di fluido shear stress e concentrazione di ossigeno che condizioni di modello per cellule endoteliali arteriose. Questo protocollo include dettagli dei metodi per l'atterramento di gene usando RNA interference (RNAi), il set-up per l'applicazione della sollecitazione di taglio utilizzando l'apparato di flusso parallelo-piastra e metodi per lo spike-in di un riferimento esogeno RNA prima dell'analisi di reazione a catena della polimerasi quantitativa della trascrittasi inversa (RT-qPCR). Questa pipeline viene utilizzata per lo studio della regolazione genica in cellule endoteliali in presenza ed assenza di sollecitazione di taglio laminare e include un adattamento dell'apparato parallelo-piastra flusso descritto da Lane et al. 9. questo particolare set-up è stato progettato per facilitare la valutazione simultanea di più condizioni sperimentali che permette un confronto diretto delle condizioni di sollecitazione di taglio, così come la normalizzazione dell'analisi di RNA. Una grande unità riscaldata con umidità controllata viene utilizzata per consentire più flusso separato e le pompe in esecuzione contemporaneamente con portate monitorate per ogni assembly di camera di flusso in tempo reale. Viene utilizzata l'applicazione di questo set-up per atterramento di gene usando RNAi nella regolazione del flusso laminare/shear stress, ma gli aspetti di questo protocollo possono essere applicati a qualsiasi valutazione di espressione di RNA.
Approcci comuni per l'applicazione della sollecitazione di taglio per le cellule endoteliali sono di sistemi microfluidici10, un viscosimetro cono e piastra11e un flusso parallelo-piastra camera12. Sistemi microfluidici da vari produttori sono state utili nello studio mechanobiology e mechanotransduction in cella multipli e tipi di tessuto e una varietà di stimoli biofisici. Per le cellule endoteliali, essi sono stati utilizzati per studiare le cellule endoteliali in isolamento, come pure l'interazione delle cellule endoteliali e la tratta di cellule immunitarie o tumore10. Tuttavia, questi sistemi sono meno adatti per il recupero di un gran numero di cellule9. Camere a flusso parallelo-piastra sia il viscosimetro cono e piastra permettono il recupero di un gran numero di cellule in monostrati confluenti12. Questi sistemi possono generare una gamma di modelli e forze di taglio12. Il flusso parallelo-piastra camera Assemblea9 ha il vantaggio che la formazione immagine in tempo reale possono essere eseguite tramite la finestra di vetro per valutare la morfologia cellulare in qualsiasi momento. Inoltre, il perfusato possa essere raccolti in condizioni sterili. Per il sistema presentato qui, il flusso può anche essere monitorato in tempo reale e in un set-up del multi-alloggiamento, che facilita il mantenimento di condizioni di taglio tra le camere.
Per esperimenti di rappresentanza, cellule endoteliali di vena ombelicale umana (HUVEC), che rappresentano un tipo di cellula endoteliale macrovascular, sono utilizzate, e le condizioni di sollecitazione di taglio usiamo (1 Pa) riflettono condizioni arteriose (0.1 - 0.7 Pa). Tuttavia, questo protocollo può essere usato con altri tipi di cellule endoteliali e le condizioni di sollecitazione di taglio possono essere regolate secondo la questione sperimentale. Ad esempio, la valutazione delle cellule endoteliali umane in condizioni che modellano la circolazione venosa richiederebbe più bassi livelli di sollecitazione di taglio (1-6 Pa) e studi che modellano la circolazione microvascolare hanno utilizzato i livelli di sollecitazione di taglio di 0.4 - 1.2 Pa13 , 14. Inoltre, la sollecitazione di taglio può variare anche tra cellule endoteliali all'interno del vaso sanguigno stesso6. Nell'attuale assetto, viene utilizzato un singolo sistema di monitoraggio che possono monitorare contemporaneamente quattro anelli di flusso separato. Per i laboratori che hanno bisogno di più cicli di flusso, c'è spazio nell'ambiente dedicato per un sistema di monitoraggio aggiuntivo.
RT-qPCR viene utilizzata per la quantificazione assoluta di espressione genica nella cornice della sollecitazione di taglio. L'espressione relativa dei geni target viene spesso utilizzato per confrontare l'espressione del RNA in condizioni. Alcune specie di RNA può trovarsi in quantità molto basse o essere assente, complicando così misure relative. Ad esempio, lungo non codificanti RNA nelle cellule endoteliali possa esercitare effetti potenti a numeri di copia relativamente basso per ogni cella5. Inoltre, le differenze di rendimento primer possono portare a un'interpretazione inesatta da utilizzando il metodo di delta-delta ciclo soglia (Ct) per analizzare i dati. Per risolvere questo problema, eseguiamo la quantificazione assoluta generando una curva standard usando una quantità nota di DNA plasmidico. Inoltre, complementari sintesi di DNA (cDNA) sono un processo inefficiente, e le differenze di rendimento di cDNA possono tenere conto delle differenze nell'espressione di RNA tra condizioni e tra campioni15. L'applicazione della sollecitazione di taglio e/o reagenti di transfezione può influenzare la vitalità, apoptosi e proliferazione delle cellule, o aggiungere componenti che potrebbero interferire con la sintesi di RNA isolamento e/o cDNA. Per tenere conto la possibilità di polarizzazione da isolamento del RNA e la sintesi di cDNA, usiamo un spike-in RNA controllo sintetizzato in laboratorio, aggiunto al momento dell'estrazione del RNA e misurato con ogni cDNA sintesi tramite RT-qPCR. Questo consente non solo l'adeguamento tecnico differenze nella sintesi di estrazione e cDNA RNA ma consente anche il calcolo delle quantità assolute per cella, quando è noto il numero di celle.
Questo sistema utilizza ulteriori passaggi per mantenere similitudini o tenere conto delle differenze tecniche tra le condizioni. In particolare sottolineiamo questi passi a causa della natura complessa di questi esperimenti, che coinvolgono molteplici configurazioni fisiche e condizioni sperimentali che possono condurre alla variabilità sperimentale.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
1. preparazione di riferimento esogeno RNA
Nota: Scegliere un riferimento esogeno RNA che non esiste nella specie o modello di interesse. Per sistemi mammiferi, luciferasi firefly RNA possono essere utilizzato.
-
Linearizzazione del plasmide esogeno riferimento RNA
- Preparare esogeno riferimento RNA almeno 48 h prima dell'estrazione di RNA atteso. Ottenere o produrre un clone di cDNA del riferimento esogeno selezionato RNA, come un clone di firefly luciferase cDNA in un vettore plasmidico appropriato per trascrizione in vitro (Vedi Tabella materiali).
- Eseguire la digestione degli enzimi di limitazione (RE) di 1 µ g del plasmide Full-Length (il plasmide di luciferasi firefly è pSP-luc + che ha 4100 bp) con single-cutter RE (XhoI) in provette da 1,5 mL microfuge. Scegliere un RE che è un taglio singolo (tagli plasmide solo 1x) all'estremità 3' del riferimento esogeno sequenza di RNA che lascia un 5' sporgenza o estremità smussata. Per una preparazione tipica, è possibile eseguire reazioni di sette plasmide linearizzazione (passaggi 1.1.4 - 1.1.7) in parallelo per generare sufficiente concentrazione di RNA e quantità per completare un set di esperimenti o un progetto.
- Misurare la concentrazione di plasmide mediante spettrofotometria o spettrofluorometria.
- Preparare una miscela RE in ogni tubo: 4 µ l di XhoI (20.000 unità/mL), 8 µ l di RE buffer, x µL di plasmide (1 µ g) e sufficiente H2O per raggiungere una soluzione totale di 80 µ l.
- Incubare la miscela RE per 2 ore a 37 ° C. Utilizzare il RE secondo il protocollo del produttore, in quanto eventuali modifiche possono provocare una maggiore attività della stella o aspecifici clivaggio del DNA bersaglio. Inattivare con il calore la miscela di reazione per 20 min a 65 ° C.
- Terminare il digest RE con precipitazione dell'etanolo in ogni provetta. Il mix RE, direttamente aggiungere 4 µ l di 0,5 M EDTA, pH 8.0, 8 µ l di 3 M sodio acetato a pH 5.2 e 184 µ l di etanolo al 100%. Mescolare bene e congelare la miscela a-20 ° C per 30 min.
- Rotazione verso il basso la miscela a 4 ° C per 20 min a una forza centrifuga relativa (RCF) di 16.100 x g.
- Rimuovere il surnatante con una punta fine, senza toccare il pellet. Asciugare il pellet per 5 min e risospendere in 6 µ l di H2O (riscaldato a 37 ° C) pipettando su e giù per 5x - 10x.
- Confermare la linearizzazione del plasmide luciferasi eseguendo il prodotto digerito su gel di agarosio al 2% contenente etidio bromuro (EtBr) insieme a una scala di 1 kb +, una scaletta supercoiled e taglio e plasmide non tagliato. Ispezionare il gel e procedere con la trascrizione in vitro se la corsia per il plasmide tagliato Mostra una singola banda a ~ 4 kb (il plasmide non tagliato avrà tre bande; Figura 1).
Attenzione: EtBr è cancerogeno. Lavorare in una cappa chimica.
-
In trascrizione in vitro del plasmide esogeno riferimento RNA
- Per ogni provetta di prodotti plasmidico digerito, eseguire la trascrizione in vitro utilizzando un metodo di trascrizione in vitro (Vedi Tabella materiali). Seguire le istruzioni del produttore e utilizzare il fago appropriato RNA polimerasi. Se il metodo di sintesi del cDNA richiede una coda di poli (a), o altre applicazioni richiedono una coda di poli (a), scegliere un metodo di trascrizione in vitro che include un'aggiunta di coda di poli (a) (Vedi Tabella materiali).
- Combinare tutti in vitro trascritto prodotti in un unico tubo in polipropilene 1,5 mL prima della purificazione.
-
Purif icazione di RNA dalla reazione di trascrizione in vitro
- Purificare in vitro trascritto prodotti con un in vitro trascrizione pulizia kit (Vedi Tabella materiali). Si prega di seguire il protocollo del produttore.
- Valutare la concentrazione di RNA misurando l'assorbanza a 260 nm usando spettrofotometria.
Nota: La concentrazione di RNA viene calcolata utilizzando la legge di Lambert-Beer. Questo afferma che la capacità di assorbimento degli acidi nucleici (che assorbono la luce fortemente a 260 nm) è proporzionale alla concentrazione. Un'assorbanza di 1.0 è pari a 40 µ g/mL di singoli filamenti di RNA.
-
Aliquotare il brodo RNA in PCR provette per uso sperimentale
- Garantire che la concentrazione di RNA è di 1 µ g / µ l.
- Se la concentrazione di RNA è > 1 µ g / µ l, diluire il brodo a 1 µ g / µ l. aliquota 1 µ l in PCR tubi e conservarli a-80 ° C.
- Se la concentrazione di RNA è < 1 µ g / µ l, ulteriori precipitazioni utilizzando 5 M di acetato di ammonio (fornito nel kit) possono essere eseguita secondo il protocollo del produttore. Se la concentrazione di RNA è ancora < 1 µ g / µ l, procedere con aliquotare 1 µ l in provette per PCR.
- Garantire che la concentrazione di RNA è di 1 µ g / µ l.
2. far scorrere rivestimento
Nota: Procedura 2.1-2.10 dovrebbe essere eseguito 24-48 h prima la semina anticipata delle cellule.
- Preriscaldare il forno a 250 ° C.
- Utilizzando guanti sterili, avvolgere ogni vetrino 2 x con carta stagnola. Evitare di toccare direttamente la superficie della diapositiva.
- Cuocere le diapositive in forno per 1 ora a 250 ° C e lasciare raffreddare a temperatura ambiente i vetrini.
Nota: Questo passaggio è importante per la distruzione di qualsiasi contaminante dell'endotossina. - Mentre le diapositive sono raffreddamento, fare una soluzione stock di fibronectin di 1 mg/mL con acqua distillata e Incubare 30 min a 37 ° C per sciogliere. Rendere le aliquote 100-µ l. Mettere da parte le aliquote per un uso immediato e congelare le rimanenti aliquote per uso futuro.
- Scartare il rivestimento esterno del foglio di alluminio prima di mettere il vetrino in una biosicurezza armadietto. Eseguire passaggi 2.6-2.7 e 2.9 la cappa di biosicurezza.
- Inserire il vetrino in una piastra di coltura sterile cella 4 pozzetti rettangolare.
- Diluire la fibronectina soluzione madre 1: 100 con acqua distillata. Ricoprire ogni diapositiva con 1 mL di diluito fibronectina, goccia a goccia, utilizzando una pipetta. Assicurarsi che sia coperto l'intera diapositiva.
- Incubare i vetrini in un coltura tissutale incubatore a 37 ° C per 24-48 h.
- Dopo l'incubazione, aspirare la fibronectina inclinando la piastra di coltura delle cellule 4 pozzetti. Evitare di toccare la diapositiva direttamente con l'aspiratore.
3. semina su vetro cellulare scivola
- Contare le cellule endoteliali umane al primo passaggio (passaggio 2-5) e seme ~1.0 x 10⁶ cellule su ogni lastra di vetro rivestite di fibronectina con 1 mL di media (1.0 x 10⁶ supporti di cellule/mL). Se nessun altro trattamento deve essere eseguito il seeding le cellule 24h prima dell'applicazione anticipata del flusso laminare.
Nota: Questi numeri sono utilizzati come guida per esperimenti con 24h di flusso.- Regolare la densità di semina per ottenere un monostrato confluente di cellule al momento della raccolta delle cellule e di estrazione del RNA.
- Lasciate che le cellule aderiscono alla diapositiva per 15 min a 37 ° C.
- Aggiungere 3 mL di media in ciascun pozzetto della piastra di coltura cellulare per coprire la diapositiva e incubare le cellule a 37 ° C per 24 h con 5% CO2.
4. piccolo RNA interferenti (siRNA) transfezione
-
Preparazione di cellule sulle lastre di vetro per esperimenti di transfezione e flusso di siRNA
- Seguire il protocollo nei passaggi 2 (rivestimento) e 3 (semina su vetrini cellulare) per la preparazione del vetrino vetro e rivestimento per esperimenti di flusso.
- Seme cellule 24 h prima del trattamento del siRNA (48h prima dell'applicazione del flusso laminare).
- Cellule endoteliali umane di seme in media senza antibiotico a 750.000 a 1 x 10⁶ cellule per diapositiva per raggiungere 85% - 95% confluenza il giorno successivo.
Nota: HUVEC sono utilizzati nel presente protocollo.
-
Preparazione di complessi di reagente di transfezione di siRNA-lipido-basato (per vetrino)
- Design personalizzati siRNA o ordine preconfezionati siRNA per il gene di interesse desiderato.
Nota: Eseguire la procedura seguente in una cappa di biosicurezza. - Aggiungere 6 µ l di siRNA (stock 20 µM) in 414 µ l di siero riduttore terreno (Vedi Tabella materiali) e mescolare delicatamente pipettando.
- Diluire 49,5 µ l di reagente di transfezione delicatamente mista basata sui lipidi (Vedi Tabella materiali) a 130,5 µ l di siero riduttore terreno.
- Mescolare delicatamente e incubare a temperatura ambiente per 5 min.
- Combinare diluito siRNAs e reagente di transfezione basata sui lipidi, mescolare delicatamente e incubare per 15 min a temperatura ambiente. Mescolare delicatamente per evitare perturbazioni dei complessi di reagente di transfezione basata sui lipidi.
Nota: È necessario che la soluzione venga nuvolosa come forma complessi. - Mentre si stanno formando complessi, rimuovere il mezzo di crescita e lavare le cellule 1 x con il mezzo di riduttore del siero.
- Aggiungere 2,4 mL di mezzo di riduttori del siero di ogni diapositiva.
- Aggiungere 600 µ l di complessi di reagente di transfezione di siRNA-lipido-based delicatamente misto a ogni piatto e rock la piastra avanti e indietro per mescolare. Garantire la concentrazione finale di siRNA è di 40 nM. Accertarsi che il vetrino sia completamente coperta.
- Incubare le cellule a 37 ° C per 4 h.
- Aggiungere 1 mL di coltura privo di antibiotici endoteliale delle cellule che contiene 3 x la normale concentrazione di siero bovino fetale (FBS) senza rimuovere la miscela di transfezione.
- Incubare le cellule a 37 ° C fino all'uso.
- Design personalizzati siRNA o ordine preconfezionati siRNA per il gene di interesse desiderato.
5. calcolo della portata basata sulla sollecitazione di taglio desiderata9
- Calcolare il tasso di flusso basato sulle sollecitazioni di taglio desiderate secondo la seguente equazione:
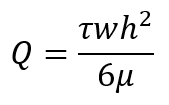
Qui,
Q è la portata in mL/min;
Τ è la sollecitazione di taglio desiderata dynes/cm2 (1 Pa = 10 dynes/cm2);
w è la larghezza della camera flusso parallelo-piastra in cm;
h è l'altezza della camera di flusso parallelo-piastra in cm;
µ è la viscosità dei media nel cP (g/cm·s).
Nota: Vengono condotti esperimenti di sollecitazione di taglio laminare tipico (non pulsante) in questo flusso di lavoro a τ = 1 Pa (10 dynes/cm2). µ può essere misurata con un viscosimetro ad esempio un viscosimetro cono e piastra e può variare in base al contenuto dei media tra cui il siero e destrano ulteriori9. - Per ottenere una specifica τ (shear stress), regolare la portata e/o la viscosità. Alle portate più elevate, le cellule aderenti possono dissociare dalla diapositiva. Portate con camere di flusso tipico per esempio sono riportate nella tabella 1.
6. messa a punto di un ambiente dedicato per il monitoraggio di sistema e più flusso parallelo-piastra Chambers (Figura 2)
- Utilizzare una grande unità/incubatrice riscaldata con le mensole, accesso interno dell'elettricità e porte in vetro — indicato come la spiaggia (built-in ambiente con regolabile CO2 ) e calore — per ospitare più camere di flusso simultaneamente per esperimenti che richiedono sia shear stress e confronto diretto tra due o più trattamenti o uscite (cioè, DNA, RNA e proteine).
Nota: La spiaggia consente il monitoraggio frequente del circuito flusso, compreso il tasso di flusso, senza frequenti interruzioni dell'ambiente. - Garantire un'adeguata CO2 è disponibile per l'esperimento e che il CO2 monitor è funzionale. Garantire la vaschetta dell'acqua è riempita in modo appropriato, tale che non ci sarà aria umidificata.
7. messa a punto dell'apparato di flusso parallelo-piastra
Nota: Per la produzione di piastre parallele, vedere Lane et al. 9.
- Autoclave il flusso dell'alloggiamento piastre, serbatoio, ammortizzatore, tubature e Luers per ogni set-up del camera di flusso parallelo-piastra come indicato nella tabella 2.
-
Set-up dell'Assemblea di ciclo di flusso (Figura 3).
- Collocare gli asciugamani sterili sulla sicurezza biologica armadio. Assemblare il sistema del ciclo di flusso, in primo luogo senza la camera di flusso parallelo-piastra, nell'armadietto di sicurezza biologica.
- Collegare il gruppo del tubo per il serbatoio:
- Inserire un tubo duro #14 in un foro e due #14 tubi molli negli altri due fori nel tappo del serbatoio flusso. Assicurarsi che uno dei tubi morbidi tocchi il fondo del serbatoio come tubazione di deflusso .
- Posizionare un 1/16" maschio Luer all'estremità del 14 # rigido tubo e montare un filtro sterile come un aeratore.
- Posizionare un 1/16" femmina Luer all'estremità del #14 morbido afflusso tubo, proveniente dal serbatoio e allegare un rubinetto a 4 vie.
Nota: Per analisi di espressione genica o altri studi dove perfusati non devono essere raccolti, rubinetti 2 vie possono essere utilizzati invece di rubinetti a 4 vie in questo protocollo. - Posizionare un 1/16" maschio Luer all'estremità del tubo di deflusso morbido #14, proveniente dal serbatoio.
- Collegare il tubo di deflusso del serbatoio al tubo della pompa: posizionare un 1/16" femmina Luer a ciascuna estremità di un tubo rigido #13 (tubazione della pompa). Collegare il tubo di efflusso morbido #14 dal serbatoio al tubo rigido #13 collegando 1/16" Luer maschio e femmina insieme.
- Collegare il tubo della pompa con la tubazione di 'ponte di smorzamento': posizionare un 1/8" maschio Luer e un 1/8" femmina Luer a ciascuna estremità di un tubo morbido #16. Collegare il 1/16" femmina Luer del tubo rigido #13 (all'estremità di uscita del tubo pompa) con 1/8" maschio Luer del tubo morbido #16.
- Montare il tubo per l'ammortizzatore di flusso: posizionare un 3/16" Luer maschio ad una estremità del tubo morbido #25 e ripetere l'operazione per l'altro lato dell'ammortizzatore di flusso. Collegare le estremità libere dei tubi morbidi #25 su ciascun lato dell'ammortizzatore di flusso.
- Collegare il tubo di 'ponte di smorzamento' con la tubazione per l'ammortizzatore di flusso: collegare un tubo morbido #25 dall'ammortizzatore di flusso con il tubo molle #16 del 'ponte ammortizzatore' usando i 1/8" femmina Luer dal lato #16 'ponte smorza' e il già inserito 3/16" Luer maschio dal lato tubo morbido ammortizzatore #25.
- Assemblare tubi 'ponte camera':
- Posizionare un 1/8" femmina Luer e un 1/8" maschio Luer a ciascuna estremità di un tubo morbido #16 ('ponte camera' della tubazione).
- Collegare il 1/8" femmina Luer del 'ponte camera' con 3/16" Luer maschio al #25 tubo morbido dall'estremità libera dell'ammortizzatore di flusso.
- A 1/8" maschio Luer (estremità libera) del tubo 'ponte camera', posto un rubinetto a 4 vie.
- Collegare il rubinetto a 4 vie dall'estremità libera del 'ponte camera' al rubinetto a 4 vie dal tubo serbatoio afflusso morbido (dal passaggio 7.2.2.3). Chiudere il rubinetto di arresto.
- Aggiungi media al serbatoio e smorzamento. Per l'esposizione di 48 h per shear stress, aggiungere 35 mL di media per il serbatoio e 25 mL e l'ammortizzatore. Regolare il volume dei mezzi di comunicazione basati sulla durata dell'esperimento flusso e il numero delle cellule seminate.
- Portare il sistema a circuito flusso assemblato alla pompa in spiaggia. Inserire il tubo rigido #13 (tubazione della pompa) la testa della pompa e fissarlo. Aprire il rubinetto di arresto.
- Accendere la pompa e aumentare lentamente la velocità della pompa. Lasciate che i media circolare attraverso il sistema a circuito. Verificare eventuali perdite o blocco (ad esempio, aumento della pressione). Assicurare che i media sta fluendo indietro al serbatoio.
-
Set-up dell'Assemblea camera di flusso
- Posizionare un 1/8" attacco Luer femmina ad una estremità di un 16 # morbido tubo e collegare un rubinetto a 4 vie. Fissare l'estremità libera del tubo al lato destro della piastra superiore (lato diafflusso ).
- Posizionare un 1/8" Luer maschio ad una estremità di un 16 # morbido tubo e collegare un rubinetto a 4 vie. Fissare l'estremità libera del tubo al lato sinistro della piastra superiore (lato diuscita ).
- Posizionare un 1/8" maschio Luer e un 1/8" femmina Luer a ciascuna estremità di un tubo morbido #16 (bubble trappola della tubazione). Collegare il tubo alla bolla trappola via 1/8" maschio Luer. Collegare un rubinetto a 4 vie per l'altra estremità della tubazione tramite il 1/8" femmina Luer.
- Utilizzando pinzette sterili, trasferire il vetrino cella-seminato dalla piastra di coltura delle cellule 4 pozzetti nella nicchia sulla piastra inferiore. Garantire che il lato cella-seminato del vetrino è rivolto verso l'alto.
- Usando una siringa 10 mL, aggiungere 10 mL di caldo media alla piastra inferiore all'interno della linea rossa guarnizione intorno alla piastra. Lasciare che i supporti a fluire attraverso il vetrino e coprire le cellule. Evitare di aggiungere contenuti multimediali direttamente nella diapositiva.
- Posizionare delicatamente la piastra superiore sulla piastra inferiore, allineando da un lato a altro. Evitare l'introduzione di bolle d'aria. Avvitare insieme le piastre.
- Rimuovere le bolle d'aria dalla trappola bolla aprendo il rubinetto sul lato destro (afflusso) della piastra e lavando delicatamente 20 mL di caldo usando una siringa da 30 mL. Assicurarsi che il rubinetto di arresto sul lato sinistro (deflusso) della piastra è chiuso e che i media è che fluisce attraverso il rubinetto di arresto per la trappola della bolla (aperto). Scartare i media arrossati.
- Chiudere il rubinetto di intercettazione sulla trappola bolla e aprire il rubinetto sul lato sinistro (deflusso) della camera. Elevare il lato sinistro (deflusso) della camera ad un angolo di 45° e lavare delicatamente 20 mL di caldo usando una siringa da 30 mL dal lato destro (afflusso) della camera per rimuovere le bolle d'aria dalla camera. Le bolle possono essere visualizzate attraverso la finestra. Scartare i media arrossati.
- Chiudere il rubinetto di arresto su entrambi i lati di sezione e tappo. Ispezionare le cellule da microscopia.
- Trasporti della camera alla spiaggia con il sistema a ciclo precedentemente assemblato.
- Lentamente diminuire la velocità della pompa e mettere in pausa la pompa. Chiudere il rubinetto di arresto del sistema di ciclo di flusso per evitare perdite.
- Collegare la camera e loop sistema insieme tramite rubinetti di arresto. Aprire tutti i rubinetti di arresto.
- Lentamente aumentare la velocità della pompa ed esaminare il set-up per qualsiasi perdita o il blocco. Assicurare i mezzi di comunicazione circola in una sola direzione e restituisce al serbatoio.
- Posizionare il sensore di flusso del tubo di 'ponte camera' situato sul lato di afflusso della camera. Assicurarsi che il sensore sia orientato correttamente nella direzione del flusso.
- Regolare la velocità della pompa per ottenere la portata che è stata calcolata in precedenza, basato sulla sollecitazione di taglio desiderata.
Nota: La portata può variare a seconda l'altezza e la larghezza di ogni camera, così come la viscosità dei media. - Accendere il serbatoio di CO2 per raggiungere il 5% CO2 e inserire un vassoio di acqua all'interno della spiaggia.
8. la raccolta delle cellule ed estrazione di RNA da camera di flusso
- Una volta completato il periodo di tempo desiderato di flusso, lentamente abbassare la velocità della pompa peristaltica a 0 e disattivare l'alimentazione. Chiudere tutti i rubinetti di arresto aperte e si rimuove rapidamente la camera e il tubo collegato con un rubinetto su ciascuna estremità.
- Prendere la camera per un pulito benchtop e delicatamente Svitare tutte le viti per rimuovere la piastra superiore. Utilizzando una pinzetta becchi, togliere il vetrino dalla piastra inferiore e metterlo in un piatto di coltura del tessuto di diametro 100 mm.
- Lavare il vetrino con 10 mL di soluzione tampone fosfato (PBS)- / - e fredda e controllare le cellule al microscopio per confermare l'adesione delle cellule e l'allineamento in direzione del flusso.
- Aspirare il PBS dalla piastra e trasferire la diapositiva a un piatto di diametro 100mm pulito. Aggiungere 350 µ l di tampone di lisi dell'estrazione di RNA da kit (Vedi Tabella materiali), contenente 1/100 di beta-mercaptoetanolo, alla diapositiva.
Attenzione: Aggiungere beta-mercaptoetanolo in una cappa chimica. - Raschiare le cellule fuori della diapositiva utilizzando un raschietto di cella a pale in polietilene. Inclinare il piatto di coltura del tessuto, consentendo al liquido di piscina nella parte inferiore e rimuovere il vetrino con le pinzette. Pipettare la cella lysata in una provetta da 1,5 mL e tenerlo sul ghiaccio.
- Diluire il riferimento esogeno stock RNA (RNA di luciferasi) a 0,0025 ng / µ l attraverso diluizione seriale prima di aggiungerla al campione. Ad esempio, se la concentrazione di stock è di 1 µ g / µ l, è necessaria una diluizione di 1/400.000 per raggiungere 0,0025 ng / µ l. aggiungere 10 µ l di diluito luciferasi RNA ad ogni campione di lysate per isolamento del RNA a valle e l'analisi delle cellule.
- Procedere con il protocollo di estrazione di RNA secondo le istruzioni del produttore, o congelare il lisato a-80 ° C fino a quando non è in grado di procedere con l'estrazione.
9. calcolo dell'efficienza dell'estrazione di RNA e sintesi del cDNA
Nota: Calcolare l'efficienza di luciferasi dopo RT-qPCR confrontando il rendimento teorico e la resa sperimentale.
- Determinare il rendimento teorico per la luciferasi RNA.
- Determinare la quantità totale di luciferasi copie aggiunto per campione. (Aggiunta di 0,025 ng/campione = 2.73 x 10⁷ copie di RNA di luciferase per campione prima dell'estrazione di RNA.)
- Calcolare la massa molecolare di luciferasi RNA utilizzando una massa molecolare media al nucleotide di 330 g/mol e moltiplicando la lunghezza della luciferasi di lucciola RNA, 1652 nucleotidi.
- Dividere l'importo della luciferasi RNA aggiunto (0,025 ng) per ogni campione prima dell'estrazione di RNA dalla massa molecolare per produrre la quantità molare. Quindi, moltiplicare per il numero di Avogadro per produrre le copie aggiunte per campione.
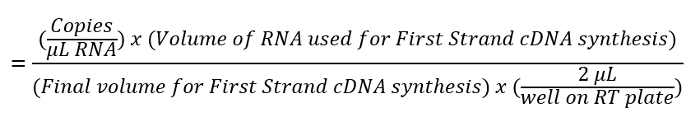
- Calcolare il rendimento teorico per le copie di luciferase per ciascuna reazione di RT-qPCR utilizzando l'equazione:
- Calcolare il rendimento sperimentale per le copie di luciferase per ciascuna reazione di RT-qPCR utilizzando il plasmide di luciferase per generare una curva standard per RT-qPCR.
- Calcolare l'efficienza di luciferasi (%) utilizzando l'equazione:
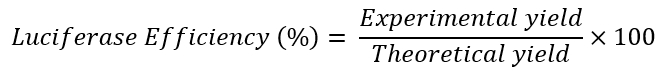
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Linearizzazione di successo del plasmide luciferasi usando gli enzimi di restrizione è stata confermata da prodotti digeriti in esecuzione su un gel di agarosio (Figura 1). La dimensione del prodotto linearizzato è stata confermata usando le scalette del DNA e dal confronto con il plasmide non tagliato.
Abbiamo adattato il set-up camera di flusso parallelo-piastra da Lane et al.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
Sollecitazione di taglio è una condizione fisiologica che modula la funzione endoteliale, in parte, colpendo allo steady-state gene expression2,5. Modelli di regolazione genica in diverse condizioni di sollecitazione di taglio contribuirà ad una maggiore comprensione della funzione endoteliale. Questo flusso di lavoro pragmatico include un circuito di flusso utilizzando una camera di flusso parallelo-piastra adattata da Lane et al. 9
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno nulla a rivelare.
Ringraziamenti
Questo lavoro è stato supportato da CIHR MOP 142307 a P.A.M. H.S.J.M. è un destinatario di un canadese istituti di salute ricerca formazione programma in compagnia di medicina rigenerativa. H.S.J.M., A.N.S., K.H.K. e M.K.D. sono destinatari delle Queen Elizabeth II laurea Borse di studio nella scienza e nella tecnologia.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 0,05% Trypsin-EDTA | gibco | 25300-062 | |
| Siringa da 10 mL | BD | 302995 | |
| 10 mm2 Piatto di coltura | Sarstedt | 83.3902 | |
| Siringa da 30 mL | BD | 302832 | |
| rubinetti a 4 vie | Discofix | D500 | |
| Foglio | |||
| SPIAGGIA | Darwin Chambers Company | MN: HO85, SN: 4947549 | |
| Raschietti | |||
| CO2 Meter | BioSphenix, Ltd. | MN: P120, SN: 0342 | |
| CO2 Sensore | BioSphenix, Ltd. | MN: C700, SN: 52852 | |
| Gibco | di acqua distillata | 15230-170 | |
| Soluzione salina tamponata con fosfato di Dulbecco (DPBS) -/- | gibco | 14190-144 | |
| Terreno di crescita delle cellule endoteliali 2 | Promo Cell | C-22011 | |
| Terreno di crescita delle cellule endoteliali 2 Integratore Mix | Promo Cell | C-39216 | |
| Fibronectina (pura) | Filtro 11051407001 | ||
| (0,20 um) | Sarstedt | 83.1826.001 | |
| Smorzatore di flusso e tappo | U di T negozio di soffiatura | ||
| Flussometro: Console serie 400 | Transonic Scisense Inc. | T402 | |
| : Tubi serie 400 | Transonic Scisense Inc. | TS410 | |
| Serbatoio di flusso e tappo | U di T negozio di soffiatura del vetro Sensore di | ||
| flusso | Transonic Scisense Inc. | ME4PXL | |
| Isotemp 737F Forno | Fisher Scientific | FI-737F | |
| J panno | J panno | ||
| Vetrino per microscopio (25 x 75 x 1 mm) | Fisherfinest | 12-544-4 | |
| Sacchetto di sterilizzazione in carta | Cardinal Health | 92713 | |
| Pompa (Masterflex L/S Economy Drive) | Cole-Parmer | 7554-90 | |
| Testa della pompa (Masterflex L/S Easy Load) | Cole-Parmer | 7518-00 | |
| Pinzette | |||
| 4 pozzetti | Thermo Scientific | 267061 | |
| Nome | Azienda | Numero di catalogo | Comments |
| Tubing | |||
| Masterflex C-Flex L/S 25 Tubo morbido | Cole-Parmer | 06424-25 | |
| Masterflex C-Flex L/S 14 Tubo morbido | Cole-Parmer | 06424-14 | |
| Masterflex C-Flex L/S 16 Tubo morbido | Cole-Parmer | 06424-16 | |
| Masterflex PharMed BPT L/S 13 Tubo rigido | Cole-Parmer | 06508-13 | |
| Masterflex PharMed BPT L/S 14 Tubi Rigidi | Cole-Parmer | 06508-14 | |
| Nome | Azienda< | strong>Numero di catalogo | Comments |
| Luer Luer | |||
| 3/16" Maschio Luer | Cole-Parmer | 45518-08 | Per tubi #25 |
| 1/8" maschio Luer | Cole-Parmer | 30800-24 | per tubi #16 |
| 1/8" femmina Luer | Cole-Parmer | 30800-08 | per #16 tubo |
| 1/16" maschio Luer | Cole-Parmer | 45518-00 | per #14 tubo |
| 1/16" femmina Luer | Cole-Parmer | 45508-00 | per #14 tubo |
| nome | Azienda | Numero di catalogo | Comments |
| Knockdown reagents | |||
| Reagente di oligofectamina | Invitrogen | 12252-011 | |
| Opti-MEM I Reduced Serum Medium | gibco | 31985-070 | |
| Name | < strong>Azienda | Numero di catalogo | Comments |
| In vitro trascrizione | |||
| Generuler 1kb+ Scala DNA | Thermo Scientific | SM1331 | |
| MEGAclear Kit | Ambion | AM1908 | |
| mMESSSEGE mMACHINE SP6 Kit di trascrizione | Ambion | AM1340 | |
| pSP-luc+ | Promega | E4471 | |
| Scala DNA superavvolta | New England BioLabs Inc. | N0472S | |
| Enzima di restrizione dell'agarosio ultrapuro | Invitrogen | 16500-500 | |
| Bromuro di etidio ultrapuro | Invitrogen | 15585011 | |
| XhoI Enzima di restrizione | New England BioLabs Inc. | R0146S | |
| Name | Azienda | Numero di catalogo | Comments |
| Estrazione dell'RNA | |||
| Beta-mercaptoetanolo | Sigma | M3148-100mL | |
| RNeasy Mini Kit | Qiagen | 74104 |
Riferimenti
- Aird, W. C. Endothelial cell heterogeneity. Cold Spring Harbor Perspectives in Medicine. 2 (1), (2012).
- Baeyens, N., Bandyopadhyay, C., Coon, B. G., Yun, S., Schwartz, M. A. Endothelial fluid shear stress sensing in vascular health and disease. Journal of Clinical Investigation. 126 (3), 821-828 (2016).
- Garcia-Cardena, G., Comander, J., Anderson, K. R., Blackman, B. R., Gimbrone, M. A. Biomechanical activation of vascular endothelium as a determinant of its functional phenotype. Proceedings of the National Academy of Sciences of the United States of America. 98 (8), 4478-4485 (2001).
- Cybulsky, M. I., Marsden, P. A. Effect of disturbed blood flow on endothelial cell gene expression: a role for changes in RNA processing. Arteriosclerosis, Thrombosis, and Vascular Biology. 34 (9), 1806-1808 (2014).
- Man, H. S. J., et al. Angiogenic patterning by STEEL, an endothelial-enriched long noncoding RNA. Proceedings of the National Academy of Sciences of the United States of America. 115 (10), 2401-2406 (2018).
- Won, D., et al. Relative reduction of endothelial nitric-oxide synthase expression and transcription in atherosclerosis-prone regions of the mouse aorta and in an in vitro model of disturbed flow. The American Journal of Pathology. 171 (5), 1691-1704 (2007).
- Baeyens, N., et al. Vascular remodeling is governed by a VEGFR3-dependent fluid shear stress set point. eLIFE. 4, 04645(2015).
- Davies, P. F., Civelek, M., Fang, Y., Fleming, I. The atherosusceptible endothelium: endothelial phenotypes in complex haemodynamic shear stress regions in vivo. Cardiovascular Research. 99 (2), 315-327 (2013).
- Lane, W. O., et al. Parallel-plate flow chamber and continuous flow circuit to evaluate endothelial progenitor cells under laminar flow shear stress. Journal of Visualized Experiments. (59), 3349(2012).
- Gray, K. M., Stroka, K. M. Vascular endothelial cell mechanosensing: New insights gained from biomimetic microfluidic models. Seminars in Cell and Developmental Biology. 71, 106-117 (2017).
- Bussolari, S. R., Dewey, C. F., Gimbrone, M. A. Apparatus for subjecting living cells to fluid shear stress. Review of Scientific Instruments. 53 (12), 1851-1854 (1982).
- Resnick, N., Gimbrone, M. A. Hemodynamic forces are complex regulators of endothelial gene expression. The FASEB Journal. 9 (10), 874-882 (1995).
- Malek, A. M., Alper, S. L., Izumo, S. Hemodynamic shear stress and its role in atherosclerosis. The Journal of the American Medical Association. 282 (21), 2035-2042 (1999).
- DeStefano, J. G., Xu, Z. S., Williams, A. J., Yimam, N., Searson, P. C. Effect of shear stress on iPSC-derived human brain microvascular endothelial cells (dhBMECs). Fluids and Barriers of the CNS. 14 (1), 20(2017).
- Thormar, H. G., et al. Importance of the efficiency of double-stranded DNA formation in cDNA synthesis for the imprecision of microarray expression analysis. Clinical Chemistry. 59 (4), 667-674 (2013).
- Johnston, S., Gallaher, Z., Czaja, K. Exogenous reference gene normalization for real-time reverse transcription-polymerase chain reaction analysis under dynamic endogenous transcription. Neural Regenation Research. 7 (14), 1064-1072 (2012).
- Vaughan-Shaw, P. G., et al. A simple method to overcome the inhibitory effect of heparin on DNA amplification. Cellular Oncology (Dordrecht). 38 (6), 493-495 (2015).
- Collins, C., et al. Haemodynamic and extracellular matrix cues regulate the mechanical phenotype and stiffness of aortic endothelial cells. Nature Communications. 5, 3984(2014).
- Fichtlscherer, S., et al. Circulating microRNAs in patients with coronary artery disease. Circulation Research. 107 (5), 677-684 (2010).
- Smith, R. D., Brown, B., Ikonomi, P., Schechter, A. N. Exogenous reference RNA for normalization of real-time quantitative PCR. Biotechniques. 34 (1), 88-91 (2003).
- Kohn, J. C., et al. Cooperative effects of matrix stiffness and fluid shear stress on endothelial cell behavior. Biophysical Journal. 108 (3), 471-478 (2015).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
