Ici, nous présentons un protocole décrivant la pharmacologie du réseau et les techniques d’amarrage moléculaire pour explorer le mécanisme d’action de Jiawei Shengjiang San (JWSJS) dans le traitement de la néphropathie diabétique.
Article de méthode
Effet antagoniste de Jiawei Shengjiang San sur un modèle de rat de néphropathie diabétique : lié à la voie de signalisation EGFR/MAPK3/1
* These authors contributed equally
Dans cet article
Résumé
Résumé
Notre objectif était d’approfondir les mécanismes qui sous-tendent l’action de Jiawei Shengjiang San (JWSJS) dans le traitement de la néphropathie diabétique et le déploiement de la pharmacologie en réseau. En utilisant la pharmacologie de réseau et les techniques d’amarrage moléculaire, nous avons prédit les composants actifs et les cibles du JWSJS et construit un réseau méticuleux « médicament-composant-cible ». Les analyses d’enrichissement de l’ontologie génétique (GO) et de l’encyclopédie de Kyoto des gènes et des génomes (KEGG) ont été utilisées pour discerner les voies thérapeutiques et les cibles du JWSJS. Autodock Vina 1.2.0 a été déployé pour la vérification de l’amarrage moléculaire, et une simulation de dynamique moléculaire de 100 ns a été menée pour confirmer les résultats de l’amarrage, suivie d’une vérification in vivo sur l’animal. Les résultats ont révélé que JWSJS partageait 227 cibles croisées avec la néphropathie diabétique, construisant une topologie de réseau d’interaction protéine-protéine. L’analyse d’enrichissement de KEGG a révélé que le JWSJS atténue la néphropathie diabétique en modulant les lipides et l’athérosclérose, la voie de signalisation PI3K-Akt, l’apoptose et la voie de signalisation HIF-1, la protéine kinase 1 activée par les mitogènes (MAPK1), la MAPK3, le récepteur du facteur de croissance épidermique (EGFR) et la sérine/thréonine-protéine kinase 1 (AKT1) étant identifiées comme cibles collectives de plusieurs voies. L’amarrage moléculaire a affirmé que les composants clés de JWSJS (quercétine, acide palmitoléique et lutéoline) pouvaient stabiliser la conformation avec trois cibles pivots (MAPK1, MAPK3 et EGFR) par liaison hydrogène. Les examens in vivo ont révélé une augmentation notable du poids corporel et une réduction des taux de protéines sériques glyquées (GSP), de cholestérol à lipoprotéines de basse densité (LDL-C), d’uridine triphosphate (UTP) et de glycémie à jeun (FBG) dues au JWSJS. La microscopie électronique couplée à l’hématoxyline et à l’éosine (HE) et à la coloration périodique à l’acide de Schiff (PAS) a mis en évidence le potentiel de chaque groupe de traitement à atténuer les lésions rénales à des degrés divers, montrant des déclins variés de p-EGFR, de p-MAPK3/1 et de BAX, et des augmentations de l’expression de BCL-2 dans les tissus rénaux des rats traités. En conclusion, ces informations suggèrent que l’efficacité protectrice du JWSJS sur la néphropathie diabétique pourrait être associée à la suppression de l’activation de la voie de signalisation EGFR/MAPK3/1 et à l’atténuation de l’apoptose des cellules rénales.
Introduction
Le diabète sucré (DM) est une maladie chronique qui affecte plusieurs systèmes et peut entraîner diverses complications dues à une hyperglycémie continue, telles que la néphropathie diabétique (DN), la rétinopathie et la neuropathie1. La DN est une complication grave du diabète sucré, représentant environ 30 à 50 % des maladies rénales terminales (IRT)2. Sa manifestation clinique est une microalbuminurie, qui peut évoluer vers une IRT caractérisée par une augmentation du volume glomérulaire, une hyperplasie stromale mésangiale et un épaississement de la membrane basale glomérulaire3. La pathogenèse de la DN est complexe et n’a pas été entièrement élucidée. Les méthodes cliniques telles que l’abaissement de la glycémie, la régulation de la pression artérielle et la réduction de la protéinurie sont principalement utilisées pour retarder sa progression, mais l’effet est général.
À l’heure actuelle, aucun médicament spécifique n’a été trouvé pour traiter le DN4. Pendant des siècles, cependant, les plantes médicinales chinoises ont été largement utilisées dans le traitement du diabète et de ses complications5 et ont amélioré les symptômes cliniques des patients et retardé la progression de la maladie. En raison des avantages des effets multi-composants, multi-cibles et multi-voies, les plantes médicinales chinoises devraient être une source de médicament innovante pour le traitement du DN6.
« Shengjiang san » est issu du « Wanbing Huichun » du médecin de la dynastie Ming, Gong Tingxian. Le livre « Neifu Xianfang » décrit l’utilisation de Bombyx Batryticatus, Cigadae Periostracum, Curcumaelongae Rhizoma et Radix Rhei et Rhizome. Sur cette base, après avoir ajouté Hedysarum Multijugum Maxim, Epimrdii Herba et Smilacis Glabrae Rhixoma, il exerce la fonction de shengjiang san d’augmenter la lucidité, de diminuer la turbidité, de libérer la « chaleur » stagnante et d’harmoniser le « qi » et le sang 7,8. Il augmente également l’effet de renforcement de la rate et de tonification des reins. Son efficacité est compatible avec la pathogenèse du « qi » de DN qui monte et descend dans le désordre en raison d’une carence en « énergie vitale », d’une sécheresse et d’une « chaleur » excessives et d’une stagnation de la « chaleur » causée par un triple énergisant 7,8.
Des études cliniques antérieures ont montré que les plantes médicinales chinoises ont été utilisées pour traiter le diabète et ses complications, et il a été démontré que le jiawei shengjiang san (JWSJS) régule la glycémie et les lipides, réduit la protéinurie et améliore considérablement l’efficacité clinique des patients atteints de DN7 précoce. La capacité du JWSJS à réduire les protéines urinaires et la glycémie chez les rats DN a été confirmée par des études antérieures. Cela se produit probablement en inhibant les voies de signalisation TXNIP/NLRP3 et RIP1/RIP3/MLKL, en réduisant la pyroptose podocytaire et en prévenant l’apoptose nécrotique dans les tissus rénaux des rats DN, obtenant ainsi une protection rénale9. Le JWSJS peut réguler à la hausse l’expression des protéines de néphrine et de podocine et réduire les lésions podocytaires chez les rats DN, suggérant ainsi que le JWSJS a un effet inhibiteur sur les lésions des podocytes. Le JWSJS a un certain effet anti-DN avec de bons profils d’innocuité, mais il y a peu de recherches à ce sujet, et ce travail se concentre principalement sur la pyroptose et l’apoptose nécrotique. La littérature n’est pas suffisamment approfondie ou systématique10. Nos résultats précédents ont confirmé que le JWSJS peut réduire la protéinurie et atténuer les lésions rénales chez les rats DN7. Cependant, il n’y a que quelques études sur le mécanisme du JWSJS pour le traitement de la DN, et celles-ci manquent de profondeur et de systématisation. Ainsi, cette étude vise à analyser les substances moléculaires et les mécanismes d’action du JWSJS pour le traitement de la DN en utilisant la pharmacologie en réseau et à fournir une base solide pour les recherches futures.
La pharmacologie des réseaux est une méthode émergente pour étudier le mécanisme d’action des médicaments, y compris la chimioinformatique, la biologie des réseaux, la bio-informatique et la pharmacologie11,12. La conception de la recherche en pharmacologie en réseau est assez similaire au concept holistique de la médecine traditionnelle chinoise13,14, et c’est une méthode importante pour étudier le mécanisme des plantes médicinales chinoises. L’amarrage moléculaire permet d’étudier les interactions entre les molécules et de prédire leurs modèles de liaison et leur affinité. L’amarrage moléculaire est devenu une technique essentielle dans le domaine de la recherche sur les médicaments assistée par ordinateur15. Par conséquent, cette étude a construit un réseau d’interaction JWSJS-DN-cible par le biais de la pharmacologie du réseau et des méthodes d’amarrage moléculaire qui offre une base fiable et théorique pour une exploration plus approfondie du traitement DN avec JWSJS.
Protocole
Tous les animaux ont été entretenus et utilisés conformément au Guide for the Care and Use of Laboratory Animals du National Research Council des États-Unis, 8e édition, et ont été signalés conformément aux recommandations des lignes directrices ARRIVE16,17. L’étude a été menée conformément au Guide du Conseil national de recherches de Chine pour le soin et l’utilisation des animaux de laboratoire et a été approuvée par le Comité d’éthique animale de l’Université de médecine chinoise du Hebei (DWLL2019030).
1. Ingrédients actifs du JWSJS et collecte cible
- Entrez la composition médicinale JWSJS (Hedysarum Multijugum Maxim, Epimrdii Herba, Smilacis Glabrae Rhixoma, Radix Rhei et Rhizome, et Curcumaelongae Rhizoma) dans la base de données de pharmacologie des systèmes de médecine traditionnelle chinoise et la plateforme d’analyse (TCMSP)18 pour récupérer tous les composants chimiques. Selon le dépistage de l’absorption, de la distribution, du métabolisme et de l’excrétion (ADME), la biodisponibilité orale (OB) ≥ 30% et les propriétés similaires au médicament (DL) ≥ 0,18 ingrédients chimiques19,20.
- Utilisez la base de données TCMSP (https://old.tcmsp-e.com/ tcmsp.php, version 2.3) pour récupérer les cibles correspondantes des ingrédients chimiques.
- Obtenez les ingrédients actifs de Bombyx Batryticatus et de Cicadae Periostracum en effectuant une recherche dans les bases de données de la médecine traditionnelle chinoise et de la composition chimique21.
- Pour la crédibilité de l’expérience, sélectionnez des composés portant le numéro CAS (Chemical Abstracts Service) pour cette étude. Téléchargez ensuite les diagrammes de structure 2D (format .sdf) des ingrédients actifs de PubChem (https://pubchem.ncbi.nlm.nih.gov/, mis à jour en 2021)22.
- Utilisez SwissADME (www.swissadme.ch, mis à jour en 2021)23pour dépister les composants présentant une absorption gastro-intestinale (GI) élevée en tant que similitude médicamenteuse (Lipinski, Ghose, Veber, Egan, Muegge) dont les ≥ 2 éléments étaient « Oui ». Cela a conduit aux composants actifs de Bombyx Batryticatus et Cicadae Periostracum.
- Importez-les dans la base de données TCMSP pour la prédiction des protéines cibles (https://old.tcmsp-e.com/tcmsp.php, Version. 2.3)18.
- Normaliser les objectifs dans la base de données UniProt (https://www.uniprot.org, mise à jour en 2021) avec le statut défini comme Examiné et l’espèce définie comme Humain24.
2. Collecte cible correspondante DN
- Recherchez la néphropathie diabétique à l’aide de GeneCards (https://www.genecards.org/, version. 5.1)25, OMIM (https://omim.org/, mis à jour en 2021)26, TTD (http://db.idrblab.net/ttd/, mis à jour en 2021)27, PharmGKB (https://www.pharmgkb.org/, mis à jour en 2021)28 et bases de données DrugBank (https://www.drugbank.ca/, mis à jour en 2021)29. Obtenez les cibles de DN après combinaison et déduplication.
- Criblage des cibles communes de JWSJS et DN et construction de réseaux
- Filtrez les cibles courantes de JWSJS et DN à l’aide du logiciel R 4.2.0 et dessinez des diagrammes de Venn. Importez les ingrédients actifs et les cibles potentielles de JWSJS dans le logiciel Cytoscape 3.8.030 pour créer un diagramme de réseau médicament-ingrédient-cible qui visualise le lien entre les médicaments, les ingrédients, les cibles et les maladies.
- Que la taille du nœud reflète la taille de la valeur du degré, où une valeur de degré plus élevée indique que le nœud est plus important dans le réseau.
- Construction d’un réseau d’interaction protéine-protéine IPP et criblage de cibles principales
- Analyser les gènes qui se croisent à l’aide de la plateforme en ligne STRING (Version :11.5) pour construire un réseau d’interaction protéine-protéine (IPP)31. Construisez le réseau à l’aide d’un mode d’analyse de protéines multiples , définissez l’espèce sur Homo sapiens et définissez le score d’interaction minimum requis sur >0,930.
- Utilisez Cytoscape 3.8.0 pour analyser topologiquement le réseau, calculer les valeurs de centralité d’intermédiarité (BC), de centralité de proximité (CC), de centralité de degré (DC), de centralité de vecteur propre (EC), de méthode basée sur la connectivité moyenne locale (LAC) et de centralité de réseau (NC) pour chaque nœud, et filtrer les six nœuds dont toutes les valeurs sont supérieures à la médiane32. Répétez ce processus plusieurs fois pour identifier les cibles principales du JWSJS pour la thérapie DN.
- Analyses fonctionnelles GO et analyse d’enrichissement de la voie KEGG
- Effectuer des analyses d’enrichissement GO et KEGG pour identifier les processus biologiques, les fonctions moléculaires, les composants cellulaires et les voies associés aux cibles communes du JWSJS et du DN.
- Utilisez l’org. Hs.eg.db package pour obtenir les ID des cibles d’intersection et utiliser clusterProfiler, org. Hs.eg.db, enrichplot et ggplot2 pour les analyses d’enrichissement33.
- Filtrez l’analyse fonctionnelle de l’enrichissement GO sur les 10 principaux résultats biologiques avec une valeur P corrigée < 0,05, et sélectionnez les 30 principales voies avec l’enrichissement le plus élevé pour l’analyse KEGG.
3. Amarrage moléculaire
- Utilisez le logiciel AutoDock Vina pour effectuer un amarrage moléculaire entre les composants principaux du JWSJS et les cibles principales de la thérapie DN34.
- Recherchez dans la base de données PubChem le fichier sdf de la structure 2D des composants de base de JWSJS. Utilisez le logiciel ChemBio 3D Ultra14.0 pour générer et optimiser sa structure 3D, l’enregistrer au format mol2 et l’utiliser comme fichier de ligand.
- Trouvez et téléchargez le format pdb de la structure 3D des cibles principales à partir de la base de données de la banque de données sur les protéines (PDB) du Research Collaboratory for Structural Bioinformatics (RCSB). Utilisez le logiciel Pymol 2.4.0 pour supprimer les molécules d’eau et les ligands de la structure protéique, enregistrez-le au format pdb et utilisez-le comme fichier récepteur.
- Importez le fichier pdb du récepteur dans le logiciel AutoDockTools 1.5.7 pour l’hydrogénation, convertissez à la fois la protéine réceptrice et le ligand de la petite molécule au format pdbqt, définissez la poche active pour la protéine réceptrice avec le coefficient d’espacement défini à 1.
- Utilisez Autodock vina 1.2.0 pour l’amarrage moléculaire et calculez l’énergie de liaison ; si l’affinité < 0, considérez que la molécule se lie spontanément à la protéine, une valeur absolue d’affinité plus élevée indique une liaison plus stable entre elles. Enfin, visualisez les résultats de l’amarrage à l’aide des logiciels Pymol 2.3.0 et LigPlot 2.2.5.
4. Simulation de dynamique moléculaire
- Pour effectuer des simulations MD à l’aide du logiciel Desmond, procédez comme suit :
- Utiliser la version académique 2019-1 du logiciel Desmond pour évaluer la stabilité et la flexibilité des interactions protéine-ligand.
- Mener des études de dynamique moléculaire (DM) sur un trio des complexes de ligands les plus prometteurs dérivés d’études d’amarrage. Effectuez des simulations dans un environnement aqueux SPC avec 0,15 M de NaCl, en reproduisant les conditions ioniques physiologiques. La boîte de simulation est conçue pour s’assurer que le soluté reste à au moins 10 Å de ses limites. Des contre-ions sont introduits pour neutraliser la charge électrique du système. De plus, des conditions aux limites périodiques sont appliquées, régies par les paramètres du champ de force OPLS 2005.
- Lancez une phase de minimisation de l’énergie pour 100 ps à l’aide des paramètres par défaut de Desmond.
- Assurer la stabilisation de la température et de la pression à 26,85 °C (300 K) et 1,01325 bar grâce à la chaîne Nosé-Hoover et aux méthodologies Martyna-Tobias-Klein sur tous les systèmes MD de production. La simulation de dynamique moléculaire est exécutée avec un pas de temps de 2 fs pour une durée totale de 100 ns, en enregistrant les coordonnées atomiques tous les 100 ps.
- Ouvrez le module SID (simulation interactions diagramme). Chargez les fichiers de données de résultats de simulation dans le module.
- Sélectionnez le type d’analyse souhaité parmi les options disponibles dans le module (par exemple, écart quadratique moyen [RMSD], fluctuation quadratique moyenne [RMSF], analyse de liaison hydrogène, etc.). Spécifiez les paramètres supplémentaires requis pour le type d’analyse choisi.
- Exécutez l’analyse en cliquant sur le bouton Analyser ou Démarrer.
- Une fois l’analyse terminée, visualisez et interprétez les résultats dans l’interface du module SID. Exportez les résultats si nécessaire pour une utilisation ultérieure ou une présentation.
5. Validation de l’expérience sur les animaux
- Animaux et conception expérimentale
REMARQUE : Cette étude a porté sur 75 rats Sprague-Dawley mâles, âgés de 8 semaines et âgés de 8 semaines avec une masse corporelle de 150 g ± 20 g (numéro de certificat de production animale SCXK [Hebei] 2018-004).- Hébergez les rats dans un laboratoire animal de niveau SPF et divisez-les au hasard en groupes normaux et modèles après 1 semaine d’alimentation adaptative. Fournissez au groupe normal un régime alimentaire normal et au groupe modèle un régime riche en sucre et en graisses. Au bout de 4 semaines, jeûnez les rats mais ne les privez pas d’eau pendant 12 h.
- Injecter dans le groupe modèle une injection intrapéritonéale de streptozotocine (STZ ; 35 mg·kg-1). Après 72 h, testez le taux de sucre dans le sang par prélèvement sanguin dans la veine de la queue. Si la glycémie à jeun est de ≥16,7 mmol· L-1, confirmez qu’il s’agit d’un modèle diabétique réussi.
- Confirmez le succès du modèle DN en observant les changements histopathologiques dans le rein du rat.
- Répartissez au hasard les modèles répliqués avec succès dans le groupe modèle, qui a reçu le JWSJS à 4,37 g/kg, 8,73 g/kg et 17,46 g/kg (équivalent à 3,2, 6,3 et 12,6 fois la dose équivalente clinique) ainsi qu’un groupe irbésartan (0,014 g/kg). Chaque groupe était composé de 10 rats. Administrer tous les médicaments par gavage oral une fois par jour. Maintenez ce schéma posologique de manière constante pendant 4 semaines.
- Anesthésier les rats à l’aide d’une injection intrapéritonéale de pentobarbital sodique à 1 % (50 mg/kg) et confirmer la bonne anesthésie par perte du réflexe de retrait de la pédale. Prélever des échantillons de sang dans l’aorte abdominale avant l’euthanasie.
- Prélever les reins après euthanasier les rats à l’aide d’une injection intrapéritonéale de pentobarbital sodique à une dose de 150 mg/kg.
REMARQUE : Les animaux ont été euthanasiés sans cruauté, conformément aux directives (https://www.avma.org/resources-tools/avma-policies/avma-guidelines-euthanasia-animals) les plus récentes de l’American Veterinary Medical Association (AVMA) pour l’euthanasie.
- Analyses histologiques rénales
REMARQUE : Les tissus rénaux ont été fixés dans du paraformaldéhyde à 4 % et déshydratés dans de l’éthanol après 48 h ; Les sections ont été noyées dans de la paraffine. Les coupes ont été coupées en fines tranches (4 μm) pour la coloration à l’hématoxyline et à l’éosine (HE) et à l’acide périodique de Schiff (PAS), et les changements morphologiques de l’histologie rénale ont été observés au microscope optique.- Coloration HE :
- Déparaffinage et hydratation : Traiter les coupes de tissus avec du xylène I et II (10 min chacun), de l’alcool absolu I et II (3 min chacun). Ensuite, immergez les sections de tissu dans de l’éthanol à 95 %, 90 %, 80 % et 70 % (2 min chacune), suivies d’un lavage à l’eau distillée pendant 5 min.
- Placez les sections de tissu dans une coloration à l’hématoxyline pendant 5 min, puis différenciez les sections avec de l’alcool chlorhydrique pendant 5 s.
- Placez la section dans la solution de coloration à l’éosine pendant 3 min.
- Déshydratation, nettoyage et montage : Déshydratez les sections à des moments variables dans différents éthanols (70 %, 80 %, 90 %, 95 % et éthanols absolus), puis clarifiez-les dans du xylène I et II, puis montez avec de la gomme neutre.
- Coloration PAS :
- Suivez les étapes de déparaffinage décrites à l’étape 5.2.1 et traitez la section avec la solution de coloration acide périodique pendant ~8 min.
- Rincez les sections à l’eau distillée pendant 2 min, puis colorez-les avec le réactif Schiff pendant 15 min dans l’obscurité.
- Lavez les sections à l’eau du robinet pendant 10 minutes après les avoir traitées avec le réactif Schiff.
- Contre-colorez les sections à l’aide d’hématoxyline pendant 1 min, puis différenciez-les avec de l’alcool HCl pendant 30 s. Lavez à nouveau les sections à l’eau du robinet pendant 5 minutes pour colorer le noyau en bleu.
- Microscopie électronique :
- Fixez les échantillons dans du glutaraldéhyde à 2,5 % pendant 3 h, puis rincez-les dans du PBS pendant 3 h. De plus, traitez les échantillons avec de l’acide osmique à 1 % pendant 3 h, puis rincez-les à nouveau dans du PBS pendant 3 h.
- Déshydratez-vous par une série graduée de bains d’alcool se terminant par de l’acétone (chaque étape dure environ 2 h au total).
- Infiltrer les échantillons avec un mélange d’époxypropane et de résine époxy (1:1) à température ambiante (RT) pendant 2 h, suivi d’une résine époxy pure à 37 °C pendant 2 h supplémentaires.
- Après cela, durcissez et durcissez les échantillons à des températures de plus en plus élevées sur une période de 36 h avant la section. Ce processus garantit que le tissu est complètement infiltré avec la résine, qui est ensuite durcie pour permettre un tranchage fin pour la microscopie électronique.
- Colorer deux fois avec de l’acétate d’uranyle à 3 % et du plomb-acide, et observer et photographier les échantillons par microscopie électronique dans les 15 minutes.
REMARQUE : Les réglages de la microscopie électronique en transmission (MET) sont les suivants : un grossissement de 7000x en mode à contraste élevé (Zoom-1 HC-1), avec une tension d’accélération de 80,0 kV sur un système MET.
- Coloration HE :
- Immunohistochimie
- Déparaffinage : Placez les sections de tissu dans du xylène I et II pendant 10 min chacune.
- Réhydratation : Réhydratez les sections de tissus déparaffinés en les plaçant successivement dans de l’éthanol absolu I et II pendant 3 min chacune, puis de 95 %, 90 %, 80 % et 70 % d’éthanol pendant 2 min chacune.
- Récupération de l’antigène : Immerger les coupes de tissus dans une solution tampon de citrate-acide citrique 0,1 M sous haute pression pendant environ 5 minutes, puis refroidir à RT.
- Blocage : Pour éviter la liaison non spécifique des anticorps, bloquer en incubant les sections de tissu avec 5 % de sérum de chèvre normal à environ 37 °C pendant 30 min.
- Incubation primaire des anticorps : Ajouter les anticorps primaires p-EGFR (dilué 1:200) et p-MAPK3/1 (dilué 1:200) sur des coupes de tissus et incuber pendant une nuit à 4 °C dans une chambre humidifiée.
- Incubation d’anticorps secondaires : Lavez les sections trois fois avec du PBS, puis ajoutez des anticorps secondaires marqués à la biotine (dilués dans du PBS selon les instructions du fabricant) sur les sections et incubez à 37 °C pendant 30 min.
- Appliquez une solution de travail de streptavidine conjuguée à la peroxydase de raifort sur les coupes de tissus à 37 °C, puis lavez-les trois fois à l’aide d’une solution saline tamponnée au phosphate (PBS).
- Pour le développement DAB, incuber les sections avec la solution de développement DAB (3 min dans l’obscurité à RT), suivie d’un rinçage à l’eau distillée. Le DAB agit comme un substrat chromogène pour l’enzyme raifort peroxydase (HRP), qui brunit lors de l’oxydation.
- Utilisez de l’hématoxyline pour contre-coloration pendant environ 2 min, différenciez les sections avec de l’alcool chlorhydrique à 1% pendant 5 s, puis lavez à l’eau courante pour qu’elles deviennent bleues.
- Déshydrater en plaçant successivement les sections dans une série d’éthanol de faible à haute concentration, clair dans du xylène I et II, et monter les sections avec de la gomme neutre.
REMARQUE : Cette procédure dure environ 18 à 24 h, y compris l’incubation primaire des anticorps pendant la nuit. - Sélectionnez au hasard trois champs visuels (200x) pour chaque section et analysez les résultats de coloration des sections à l’aide d’un logiciel d’analyse d’images. Le logiciel Image Pro Plus 6.0 a été utilisé en suivant les étapes ci-dessous.
- Tout d’abord, importez une image de la section dans le logiciel.
- Correction de la densité : Pour garantir des résultats précis, effectuez une correction de la densité.
- Accédez à Mesurer >étalonnage > l’intensité > nouvelles > Normes > options de densité > options facultatives image. Ensuite, cliquez sur une zone vide de l’image pour enregistrer la valeur d’arrière-plan et confirmez-la en cliquant sur OK.
- Réglage des paramètres de mesure : Configurez les paramètres de mesure pour calculer la surface et la densité optique intégrée (IOD).
- Cliquez sur Mesurer > Nombre/Taille > Mesurer > sélectionnez Mesures. Sélectionnez Area(100) et IOD, puis cliquez sur OK.
- Allez dans Options, cochez Fond sombre sur l’échantillon, Préfiltre 4-Connect et cliquez sur OK.
- Sélection des couleurs : pour déterminer avec précision la positivité, sélectionnez des couleurs pour détecter les zones tachées par rapport aux zones non tachées.
- Cliquez sur Sélectionner les couleurs > histogramme basé > HSI. Ajustez la valeur H en fonction de l’image tout en gardant S inchangé et I compris entre zéro et la valeur d’arrière-plan. Ensuite, validez en cliquant sur Fermer.
- Collecte et calcul des données : Effectuez la collecte et le calcul des données en cliquant sur Mesurer > Collecteur de données > Disposition, où Nom, Superficie (Somme) et IOD (Somme) sont sélectionnés. Ensuite, cliquez sur Compter > Collecter maintenant > liste de données pour exporter les données à des fins d’analyse ou de stockage plus approfondis.
REMARQUE : Cela a permis d’obtenir une mesure semi-quantitative de l’expression des protéines dans chaque section en termes de IOD/Zone, qui indique la quantité de protéines présente par rapport à la surface totale analysée.
- Transfert Western
- Prélevez le tissu rénal et coupez-le en morceaux. Placez ces morceaux dans un tube à centrifuger de 1,5 mL, ajoutez la solution de lyse protéique pré-refroidie (50 mM de Tris [pH 7,4], 150 mM de NaCl, 1 % de Triton X-100, 1 % de désoxycholate de sodium, 0,1 % de dodécylsulfate de sodium [SDS]) et homogénéisez.
- Laisser sur glace pendant 30 min, puis centrifuger à 13400 x g pendant 20 min à 4 °C. Conservez l’échantillon obtenu dans un congélateur à -80 °C.
- Utilisez la méthode de Bradford pour quantifier les protéines.
- Préparez la solution de travail Coomassie Brilliant Blue en mélangeant le réactif et l’eau distillée dans un rapport de 1:4.
- Établissez trois groupes : blanc, groupe protéique standard et groupe protéique échantillon. Ajouter 3 ml de solution de travail Coomassie Brilliant Blue à chaque groupe, ainsi que du sérum physiologique pour le groupe blanc, de la protéine standard pour le groupe standard et de la protéine surnageante extraite pour le groupe échantillon.
- Après avoir laissé reposer les mélanges pendant 5 minutes, mesurez leurs valeurs d’absorbance à l’aide d’un spectrophotomètre ultraviolet.
- Calculez la concentration de l’échantillon à l’aide de la formule suivante : Concentration en protéines (mg/mL) = (Valeur d’absorbance de l’échantillon/Valeur d’absorbance standard du tube) x Concentration standard en protéines x 5.
- Ajoutez un volume égal de tampon de chargement 6x à chaque échantillon de protéines. Faites bouillir à 100 °C pendant 5 min avant de les aliquote et de les conserver dans un congélateur à -20 °C jusqu’à nouvel ordre.
- Effectuez une électrophorèse, un transfert et un blocage standard.
- Effectuez une électrophorèse standard sur gel de polyacrylamide (PAGE) à l’aide d’un gel de résolution à 12 %. Appliquez une tension constante de 100 V pour le gel d’empilage et de 120 V pour le gel de résolution jusqu’à ce que la face du colorant atteigne le bas du gel.
- Transférez les protéines sur des membranes de difluorure de polyvinylidène (PVDF) à 100 V pendant 2 h dans une chambre froide à 4 °C à l’aide d’un système de transfert humide.
- Après le transfert de protéines, bloquer les membranes avec 5% de lait écrémé dans le TBST pendant 1 h à la RT.
- Anticorps primaires dilués EGFR (1:2 000), p-EGFR (1:2 000), MAPK3/1 (1:2 000), p-MAPK3/1 (1:2 000), Bcl-2 (1:2 000), BAX (1:2 000) et CAPDH (1:5 000) dans TBST avec 5 % de BSA. Ajoutez ces anticorps primaires dilués et incubez les membranes pendant la nuit à 4 °C en agitant doucement.
- Après avoir lavé la membrane trois fois avec du TBST, ajoutez des anticorps secondaires dilués (1:5 000), suivis d’une incubation pendant 1 h. Après le développement des couleurs, effectuez une analyse quantitative des bandes cibles à l’aide du logiciel ImageJ.
- Analyse qPCR
- Regroupement : Attribuez des échantillons à des groupes - Contrôle, DN, Irbésartan, JWSJS-L, JWSJS-M, JWSJS-H.
- Extraction de l’ARN : Effectuer l’homogénéisation des tissus et l’extraction de l’ARN, suivie de l’ajout de chloroforme, de la centrifugation et de la précipitation de l’ARN selon les instructions du fabricant.
- Précipitation et lavage de l’ARN : Précipiter l’ARN avec de l’isopropanol et laver avec de l’éthanol.
- Solubilisation de l’ARN : Sécher la pastille d’ARN et la dissoudre dans de l’eau traitée au DEPC.
- Synthèse de l’ADNc : Effectuez la transcription inverse à l’aide de mélanges réactionnels spécifiques selon les instructions du fabricant.
- Amplification qPCR : Utilisez des amorces spécifiques pour GAPDH, MAPK3, MAPK1 et EGFR pour la qPCR et effectuez l’amplification selon les instructions du fabricant.
Les séquences d’amorces étaient les suivantes :
GAPDH : F-5'-GCAAGTTCAACGGCACAG-3', R-5'-CTCGCTCCTGGAAGATGG-3' ;
MAPK3 : F-5'-AGATCTGTGATTTTGGCCT-3', R-5'-TCAATGGATTTGGTGTAGC-3' ;
MAPK1 : F-5'-CCTCAAGCCTTCCAACCTC-3', R-5'-GCCCACAGACCAAATATCA-3' ;
EGFR : F-5'-GGGGATGTGATTATTTCTG-3, R-5'-ATTTTGGTTTTTTGATTGG-3'.
6. Méthodes statistiques
- Effectuez l’analyse à l’aide d’un logiciel approprié (p. ex., SPSS) et représentez les données mesurées comme la moyenne ± l’écart(s) type(s). Si les données répondent aux critères de distribution normale et d’homogénéité de la variance, comparer entre les groupes à l’aide de l’ANOVA à un facteur et effectuer plusieurs comparaisons avec la méthode de Bonferroni.
- Utilisez le test T2 pour des comparaisons multiples si la variance n’est pas homogène. Considérez P < 0,05 comme statistiquement significatif.
Résultats
Suite au protocole, 90 principes actifs de JWSJS ont finalement été obtenus à partir de l’analyse après criblage et déduplication selon les normes établies de OB et DL. Ceux-ci comprenaient 20 types d’Hedysarum Multijugum Maxim, 23 types d’Epimrdii Herba, 15 types de Smilacis Glabrae Rhixoma, 16 types de Radix Rhei et Rhizome, quatre types de Curcumaelongae Rhizoma, 15 types de Cigadae Periostracum et six types de composants de Bombyx Batryticatus . Étant donné qu’il y a beaucoup de matières actives dans le JWSJS, seulement 20 sont répertoriés (voir le tableau 1). Après déduplication, 396 cibles correspondant aux principes actifs du JWSJS ont finalement été obtenues.
Après avoir recherché des gènes liés à la maladie, 3035 gènes cibles liés à l’ADN ont finalement été obtenus après fusion et déduplication. Les cibles correspondantes de la DN ont été comparées et analysées avec les cibles des ingrédients actifs des médicaments. L’intersection a été déterminée, ce qui a donné lieu à 227 cibles d’intersection du JWSJS et du DN. Un diagramme de Wayne a ensuite été dessiné (voir la figure 1A). Le diagramme de réseau « médicament-ingrédient-cible » a été construit à l’aide du logiciel Cytoscape 3.8.0 (voir Figure 1B), et une analyse topologique a été effectuée. Chaque nœud a été classé de haut en bas en fonction de la valeur du degré. Les cinq principaux composants du médicament étaient la quercétine, l’acide palmitoléique, la lutéoline, le kaempférol et la naringénine, et les cinq principales cibles étaient PTGS2, PTGS1, NCoA2, AR et ESR1.
Ensuite, un réseau PPI pour les cibles d’intersection JWSJS et DN a été développé (196 nœuds et 1714 arêtes avec une valeur moyenne de degré de 17,4). De plus, sept cibles clés qui pourraient être les cibles clés du JWSJS pour le traitement de la DN ont été obtenues après trois criblages : MAPK14, TP53, MAPK3, MYC, HIF1A, ESR1 et MAPK1 (voir Figure 1C).
Ensuite, une analyse d’enrichissement en GO a été effectuée pour spéculer sur les caractéristiques biologiques de la cible du JWSJS dans le traitement de la DN. Parmi BP, CC et MF, les dix entrées enrichies les plus importantes sont tracées dans la figure 1D. Les résultats montrent que JWSJS pourrait réguler la prolifération, la différenciation et l’apoptose cellulaires en se liant à des facteurs de transcription et à des protéines kinases dans les radeaux membranaires et les microdomaines membranaires, entraînant ainsi un effet thérapeutique sur la DN. Les trente principales voies enrichies sont représentées à la figure 1E. Les résultats montrent que le traitement JWSJS de la DN pourrait agir sur 181 voies de signalisation, impliquant principalement les lipides et l’athérosclérose, la voie de signalisation PI3K-Akt, la cancérogenèse chimique, l’hépatite, le cancer de la prostate, l’apoptose, la voie de signalisation HIF-1 et la voie de signalisation TNF.
Pour explorer davantage les cibles des 30 premières voies enrichies en KEGG, nous avons utilisé le logiciel Cytoscape 3.8.0 pour construire une carte de réseau de relation de relation de voie de signalisation KEGG pour la DN traitée par JWSJS. MAPK1, MAPK3, EGFR et AKT1 se sont avérés être des cibles de plusieurs voies agissant ensemble (voir Figure 1F), suggérant que ces protéines pourraient jouer un rôle central dans la médiation des effets de JWSJS sur la DN.
Pour valider davantage les cibles potentielles de JWSJS dans le traitement de la DN, nous avons ensuite examiné trois cibles clés, MAPK1, MAPK3 et EGFR, avec des valeurs de haut degré dans le réseau PPI et le réseau de voies de signalisation KEGG. Ceux-ci ont été amarrés moléculairement avec de la quercétine, de l’acide palmitoléique et de la lutéoline, les trois principaux composants des noyaux de JWSJS pour le traitement de la DN. Les conditions de dépistage de l’ID PDB sont les suivantes : (1) Être dérivé de l’homme ; (2) Résolution conformationnelle ≤ 2,5Å, c’est-à-dire aussi petite que possible ; (3) La séquence conformationnelle doit être aussi complète que possible, c’est-à-dire que le complexe structurel doit avoir des informations sur les ligands des petites molécules ; et (4) la valeur du pH cristallin doit être aussi proche que possible de la plage physiologique normale du corps humain35. Enfin, les ID PDB de MAPK1, MAPK3 et EGFR étaient 4QTA, 4QTB et 7JXQ.
Pour vérifier la fiabilité du logiciel AutoDock au système d’amarrage dans cette étude36, nous avons d’abord réamarré les trois protéines de MAPK1, Mapk3 et EGFR. La conformation des ligands dans la structure cristalline d’origine des trois protéines cibles a été superposée aux ligands après l’amarrage (Figure 2A). Les valeurs de l’écart quadratique moyen (RMSD) entre la conformation du ligand après l’amarrage et la structure cristalline d’origine ont ensuite été calculées. Les valeurs RMSD étaient respectivement de 1,129, 1,201 et 1,877 Å, toutes ≤ 2Å. Cela a montré que la méthode d’amarrage était fiable et pouvait être utilisée pour la prochaine vérification d’amarrage moléculaire. Pour comparer et déclarer le potentiel inhibiteur des composants de base, les ligands originaux de MAPK1, MAPK3 et EGFR ont ensuite été utilisés comme témoins. L’analyse d’amarrage a permis de prédire avec succès l’énergie de liaison entre la lutéoline, l’acide palmitoléique et la quercétine et les trois cibles principales. Ceux-ci étaient tous négatifs et inférieurs à -637 ; voir tableau 2. Il convient de noter que l’amarrage moléculaire entre la lutéoline et MAPK1 a la taille de cavité la plus élevée et l’énergie de liaison la plus faible. Dans l’ensemble, les résultats d’amarrage moléculaire ont montré que la lutéoline, l’acide palmitoléique et la quercétine avaient une bonne activité de liaison avec trois cibles principales (Figure 2B,C).
Le RMSD est utilisé pour quantifier les changements de déplacement moyens d’un groupe sélectionné d’atomes par rapport à un référentiel. Pendant ce temps, le RMSF caractérise efficacement les altérations localisées le long de la chaîne protéique. Le graphique RMSD (Figure 2D) montre que les valeurs RMSD des composés lutéoline-MAPK1 et quercétine-MAPK3 se sont stabilisées en 5 ns. Le complexe lutéoline-EGFR a montré une RMSD fluctuante allant de 0 à 35 ns ; cette valeur s’est stabilisée à 35 ns jusqu’à la fin de la simulation MD de 100 ns. Tous les complexes ont interagi de manière stable à la fin de la simulation MD de 100 ns. La valeur RMSF a été évaluée à partir de la trajectoire de simulation MD : les atomes du site actif et de la chaîne principale qui fluctuaient de manière minimale impliquaient un changement conformationnel minimal, suggérant que le composé principal mentionné est solidement ancré dans la cavité de la poche de liaison de la protéine cible. Les résultats de RMSF ont montré des fluctuations limitées dans les structures complexes.
Enfin, nous vérifions les résultats ci-dessus in vivo. Nous avons d’abord observé que le poids des rats dans le groupe modèle diminuait de manière significative, et que le GSP, LDL-C, UTP et FBG augmentaient significativement (P < 0,05). Le poids corporel des rats a augmenté de manière significative dans le groupe irbésartan et dans chaque groupe JWSJS par rapport au groupe modèle. La GSP, la LDL-C, l’UTP et la FBG ont diminué à des degrés divers (P < 0,05 ; voir tableau 3).
Ensuite, la coloration HE a montré que les glomérules du groupe normal avaient une taille normale. Ils étaient de structure régulière et claire et avaient une membrane basale lisse, des tubules rénaux bien disposés et aucune infiltration de cellules inflammatoires. Dans le groupe modèle, les glomérules étaient hypertrophiques, la membrane basale était épaissie et la matrice mésangiale était augmentée. L’interstitium était infiltré de cellules inflammatoires. Les manifestations pathologiques de chaque groupe d’administration ont été atténuées à des degrés divers par rapport au groupe modèle (voir figure 3A).
La coloration PAS a montré que le groupe modèle avait des volumes glomérulaires accrus, une membrane basale épaissie et une matrice mésangiale accrue par rapport au groupe normal. Ces manifestations pathologiques ont été significativement atténuées par chaque groupe d’administration (voir Figure 3B). En utilisant la microscopie électronique à transmission, nous avons constaté que la membrane basale glomérulaire du groupe modèle était épaissie par rapport au groupe normal. La matrice mésangiale s’est développée et les processus du pied des podocytes ont été largement fusionnés. Les manifestations microscopiques des rats dans chaque groupe d’administration ont été atténuées à des degrés divers par rapport au groupe modèle (voir la figure 3C).
Enfin, les expressions de l’EGFR total, du p-EGFR, de MAPK3/1 et du p-MAPK3/1 ont été détectées pour voir si elles changeaient chez les rats DN traités par JWSJS. Il n’y a pas eu de changement significatif dans l’expression totale de l’EGFR et de MAPK3/1 dans les groupes modèles par rapport au groupe normal. L’expression de p-EGFR, p-MAPK3/1 et BAX a augmenté de manière significative, et l’expression de BCL-2 a diminué de manière significative. Par rapport au groupe modèle, l’expression de p-EGFR, de p-MAPK3/1 et de BAX a été significativement réduite, et l’expression de BCL-2 a été significativement régulée à la hausse à des degrés divers dans les tissus rénaux de rat dans chaque groupe de dosage (Figure 3D, E). Ce résultat a été confirmé par immunohistochimie (Figure 3F,G). Cette étude a montré que le JWSJS pouvait protéger les reins chez les rats DN en régulant l’expression des protéines p-EGFR, p-MAPK3/1, BAX et BCL-2 et en réduisant l’apoptose cellulaire. De plus, la qPCR a été utilisée pour évaluer les niveaux d’expression de MAPK3, MAPK1 et de l’ARNm EGFR dans divers groupes. Les résultats ont révélé que l’expression relative dans le groupe DN était significativement plus élevée par rapport au groupe témoin, ainsi qu’aux groupes Irbésartan, JWSJS-L, JWSJS-M et JWSJS-H. Cette constatation corrobore encore les premiers résultats (figure 3H).
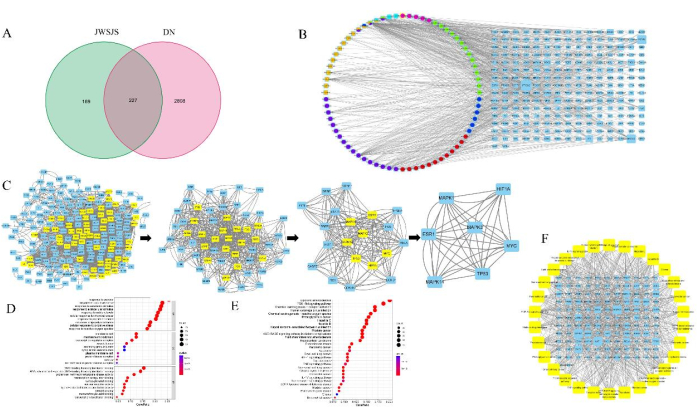
Figure 1 : La pharmacologie du réseau a clarifié les cibles potentielles du JWSJS et les voies de signalisation dans la néphropathie diabétique. (A) Diagramme de Venn des cibles croisées du JWSJS et de la néphropathie diabétique. Le vert représente le nombre de cibles thérapeutiques des composants du JWSJS, et le violet représente le nombre de cibles pertinentes du DN. La partie sécante représente le nombre de cibles sécantes (c’est-à-dire le nombre de cibles de JWSJS pour DN). (B) Schéma de réseau « médicament-ingrédient-cible » du JWSJS dans le traitement de la DN. Le bleu clair représente les cibles pertinentes du JWSJS pour le traitement par DN. Le fuchsia représente l’ingrédient actif de Bombyx Batryticatus. Le vert représente les principes actifs d’Hedysarum Multijugum Maxim. Le bleu foncé représente les principes actifs de Radix Rhei et Rhizome. Le rouge représente les principes actifs de Cicadae Periostracum. Le violet représente les ingrédients actifs d’Epimrdii Herba. Le jaune représente les principes actifs de Smilacis Glabrae Rhixoma. Le bleu ciel représente les principes actifs du rhizomae Curcumaelongae. (C) Réseau PPI de cibles d’intersection JWSJS et DN. (D) Les 10 gènes les plus significatifs identifiés par l’analyse ontologique des gènes cibles du traitement impliqués dans le traitement de la DN par le JWSJS. (E) Les 30 gènes les plus significatifs identifiés par l’analyse de la voie des gènes cibles du traitement impliqués dans le traitement de la DN par le JWSJS. (F) Le réseau de relations de la voie de signalisation KEGG dans le traitement de la DN par le JWSJS. Les icônes jaunes représentent les voies de signalisation. Les icônes bleues représentent les objectifs d’action. Un graphique plus grand implique que plus de voies y sont connectées. Veuillez cliquer ici pour voir une version agrandie de cette figure.
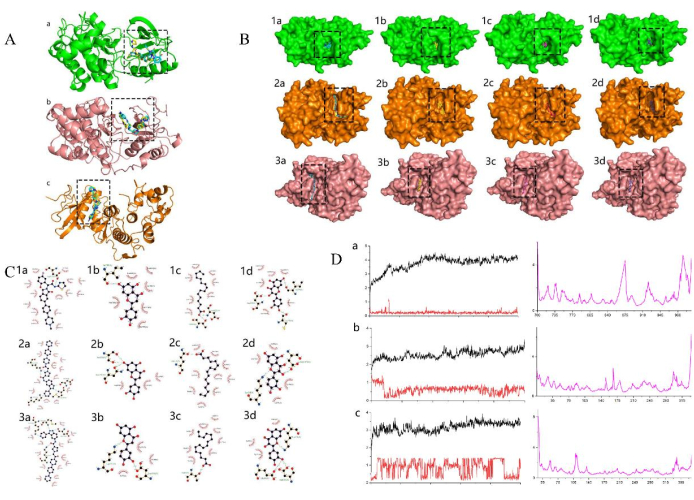
Figure 2 : Visualisation des trajectoires d’amarrage moléculaire et de dynamique moléculaire du JWSJS dans le traitement de la néphropathie diabétique. (A) Les conformations du ligand dans la structure cristalline d’origine des trois complexes protéiques cibles 7JXQ (a), 4QTA (b) et 4QTB (c) sont comparées aux conformations du ligand après l’amarrage. Le vert, l’orange et le rose sont respectivement les protéines cibles EGFR, MAPK1 et MAPK3. L’or est la molécule de ligand d’origine, et le bleu est la molécule de ligand après l’amarrage. (B) Visualisation d’amarrage moléculaire 3D du JWSJS dans le traitement de la néphropathie diabétique. Le vert, l’orange et le rose sont les protéines cibles 7JXQ, 4QTA et 4QTB, respectivement. 1a-3a représente le diagramme d’interaction de 7JXQ, 4QTA et 4QTB avec l’inhibiteur d’origine (en bleu). 1b-3b représente le diagramme d’interaction de 7JXQ, 4QTA, 4QTB et lutéoline (jaune). 1c-3c représente le diagramme d’interaction de 7JXQ, 4QTA, 4QTB et de l’acide palmitoléique (fuchsia). 1d-3d représente le diagramme d’interaction de 7JXQ, 4QTA, 4QTB et quercétine (violet). (C) Visualisation d’amarrage moléculaire 2D du JWSJS dans le traitement de la néphropathie diabétique. 1a-3a représente le diagramme d’interaction de 7JXQ, 4QTA et 4QTB avec l’inhibiteur d’origine. 1b-3b représente le diagramme d’interaction de 7JXQ, 4QTA, 4QTB et lutéoline. 1c-3c représente le diagramme d’interaction de 7JXQ, 4QTA, 4QTB et de l’acide palmitoléique. 1d-3d représente le diagramme d’interaction de 7JXQ, 4QTA, 4QTB et quercétine. (D) Analyse RMSD et RMSF des trajectoires de dynamique moléculaire de (a) la lutéoline et la protéine cible 7JXQ, (b) la lutéoline et la protéine cible 4QTA, et (c) la quercétine et les complexes de protéine cible 4QTB. Veuillez cliquer ici pour voir une version agrandie de cette figure.
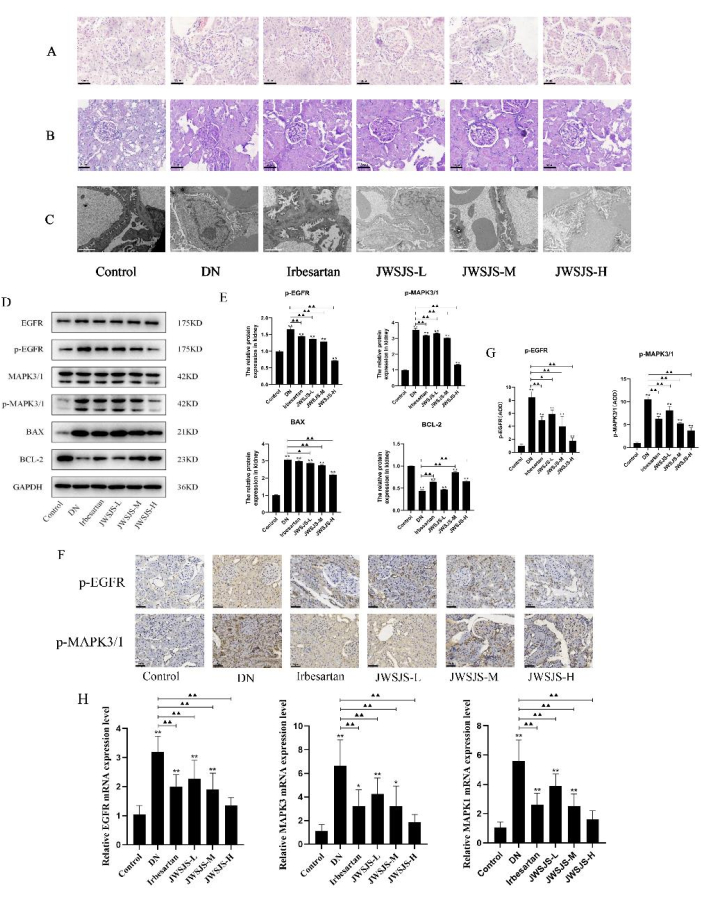
Figure 3 : Le JWSJS atténue les lésions rénales et supprime l’activation de la voie de signalisation EGFR/MAPK3/1 dans des expériences in vivo. (A) coloration HE et (B) coloration périodique à l’acide Schiff (PAS) des tissus rénaux de rat dans différents groupes (amplification, 200x ; n = 10). (C) Microscopie électronique à transmission du tissu rénal chez différents groupes de rats (grossissement, 5000x ; n = 3). (D) EGFR, p-EGFR, MAPK3/1, p-MAPK3/1, BAX et BCL-2 dans le tissu rénal du rat d’un diabétique par western blot (n = 3). (E) Analyse statistique de l’expression de p-EGFR, p-MAPK3/1, BAX et BCL-2. (F) Analyse immunohistochimique de l’expression de p-EGFR ET de p-MAPK3/1 dans les six groupes (n = 6). (G) Analyse statistique de l’expression de p-EGFR ET de p-MAPK3/1. (H) analyse qPCR de l’expression de l’ARNm MAPK3, MAPK1 et EGFR dans six groupes. *P < 0,05 par rapport au contrôle. **P < 0,01 par rapport au contrôle. ▲P < 0,05 par rapport à DN. ▲▲P < 0,01 par rapport à DN. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Tableau 1 : Informations sur certaines matières actives du JWSJS. Il donne des détails sur chaque composant et leurs caractéristiques ou propriétés. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 2 : Tableau des résultats d’amarrage des cibles principales et des principaux ingrédients actifs du JWSJS. Le tableau présente les résultats des études d’amarrage des cibles principales et des principaux composants actifs du JWSJS. Ce tableau montre comment ces constituants interagissent avec leurs cibles respectives, ce qui peut donner un aperçu du mécanisme d’action du JWSJS. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 3 : Effet du JWSJS sur le poids corporel et les indices biochimiques chez les rats atteints de néphropathie diabétique (exprimé en moyenne ±écart-type, n = 10). Par rapport au groupe normal : * P < 0,05. Par rapport au groupe de modèles : # P < 0,05. Veuillez cliquer ici pour télécharger ce tableau.
Discussion
Notre étude a utilisé une combinaison de pharmacologie de réseau, d’amarrage moléculaire et de modèles animaux in vivo . Une étape critique a été la mise en place du réseau « drug-component-target », qui a été crucial pour identifier les mécanismes potentiels du JWSJS dans le traitement de la DN, en se concentrant particulièrement sur son interaction avec la voie de signalisation EGFR/MAPK3/1.
Au cours de cette étude, nous avons apporté plusieurs modifications, notamment dans le processus d’amarrage moléculaire, afin d’améliorer la précision de nos prédictions. Le dépannage s’est principalement concentré sur l’optimisation des conditions pour le modèle animal in vivo afin de garantir sa pertinence pour la DN humaine. En identifiant les principaux composants actifs et cibles du JWSJS, cette étude fournit une base théorique pour la poursuite de la recherche et du développement du JWSJS en tant que candidat médicament potentiel pour le traitement de la DN.
L’étude a examiné le mécanisme d’action potentiel du JWSJS dans la réduction de l’apoptose rénale dans la DN. Les résultats de l’amarrage moléculaire ont montré que la quercétine, l’acide palmitoléique et la lutéoline ont des activités de liaison régulières à des cibles clés, notamment MAPK1, MAPK3 et EGFR. Nous avons sélectionné ces cibles pour une étude plus approfondie en raison de leur action commune dans de multiples voies. Chez les rats DN, le traitement par JWSJS a entraîné une diminution significative des taux de FBG et de GSP, une amélioration de l’UTP et du LDL-C, une prise de poids et une amélioration des manifestations microscopiques du tissu rénal, indiquant l’efficacité potentielle du JWSJS dans le traitement de la DN.
L’apoptose est un mode critique de mort cellulaire, et la dérégulation peut augmenter le risque de diverses maladies38. Des études antérieures ont démontré que les rats DN présentaient une expression accrue des protéines BAX et caspase-3 liées à l’apoptose, et une augmentation significative du nombre de cellules apoptotiques dans le tissu rénal39,40. Les résultats ont montré que le traitement JWSJS a inversé ces changements, suggérant qu’il peut atténuer l’apoptose des podocytes dans des conditions diabétiques.
Une étude plus approfondie du mécanisme d’action potentiel du JWSJS a montré qu’il a un effet multi-cibles et multi-voies sur la DN. Nous nous sommes concentrés sur l’étude de MAPK1, MAPK3 et EGFR, car ils avaient le plus grand nombre de voies d’enrichissement. La voie ERK, qui est impliquée dans divers processus physiologiques et pathologiques tels que la croissance cellulaire, la prolifération, la différenciation, l’apoptose et la sécrétion anormale de stéroïdes, est une voie essentielle dans la voie de transduction du signal MAPK 13,41,42,43. Il en a déduit que JWSJS a sauvé l’apoptose des podocytes en inhibant la voie de signalisation EGFR/MAPK3/1.
Nous avons également constaté que JWSJS pouvait réguler l’expression de p-EGFR et de p-MAPK3/1, ce qui entraînait des niveaux nettement régulés à la hausse de Bcl-2 mais une régulation à la baisse notable de Bax. Ceci, à son tour, a conduit à une réduction de l’apoptose des cellules rénales. Des résultats similaires ont été trouvés dans des études précédentes. Par exemple, Chen a rapporté que la délétion de l’EGFR dans les podocytes atténuait la néphropathie diabétique44. Certains chercheurs ont constaté que la voie EGFR/ERK favorisait la prolifération et la différenciation des cellules épithéliales intestinales porcines9. L’inhibition de l’EGFR peut réguler à la baisse l’expression du TGF-β et du BAX, améliorant ainsi la fibrose rénale et l’apoptose45. Ces résultats suggèrent que le JWSJS est une prescription de médecine traditionnelle chinoise jouant un rôle important dans le traitement adjuvant de la DN en inhibant la voie de signalisation EGFR/MAPK3/1. Cependant, d’autres études sont nécessaires pour bien comprendre le mécanisme d’action potentiel du JWSJS dans le traitement de la DN.
Cette étude comportait plusieurs limites. Premièrement, le recours à des modèles animaux peut ne pas reproduire entièrement la réponse humaine au JWSJS. De plus, les prédictions pharmacologiques en réseau, bien qu’elles soient perspicaces, nécessitent une validation supplémentaire par le biais de données expérimentales. D’autres études cliniques sur des sujets humains sont nécessaires pour valider les résultats. Deuxièmement, bien que la pharmacologie en réseau soit un outil utile pour analyser les relations entre les médicaments et les maladies, les résultats doivent être interprétés avec prudence car ils sont basés sur des prédictions plutôt que sur des données expérimentales. Troisièmement, le mécanisme d’action du JWSJS pour le traitement de la DN reste incertain, et l’étude s’est concentrée uniquement sur les cibles potentielles de MAPK1, MAPK3 et EGFR.
Les méthodes utilisées dans cette étude peuvent être appliquées à d’autres formulations de la médecine traditionnelle chinoise, ce qui pourrait conduire à la découverte de nouvelles options thérapeutiques pour la DN et d’autres maladies complexes. De plus, cette approche jette les bases de l’intégration de la médecine traditionnelle et moderne dans les recherches pharmacologiques futures. D’autres études sont nécessaires pour élucider pleinement les mécanismes moléculaires sous-jacents aux effets thérapeutiques du JWSJS. Enfin, l’étude n’a pas examiné les effets secondaires potentiels ou la toxicité du JWSJS, qui sont des considérations importantes dans le développement de tout nouveau médicament. D’autres recherches sont nécessaires pour évaluer l’innocuité du JWSJS et assurer son application clinique.
En résumé, cette étude examine principalement le potentiel thérapeutique de Jiawei Shengjiang San pour la néphropathie diabétique en utilisant la pharmacologie de réseau, l’amarrage moléculaire et la validation animale in vivo . Il met l’accent sur les aspects procéduraux, en se concentrant sur la méthodologie employée pour comprendre les interactions entre le JWSJS et la voie de signalisation EGFR/MAPK3/1 et comment ces interactions réduisent potentiellement l’apoptose des cellules rénales dans la DN.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Cette étude a été soutenue par le projet général de la Fondation des sciences naturelles de la province du Hebei, Chine (n° H2019423037).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 2&fois ; SYBR Green qPCR Master Mix ; | Servicebio, Wuhan, Chine | G3320-05 | |
| Quantification des protéines urinaires (UTP) sur 24 heuresNanjing | Jiancheng Institute of Biological Engineering | N/A | |
| 3,3'-Diaminobenzidine | Shanghai Huzheng Biotech, Chine | 91-95-2 | |
| Instrument d’analyse biochimique automatique | Hitachi, Japon | 7170A | |
| Ethanol anhydre | Biosharp, Tianjin, Chine | N/A | |
| Anticorps primaires BAX ; | Affinity, États-Unis | AF0120 | |
| Anticorps primaires BCL-2 du rat. | Affinity, USA | AF6139 | Rat |
| BX53 | microscope Olympus, Japon | BX53 | |
| Substitut de chloroforme | ECOTOP, Guangzhou, Chine | ES-8522 | |
| Desmond software ; | New York, NY, États-Unis | Lancement 2019-1 | |
| Bain d’eau numérique à température constante | Changzhou Jintan Liangyou Instrument, Chine | DK-8D | |
| EGFR Anticorps primaires ; | Affinity, États-Unis | AF6043 | Rat |
| Embed-812 RESIN | Shell Chemical, États-Unis | 14900 | |
| Glycémie à jeun (FBG) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| Analyseur d’étiquettes enzymatiques à longueur d’onde complète de type FC | Multiskan ; Thermo, États-Unis n | /a | |
| gapdh ; Anticorps primaires ; | Affinity, États-Unis | AF7021 | |
| Protéine sérique glyquée de rat (GSP) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| Microscope électronique à transmission | Hitachi, Japon | H-7650 | |
| Solution de coloration à l’hématoxyline/éosine (HE) | Servicebio, États-Unis | G1003 | |
| Image-Pro Plus | MEDIA CYBERNETICS, ÉTATS-UNIS | N/A | |
| Instrument d’amplification PCR en temps réel | Applied Biosystems, États-Unis | iQ5 ; | |
| Comprimés d’irbésartan | Hangzhou, Sanofi Pharmaceuticals | , N/A | |
| Isopropanol | , Biosharp, Tianjin, Chine | N/A | |
| ; Granules JWSJS | Guangdong Yifang Pharmaceutical | N/A | |
| Kodak Image Station 2000 MM imaging system | Kodak, USA | IS2000 | |
| Cholestérol de basse densité (LDL-C) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| MAPK3/1Anticorps primaires ; | Affinity, États-Unis | AF0155 | Centrifugeuse |
| médicale | pour rats Hunan Xiangyi Développement d’instruments de laboratoire, Chine ; | TGL-16K | |
| Mini système de transfert trans-transfert | Bio-Rad, États-Unis | N/A | |
| Système d’électrophorèse Mini-PROTÉEN | Bio-Rad, États-Unis | N/A | |
| Spectrophotomètre NanoVue Plus | Healthcare Bio-Sciences AB, Suède | 111765 | |
| p-EGFR Anticorps primaires ; | Affinity, États-Unis | AF3044 | Rat |
| Solution de coloration périodique à l’acide de Schiff (PAS) | Servicebio, États-Unis | G1008 | |
| p-MAPK3/1 Anticorps primaires ; | Affinity, USA | AF1015 | |
| Anticorps secondaires | du rat ; Santa Cruz, États-Unis | sc-2357 | Rabbit |
| Streptozotocin | Sigma, États-Unis | S0130 | |
| SureScript First-Strand cDNcn | Kit GeneCopeia, États-Unis | QP056T | |
| TriQuick Reagent | Solarbio, Pékin, Chine | R1100 | |
| Ultra-Clean Workbench | Suzhou Purification Equipment, Chine | SW-CJ-1F ; |
Références
- Viigimaa, M., Sachinidis, A., Toumpourleka, M., Koutsampasopoulos, K., Alliksoo, S., Titma, T. Macrovascular complications of Type 2 diabetes mellitus. Curr Vasc Pharmacol. 18 (2), 110-116 (2020).
- Umanath, K., Lewis, J. B. Update on diabetic nephropathy: Core Curriculum 2018. Am J Kidney Dis. 71 (6), 884-895 (2018).
- Han, W., et al. Huangkui capsule alleviates renal tubular epithelial-mesenchymal transition in diabetic nephropathy via inhibiting NLRP3 inflammasome activation and TLR4/NF-kappaB signaling. Phytomedicine. 57, 203-214 (2019).
- Giralt-Lopez, A., et al. Revisiting experimental models of diabetic nephropathy. Int J Mol Sci. 21 (10), 3587(2020).
- Lu, Z., Zhong, Y., Liu, W., Xiang, L., Deng, Y. the efficacy and mechanism of Chinese herbal medicine on diabetic kidney disease. J Diabetes Res. 2019, 2697672(2019).
- Niu, H., et al. The therapeutic mechanism of PuRenDan for the treatment of diabetic nephropathy: Network pharmacology and experimental verification. J Ethnopharmacol. 293, 115283(2022).
- Gao, F., Wang, Z., Yang, B., Tan, J. Mechanism of Jiawei Shengjiang San in the treatment of membranous nephropathy based on network pharmacology. Pharmacology and Clinics of Chinese Materia Medica. 37 (5), 132-138 (2021).
- Li, W., Xie, M. Analysis of composing and application rule in the evolution of Shengjiang San. Journal of Beijing University of Traditional Chinese Medicine. 44 (10), 894-898 (2021).
- Zhang, Y., et al. Mechanism of Jiawei Shengjiang powder in inhibiting renal inflammation and fibrosis in diabetic rats based on TLR4/NF-kappaB and Raf/MEK pathways. Pharmacology and Clinics of Chinese Materia Medica. 38 (5), 20-27 (2022).
- Zhao, L., et al. Pharmacodynamic mechanism of Yishen Tongluo Formula in treatment of diabetic kidney disease based on network pharmacology and verification of key regulation pathway. Journal of Beijing University of Traditional Chinese Medicine. 45 (8), 824-834 (2022).
- Zhang, J., Liang, R., Wang, L., Yang, B. Effects and mechanisms of Danshen-Shanzha herb-pair for atherosclerosis treatment using network pharmacology and experimental pharmacology. J Ethnopharmacol. 229, 104-114 (2019).
- Chen, L., et al. Network pharmacology-based strategy for predicting active ingredients and potential targets of Yangxinshi tablet for treating heart failure. J Ethnopharmacol. 219, 359-368 (2018).
- Zhu, M., Qin, Y. C., Gao, C. Q., Yan, H. C., Wang, X. Q. l-Glutamate drives porcine intestinal epithelial renewal by increasing stem cell activity via upregulation of the EGFR-ERK-mTORC1 pathway. Food Funct. 11 (3), 2714-2724 (2020).
- Ding, Z., et al. Systems pharmacology reveals the mechanism of activity of Ge-Gen-Qin-Lian decoction against LPS-induced acute lung injury: A novel strategy for exploring active components and effective mechanism of TCM formulae. Pharmacol Res. 156, 104759(2020).
- Pinzi, L., Rastelli, G. Molecular docking: Shifting paradigms in drug discovery. Int J Mol Sci. 20 (18), 4331(2019).
- Kilkenny, C., Browne, W. J., Cuthill, I. C., Emerson, M., Altman, D. G. Improving bioscience research reporting: the ARRIVE guidelines for reporting animal research. PLoS Biol. 8 (6), e1000412(2010).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guides for the Care and Use of Laboratory Animals. , National Academies Press (US). Washington (DC. (2011).
- Ru, J., et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 6, 13(2014).
- Xu, X., et al. A novel chemometric method for the prediction of human oral bioavailability. Int J Mol Sci. 13 (6), 6964-6982 (2012).
- Tao, W., et al. Network pharmacology-based prediction of the active ingredients and potential targets of Chinese herbal Radix Curcumae formula for application to cardiovascular disease. J Ethnopharmacol. 145 (1), 1-10 (2013).
- Traditional Chinese Medicine and Chemical Composition databases in Chemistry Database[DB/OL]. , Available from: http://www.organchem.csdb.cn (2021).
- Halladay, C. W., Trikalinos, T. A., Schmid, I. T., Schmid, C. H., Dahabreh, I. J. Using data sources beyond PubMed has a modest impact on the results of systematic reviews of therapeutic interventions. J Clin Epidemiol. 68 (9), 1076-1084 (2015).
- Daina, A., Michielin, O., Zoete, V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness and medicinal chemistry friendliness of small molecules. Sci Rep. 7, 42717(2017).
- UniProt, C. Reorganizing the protein space at the Universal Protein Resource (UniProt). Nucleic Acids Res. 40 (D1), D71-D75 (2012).
- Stelzer, G., et al. The GeneCards Suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1-33 (2016).
- Amberger, J. S., Hamosh, A. Searching Online Mendelian Inheritance in Man (OMIM): A knowledgebase of human genes and genetic phenotypes. Curr Protoc Bioinformatics. 58, 1-12 (2017).
- Zhou, Y., et al. Therapeutic target database update 2022: facilitating drug discovery with enriched comparative data of targeted agents. Nucleic Acids Res. 50 (D1), D1398-D1407 (2022).
- Whirl-Carrillo, M., et al. Pharmacogenomics knowledge for personalized medicine. Clin Pharmacol Ther. 92 (4), 414-417 (2012).
- Law, V., et al. DrugBank 4.0: shedding new light on drug metabolism. Nucleic Acids Res. 42 (D1), D1091-D1097 (2014).
- Shannon, P., et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Xu, J., et al. Pharmacological mechanisms underlying the neuroprotective effects of Alpinia oxyphylla Miq. on Alzheimer's disease. Int J Mol Sci. 21 (6), 2071(2020).
- Tang, Y., Li, M., Wang, J., Pan, Y., Wu, F. X. CytoNCA: a cytoscape plugin for centrality analysis and evaluation of protein interaction networks. Biosystems. 127, 67-72 (2015).
- Yu, G., Wang, L. G., Han, Y., He, Q. Y. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 16 (5), 284-287 (2012).
- Trott, O., Olson, A. J. AutoDock Vina: improving the speed and accuracy of docking with a new scoring function, efficient optimization, and multithreading. J Comput Chem. 31 (2), 455-461 (2010).
- Yang, X., et al. Rational selection of the 3D structure of biomacromolecules for molecular docking studies on the mechanism of endocrine disruptor action. Chem Res Toxicol. 29 (9), 1565-1570 (2016).
- Diller, D. J., Merz, K. M. throughput docking for library design and library prioritization. Proteins. 43 (2), 113-124 (2001).
- Hsin, K. Y., Ghosh, S., Kitano, H. Combining machine learning systems and multiple docking simulation packages to improve docking prediction reliability for network pharmacology. PLoS One. 8 (12), e83922(2013).
- Godse, N. R., et al. TMEM16A/ANO1 inhibits apoptosis via downregulation of Bim expression. Clin Cancer Res. 23 (23), 7324-7332 (2017).
- Ilhan, I., et al. Irbesartan decreased mitochondrial stress-related apoptosis in cisplatin-induced acute kidney injury via regulating BCL-2/BAX signaling. Mol Biol Rep. 49 (7), 6125-6133 (2022).
- Lee, M., et al. Protective effect of hydroxysafflor yellow a on nephropathy by attenuating oxidative stress and inhibiting apoptosis in induced Type 2 diabetes in rat. Oxid Med Cell Longev. 2020, 7805393(2020).
- Schlessinger, J. Ligand-induced, receptor-mediated dimerization and activation of EGF receptor. Cell. 110 (6), 669-672 (2002).
- Gu, X., Chu, L., Kang, Y. Angiogenic factor-based signature predicts prognosis and immunotherapy response in non-small-cell lung cancer. Front Genet. 13, 894024(2022).
- Chu, L., et al. Age-related changes in endogenous glucocorticoids, gonadal steroids, endocannabinoids and their ratios in plasma and hair from the male C57BL/6 mice. Gen Comp Endocrinol. 301, 113651(2021).
- Chen, J., Chen, J. K., Harris, R. C. EGF receptor deletion in podocytes attenuates diabetic nephropathy. J Am Soc Nephrol. 26 (5), 1115-1125 (2015).
- Skibba, M., et al. New EGFR inhibitor, 453, prevents renal fibrosis in angiotensin II-stimulated mice. Eur J Pharmacol. 789, 421-430 (2016).
Réimpressions et autorisations
