本方案介绍了一种快速且有效的检测方法,通过评估恢复期血清样本抑制携带刺突糖蛋白的增强型绿色荧光蛋白标记的水疱性口炎病毒假病毒入侵的能力,来测定针对SARS-CoV-2刺突蛋白的中和抗体水平。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
随着由严重急性呼吸综合征冠状病毒2(SARS-CoV-2)引起的COVID-19大流行持续演变,中和抗体的存在可能为防止未来感染提供保护作用,这一点已变得日益明确。因此,在开发和转化有效的COVID-19疫苗以前所未有的速度推进的同时,建立快速且有效的SARS-CoV-2中和抗体检测方法,对于评估既往感染者和已接种疫苗个体的长期免疫保护效果将变得愈发重要。本文介绍了一种高通量检测方案,该方案使用携带SARS-CoV-2刺突蛋白的水疱性口炎病毒(VSV)假病毒,用于检测近期从COVID-19康复的患者恢复期血清中中和抗体的存在情况。采用可复制的假病毒系统,避免了处理SARS-CoV-2所需的生物安全三级实验室条件,从而使该方案几乎适用于任何生物安全二级实验室。本方法采用96孔板格式,可在24小时的短周期内同时处理大量样本。
引言
2019年12月,一种新型冠状病毒被发现,即我们现在所知的SARS-CoV-2,它是2019冠状病毒病(COVID-19)的致病因子1SARS-CoV-2 是一种属于β冠状病毒属的病毒 冠状病毒科 这些有包膜病毒含有较大的正链RNA基因组,可导致人类和动物的呼吸道及肠道感染。2截至2021年5月 全球报告的 COVID-19 病例已超过 1.57 亿例,死亡人数超过 320 万 百万死亡病例3开发一种有效疫苗已成为全球研究人员的首要目标,目前至少有77种 正在研究中的临床前疫苗和90 目前正在进行临床试验4.
冠状病毒编码四种结构蛋白,包括刺突蛋白(S)、核衣壳蛋白(N)、包膜蛋白(E)和膜蛋白(M)。SARS-CoV-2的入侵需要S蛋白的受体结合域(RBD)与宿主受体人血管紧张素转换酶2(hACE2)相互作用,并在宿主细胞丝氨酸蛋白酶跨膜丝氨酸蛋白酶2(TMPRSS2)的蛋白水解切割后发生膜融合5,6,7,8,9,10。既往已有报道显示SARS-CoV的S蛋白具有体液免疫优势性,目前在SARS-CoV-2中也已观察到类似现象11,12,13。事实上,在SARS-CoV感染者康复后24个月的血清中仍可检测到针对S蛋白的中和抗体反应14,凸显其在长期免疫应答中的关键作用。S蛋白已被确定为有前景的疫苗靶点,因此成为当前大多数在研疫苗的关键组分15,16。
尽管中和抗体的快速检测是疫苗研发中的关键环节,但它也可能为了解疫情高发地区的感染速率及血清流行病学监测提供重要线索17。一种携带SARS-CoV-2刺突(S)糖蛋白、取代野生型VSV糖蛋白的具有复制能力的VSV假病毒,可用于在生物安全二级(BSL-2)条件下研究SARS-CoV-2感染,该假病毒由Whelan及其同事慷慨提供18。表达刺突蛋白的VSV(VSV-S)将被用于测定针对SARS-CoV-2刺突蛋白的中和抗体反应。由于本研究所用的VSV-S同时表达增强型绿色荧光蛋白(eGFP),因此可在感染后24小时内通过检测eGFP荧光灶来定量感染程度,而噬斑形成则通常需要48至72小时。本文总结了一种简单且有效的实验方案,用于评估康复期患者血清中和VSV-S-eGFP感染的能力。该方法也可轻松改造,用于探究其他旨在阻断SARS-CoV-2刺突蛋白与宿主病毒相互作用的潜在治疗手段。
访问受限。请登录或开始试用以查看此内容。
方案
1. 铺板细胞(第1天)以生产与定量SARS-CoV-2假病毒
- 组织培养的准备工作
- 将1×杜氏磷酸盐缓冲液(DPBS)、含10%胎牛血清(FBS)和1%青霉素/链霉素(可选)的杜氏改良伊格尔培养基(DMEM)以及0.25%胰蛋白酶-乙二胺四乙酸(EDTA)置于水浴中约37 °C预热15分钟。
- 用70%乙醇对组织培养超净台进行消毒,并根据需要将组织培养皿、巴斯德吸管和血清移液管放入超净台内。将PBS、DMEM和胰蛋白酶从水浴中取出,在放入超净台前用70%乙醇消毒。
- 细胞接种与维持
- 将Vero E6细胞在含10% FBS的DMEM中培养于T75组织培养瓶或15 cm组织培养皿中,置于37 °C、5% CO2的培养箱中。当细胞融合度达到80–90%时,根据需要进行传代。
- 向每块培养皿中加入10 mL 1× PBS洗涤细胞,轻轻晃动4–5次,随后吸除PBS。向每块培养皿中加入3 mL胰蛋白酶-EDTA,轻摇培养皿确保整个表面被覆盖。将细胞在37 °C、5% CO2条件下孵育约5分钟,或直至细胞完全脱落。
- 加入7 mL含10% FBS的DMEM以终止胰蛋白酶作用,并通过反复吹打使细胞重悬。使用台式离心机在500 × g条件下离心5分钟去除胰蛋白酶,小心吸除上清液而不扰动细胞沉淀,再将细胞重悬于10 mL含10% FBS的DMEM中。若需用于后续实验,取1 mL细胞悬液接种至新培养皿中,加入15 mL新鲜含10% FBS的DMEM。
- 使用自动细胞计数仪或血球计数板对细胞进行计数,每块15 cm培养皿中接种约1 × 10⁷个细胞,于37 °C、5% CO2条件下培养至完全融合(1–2天)。
2. VSV-S-EGFP 假病毒制备
- 感染
- 在37 °C、5% CO2条件下,用12 mL无血清DMEM将VSV-S-eGFP储备病毒以0.01的感染复数(MOI)接种细胞,孵育1 h,期间偶尔轻摇培养板。弃去接种液,更换为新鲜DMEM(含2% FBS和20 mM HEPES,pH 7.7),并将细胞转移至34 °C、5% CO2的培养箱中继续培养。
注意:VSV-S-eGFP在细胞培养中扩增需要34 °C的培养温度。 - 感染后约48 h,当观察到明显的细胞病变效应(CPE)和细胞脱落时,收集细胞上清液。自感染后24 h起,可使用荧光显微镜观察感染细胞中eGFP的广泛表达。
- 在37 °C、5% CO2条件下,用12 mL无血清DMEM将VSV-S-eGFP储备病毒以0.01的感染复数(MOI)接种细胞,孵育1 h,期间偶尔轻摇培养板。弃去接种液,更换为新鲜DMEM(含2% FBS和20 mM HEPES,pH 7.7),并将细胞转移至34 °C、5% CO2的培养箱中继续培养。
- 收集
- 将上清液在4 °C下以1,000 × g离心5 min(使用台式离心机),以去除细胞碎片。分装上清液以避免反复冻融,于-80 °C保存。
3. VSV-S-eGFP 假病毒的滴定
- 通过连续稀释法测定病毒滴度
- 将Vero E6细胞以每孔6 × 10⁵个细胞的接种密度接种于6孔板中,使用含10%胎牛血清(FBS)的DMEM培养基,在37 °C、5% CO2条件下培养过夜。
注:也可使用过表达TMPRSS2和hACE2的Vero细胞。 - 在七个微量离心管中各加入900 µL无血清冷DMEM,制备VSV-S-eGFP病毒的10倍系列稀释液。将试管编号为1至7。向第1管中加入100 µL病毒原液,短暂涡旋混匀;然后从第1管转移100 µL稀释液至第2管,短暂涡旋混匀;依此类推,直至第7管。
- 吸除含Vero E6细胞的6孔板中各孔的培养基,分别加入500 µL稀释度为10-2至10-7的病毒稀释液。在37 °C、5% CO2条件下孵育45分钟,每15分钟轻轻摇动一次。
- 吸除接种液,加入覆盖层,覆盖层由2倍浓度DMEM与6%羧甲基纤维素(CMC)按1:1比例混合而成,终浓度为3% CMC,并补充10% FBS;在34 °C、5% CO2条件下孵育48小时。
注:在感染步骤期间,应将覆盖混合液在37 °C水浴中预热15分钟。可用含10% FBS的2倍浓度DMEM与1%琼脂糖按1:1比例混合的溶液替代CMC作为覆盖层。若使用琼脂糖覆盖,需将1%琼脂糖(溶于dH2O中)煮沸后与冷的2倍浓度DMEM混合。确保混合液温度适宜(约37–40 °C)后再加入细胞单层。若使用琼脂糖覆盖,则染色前必须用2 mL甲醇:冰醋酸(3:1)固定细胞,固定时间至少1小时。
- 将Vero E6细胞以每孔6 × 10⁵个细胞的接种密度接种于6孔板中,使用含10%胎牛血清(FBS)的DMEM培养基,在37 °C、5% CO2条件下培养过夜。
- 染色及病毒滴度计算
- 通过结晶紫染色或在荧光显微镜下直接观察eGFP荧光来可视化噬斑。
- 染色操作:吸除覆盖层,用PBS洗涤一次,然后向每孔加入2 mL 0.1%结晶紫溶液(溶于80%甲醇和dH2O中)。室温下置于摇床上染色约20分钟,随后去除结晶紫染液,再用dH2O或PBS轻轻冲洗每孔两次。
注:洗涤和染色步骤应轻柔操作,移液时应缓慢沿孔壁加入,以确保细胞单层在整个过程中保持完整。 - 染色后将6孔板干燥至少1小时,然后计数噬斑。应选择含有20至200个噬斑的孔进行计数。计算病毒滴度(单位为噬斑形成单位PFU/mL)时,将所计孔的稀释倍数乘以感染体积,再用该孔中的噬斑数除以该乘积。
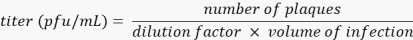
4. 铺板细胞(第1天),用于检测商品化抗体和康复期患者血清对SARS-CoV-2假病毒的中和作用
- 组织培养的准备工作
- 按照第1节所述准备培养基和组织培养操作台。此外,准备足够数量的96孔板,以容纳每个样本至少2个重复(即每6个样本使用1块板);若样本体积允许,可增加更多重复。
- 细胞接种与培养
- 按照第1节所述方法培养和维持Vero E6细胞。每块96孔板至少准备10 mL细胞悬液,细胞浓度为2 × 10⁵ 个细胞/mL(如需在48小时后进行检测,可接种1.5 × 105 个细胞/mL)。使用多通道移液器将100 µL细胞悬液加入96孔板的每个孔中,于37 °C、5% CO2条件下培养24小时。
注意:充分混匀细胞悬液,并轻轻晃动每块板,使其在各个方向上均匀分布。
- 按照第1节所述方法培养和维持Vero E6细胞。每块96孔板至少准备10 mL细胞悬液,细胞浓度为2 × 10⁵ 个细胞/mL(如需在48小时后进行检测,可接种1.5 × 105 个细胞/mL)。使用多通道移液器将100 µL细胞悬液加入96孔板的每个孔中,于37 °C、5% CO2条件下培养24小时。
5. 抗体或血清稀释与感染(第2天)
注意:本方案可用于检测商业抗体、患者血清以及用于临床前疫苗研发研究的动物血清对 VSV-S-eGFP 的中和作用。*处理患者/动物血清样本时,请注意所列的额外步骤。
- 系列稀释
- 在稀释血清样本之前,将每个样本置于56 °C水浴中加热灭活30分钟,以灭活补体。处理患者样本时应采取必要的安全防护措施;仅在组织培养罩内打开样本容器,并确保穿戴适当的生物安全二级个人防护装备。
- 在一块空的96孔板(板1)中设置稀释系列。
- 所有稀释均从96孔板的A行开始,体积为80 µL。*对于患者样本,通过将8 µL血清加入72 µL无血清DMEM(含1%青霉素/链霉素)中,起始稀释比例为1:10。
注:所用中和抗体的浓度取决于制造商预测的活性。对于本实验中使用的SARS-CoV-2刺突蛋白中和抗体(参见材料表),建议起始浓度为5 µg/mL,以观察至少50%的中和效果。 - 向B至G行各加入40 µL无血清DMEM(含1%青霉素/链霉素),向H行加入80 µL。H行不加病毒,作为仅含细胞的对照组。
- 使用12通道多通道移液器,将A行稀释后的血清或抗体混合后转移40 µL至B行,混合后依次重复操作至F行,从F行弃去40 µL。G行不加血清,作为仅含病毒的对照组。
- 感染与覆盖
- 准备适量稀释的VSV-S-eGFP,使每孔感染复数(MOI)为0.05(或2000 pfu)。(进行此计算时需注意,总共80 µL体积中仅有60 µL会转移至细胞上;因此,为保持2000 pfu的剂量,务必将病毒体积乘以1.33)。
注:由于VSV-S-eGFP对温度敏感,未使用时应始终保持病毒储备液置于冰上,避免多次冻融,否则滴度会在反复冷冻后发生变化。 - 向板1的A至G行各孔加入40 µL稀释后的病毒,并通过上下吹打4–5次混匀。将板在37 °C、5% CO2条件下孵育1小时。
- 从培养箱中取出含有细胞的板(板2),小心吸去所有孔中的培养基。将60 µL来自板1的抗体/病毒混合物转移至板2,于37 °C、5% CO2条件下孵育1小时,每20分钟轻轻摇动一次板子。
- 每孔补充140 µL含CMC的DMEM覆盖液,使CMC终浓度为3%(含10% FBS和1%青霉素/链霉素)。将板2置于34 °C、5% CO2的培养箱中孵育约24小时,然后进行成像。
注:在感染步骤期间,将覆盖液混合物在37 °C水浴中预热15分钟。
- 准备适量稀释的VSV-S-eGFP,使每孔感染复数(MOI)为0.05(或2000 pfu)。(进行此计算时需注意,总共80 µL体积中仅有60 µL会转移至细胞上;因此,为保持2000 pfu的剂量,务必将病毒体积乘以1.33)。
6. 成像与定量(第3天)
- 使用自动荧光成像仪(采用异硫氰酸荧光素(FITC)滤光片或激发波长为488 nm的其他滤光片)对培养板进行成像。通过建立一个自动识别并计数单个eGFP焦点的方案来量化病毒感染。如果无自动计数功能,可使用ImageJ软件对eGFP焦点数量进行定量分析。
访问受限。请登录或开始试用以查看此内容。
结果
本方案概述了一种通过抑制VSV-S-eGFP假病毒感染来快速有效地检测抗SARS-CoV-2 S蛋白中和抗体的方法(可通过检测eGFP焦点减少进行定量)。方案的示意图见图1。建议每次实验运行时均使用商业来源的抗体作为阳性对照,以确保实验的一致性。本文展示了针对SARS-CoV-2刺突蛋白RBD的商业中和IgG抗体与IgG对照的稀释曲线(两种抗体的详细信息见材料表;图2)。
在 SARS-CoV-2 感染后约三个月采集康复期患者样本,并采用上述方法测定假病毒中和效果(图 3)。重要的是,使用健康供体血清时观察到的背景抑制作用极低。此外,该检测方法可根据患者是否需要住院治疗,区分症状严重程度较高的患者与症状较轻的患者。与其他研究报道一致,在我们的小型队列中观察到,需要住院的患者往往比无需住院的患者表现出更强的中和能力19
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述方法可根据不同实验室环境和资源需求进行相应调整。重要的是,本方案的主要限制在于需要生物安全二级(containment level 2)实验空间和组织培养操作台。使用携带SARS-CoV-2刺突蛋白的复制型RNA病毒假病毒(如VSV-S-eGFP),是替代需要在生物安全三级(containment level 3)工作区操作的SARS-CoV-2病毒的一种有力方案,但对部分研究团队而言仍可能存在限制。此处描述的其他所有步骤均具有较高灵活性,几乎可在任何生物安全二级实验室中完成。例如,无需配备具有自动计数功能的荧光成像仪。本方案采用的96孔板格式意味着,使用最低倍物镜(2x)仅需拍摄约4个视野即可覆盖每个孔的绝大部分区域。
可使用手动荧光显微镜对每个孔中的多个视野进行成像,然后利用ImageJ(免费软件)对eGFP焦点进行定量分析。此外,我们选择采用96孔板格式,以尽可能减少血清用量并最大限度降低耗材消耗。若无荧光显微镜,本实验方案可放大至6孔或12孔板格式,通过结晶紫固定和染色后检测噬斑形成(类似于上述病毒滴定实验方案)。执行本实验方案时最关键的注意事项是VSV-S-eGF...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明本出版物无相关竞争性财务利益。
致谢
我们感谢Whelan实验室慷慨提供了本方案中使用的VSV-S-eGFP病毒(详见Case et al. 2020)。我们还感谢Bill Cameron博士和Juthaporn Cowan博士(及其团队)协助采集了患者血液样本(REB方案编号:20200371-01H)。作者声明本研究、撰写和/或发表本文获得了以下资金支持:本研究由渥太华医院基金会的慷慨资助、加拿大卫生研究院(#448323)的资助以及Thistledown基金会为C.S.I.提供的COVID-19科学快速资助(Fast Grant)共同支持。T.R.J.获得了安大略省研究生奖学金和Mitacs联合培养博士后奖学金的资助。JP获得了Mitacs联合培养博士后奖学金的资助。T.A.获得了加拿大卫生研究院(CIHR)班廷博士后奖学金的资助。我们还要感谢所有参与本研究并捐献血液样本的志愿者。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.25% 胰蛋白酶-EDTA (Gibco) | Fisher scientific | LS25200114 | |
| ArrayScan VTI HCS | Thermo Fisher Scientific | 全自动荧光成像仪 | |
| 羧甲基纤维素 | Sigma | C5678 | |
| 杜尔贝科改良伊格尔培养基 (Dulbecco's modified Eagle's medium, Gibco) | Fisher scientific | 10-013-CV | |
| 杜尔贝科改良伊格尔培养基(粉末)(Dulbecco's modified Eagle's medium, Gibco) | Thermo Fisher Scientific | 12-800-017 | |
| 杜尔贝科’s 磷酸盐缓冲液 (DPBS) | Fisher scientific | 21-031-CV | |
| HEPES | Fisher scientific | BP-310-500 | |
| IgG 同型对照(小鼠) | Thermo Fisher Scientific | 31903 | |
| 青霉素/链霉素 | Thermo Fisher Scientific | 15070063 | |
| SARS-CoV-2 (2019-nCoV) 刺突蛋白中和抗体,小鼠单克隆抗体 | SinoBiological | 40592-MM57 | |
| Vero E6 细胞 | ATCC | CRL-1586 |
参考文献
- Hu, B., Guo, H., Zhou, P., Shi, Z. L. Characteristics of SARS-CoV-2 and COVID-19. Nature Reviews Microbiology. 19 (3), 141-154 (2021).
- Burrell, C. J., Howard, C. R., Murphy, F. A. Coronaviruses. Fenner and White's Medical Virlogy. , 437-446 (2017).
- COVID-19 Map. Johns Hopkins Coronavirus Resource Center. , Available from: https://coronavirus.jhu.edu/map.html (2021).
- Zimmer, C., Corum, J., Wee, S. L. Covid-19 vaccine tracker. The New York Times. , Available from: https://www.nytimes.com/interactive/2020/science/coronavirus-vaccine-tracker.html (2021).
- Hoffmann, M., et al. SARS-CoV-2 cell entry depends on ACE2 and TMPRSS2 and is blocked by a clinically proven protease inhibitor. Cell. 181 (2), 271-280 (2020).
- Letko, M., Marzi, A., Munster, V. Functional assessment of cell entry and receptor usage for SARS-CoV-2 and other lineage B betacoronaviruses. Nature Microbiology. 5, 562-569 (2020).
- Azad, T., et al. Nanoluciferase complementation-based bioreporter reveals the importance of N-linked glycosylation of SARS-CoV-2 Spike for viral entry. Molecular Therapy. , (2021).
- Brown, E. E. F., et al. Characterization of critical determinants of ACE2-SARS CoV-2 RBD interaction. International Journal of Molecular Sciences. 22 (5), 2268(2021).
- Azad, T., et al. SARS-CoV-2 S1 NanoBiT: a Nanoluciferase complementation-based biosensor to rapidly probe SARS-CoV-2 receptor recognition. Biosensors and Bioelectronics. 180, 113122(2021).
- Azad, T., et al. Implications for SARS-CoV-2 vaccine design: Fusion of Spike glycoprotein transmembrane domain to receptor-binding domain induces trimerization. Membranes. 10 (9), 215(2020).
- Cao, Z., et al. Potent and persistent antibody responses against the receptor-binding domain of SARS-CoV spike protein in recovered patients. Virology Journal. 7, 299(2010).
- To, K. K. W. Temporal profiles of viral load in posterior oropharyngeal saliva samples and serum antibody responses during infection by SARS-CoV-2: an observational cohort study. The Lancet Infectious Diseases. 20 (5), 565-574 (2020).
- Gao, Q., et al. Development of an inactivated vaccine candidate for SARS-CoV-2. Science. 369 (6499), 77-81 (2020).
- Liu, W., et al. Two-year prospective study of the humoral immune response of patients with severe acute respiratory syndrome. Journal of Infectious Diseases. 193 (6), 792-795 (2006).
- Dong, Y., et al. A systematic review of SARS-CoV-2 vaccine candidates. Signal Transduction and Targeted Therapy. 5 (1), 237(2020).
- Amanat, F., Krammer, F. SARS-CoV-2 vaccines: Status report. Immunity. 52 (4), 583-589 (2020).
- Amanat, F., et al. A serological assay to detect SARS-CoV-2 seroconversion in humans. Nature Medicine. 26 (7), 1033-1036 (2020).
- Case, J. B., et al. Neutralizing antibody and soluble ACE2 inhibition of a replication-competent VSV-SARS-CoV-2 and a clinical isolate of SARS-CoV-2. Cell Host and Microbe. 28 (3), 475-485 (2020).
- Garcia-Beltran, W. F., et al. Journal Pre-proof COVID-19 neutralizing antibodies predict disease severity and survival. Cell. 184 (2), 476-488 (2020).
- Zeng, C., et al. Neutralizing antibody against SARS-CoV-2 spike in COVID-19 patients, health care workers, and convalescent plasma donors. JCI insight. 5 (22), (2020).
- Whitman, J. D., et al. Evaluation of SARS-CoV-2 serology assays reveals a range of test performance. Nature Biotechnology. 38 (10), 1174-1183 (2020).
- Ainsworth, M., et al. Performance characteristics of five immunoassays for SARS-CoV-2: a head-to-head benchmark comparison. The Lancet Infectious Diseases. 20 (12), 1390-1400 (2020).
- Sharifkashani, S., et al. Angiotensin-converting enzyme 2 (ACE2) receptor and SARS-CoV-2: Potential therapeutic targeting. European Journal of Pharmacology. 884, 173455(2020).
- Burki, T. Understanding variants of SARS-CoV-2. The Lancet. 397 (10273), 462(2021).
- Jayamohan, H., et al. SARS-CoV-2 pandemic: a review of molecular diagnostic tools including sample collection and commercial response with associated advantages and limitations. Analytical and Bioanalytical Chemistry. 413 (1), 49-71 (2020).
- Nie, J., et al. Quantification of SARS-CoV-2 neutralizing antibody by a pseudotyped virus-based assay. Nature Protocols. 15 (11), 3699-3715 (2020).
- Crawford, K. H. D., et al. Protocol and reagents for pseudotyping lentiviral particles with SARS-CoV-2 spike protein for neutralization assays. Viruses. 12 (5), 513(2020).
访问受限。请登录或开始试用以查看此内容。
重印与许可
