Hier presenteren we een protocol om de mitochondriale DNA-kopienummers in een runderoöcyt aanzienlijk te verminderen (P < 0,0001). Deze methode maakt gebruik van centrifugatie en bisectie om de mitochondriën van de eicel aanzienlijk te verminderen en kan een verhoogde kans op ontwikkeling mogelijk maken in de gereconstrueerde interspecies somatische celkerntransferembryo's.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Gebruik van bissectie om mitochondriaal DNA in de runderoöcyt te verminderen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Interspecies somatische celkernoverdracht (iSCNT) kan worden gebruikt om bedreigde soorten te redden, maar er bestaan twee verschillende populaties mitochondriaal DNA (mtDNA) in het gereconstrueerde embryo: één in het ontvangende ooplasma en één in de donorsomatische cel. Deze mitochondriale heteroplasmie kan leiden tot ontwikkelingsproblemen bij het embryo en de foetus. Handgemaakte kloonprotocollen omvatten eicelbissectie, die kan worden gebruikt om het mtDNA-kopienummer te verminderen, waardoor de mate van mitochondriale heteroplasmie in een gereconstrueerd embryo wordt verminderd. Centrifugatie van ontblote, volwassen runderoöcyten produceerde een zichtbare mitochondriale dichte fractie aan één pool van de eicel. De zonae pellucidae van eicellen werden verwijderd door blootstelling aan een pronase-oplossing. Bisection werd uitgevoerd met behulp van een microblade om de zichtbare mitochondriale fractie te verwijderen. qPCR werd gebruikt om het mtDNA te kwantificeren dat aanwezig is in DNA-monsters geëxtraheerd uit hele eicellen en doorsneden ooplasten, waardoor een vergelijking van mtDNA-kopienummers voor en na bisectie mogelijk werd. Kopieernummers werden berekend met behulp van cyclusdrempelwaarden, de regressielijnformule van een standaardcurve en een verhouding die de respectieve maten van mtDNA PCR-producten en genomische PCR-producten omvatte. Eén runderoöcyt had een gemiddeld mtDNA-kopienummer (± standaarddeviatie) van 137.904 ± 94.768 (n = 38). Eén mitochondria-uitgeputte ooplast had een gemiddeld mtDNA-kopienummer van 8.442 ± 13.806 (n = 33). Gemiddelde mtDNA-kopieën aanwezig in een mitochondriale rijke ooplast waren 79.390 ± 58.526 mtDNA-kopieën (n = 28). De verschillen tussen deze berekende gemiddelden geven aan dat de centrifugatie en daaropvolgende bisectie de mtDNA-kopieaantallen in de mitochondria-uitgeputte ooplast aanzienlijk kunnen verminderen in vergelijking met de oorspronkelijke oöcyt (P < 0,0001, bepaald door eenrichtings-ANOVA). De vermindering van mtDNA zou de mate van mitochondriale heteroplasmie in een gereconstrueerd embryo moeten verminderen, mogelijk ter bevordering van de standaard embryonale en foetale ontwikkeling. Suppletie met mitochondriaal extract uit de somatische donorcel kan ook essentieel zijn om een succesvolle embryonale ontwikkeling te bereiken.
Inleiding
Somatische celkernoverdracht (SCNT) omvat de fusie van een enucleated eicel van één dier en een somatische cel van een dier van dezelfde soort. In de meeste gevallen zijn de eicel en de somatische cel afkomstig van dezelfde soort en zijn de levende geboortecijfers lager dan 6%1. Sommige onderzoeken omvatten het gebruik van interspecies SCNT (iSCNT), waaronder de fusie van een somatische cel en eicel die afkomstig zijn van twee verschillende soorten. In deze studies zijn de levende geboortecijfers zelfs lager dan in SCNT - meestal minder dan 1% 1. iSCNT heeft echter de capaciteit om te worden gebruikt als een methode om bedreigde soorten te redden, omdat somatische cellen van deze dieren toegankelijker zijn dan hun geslachtscellen1. Ontvangende eicellen die in iSCNT worden gebruikt, zijn vaak binnenlandse of veel voorkomende laboratoriumsoorten, zoals koeien, varkens en muizen. Sommige pogingen die tot nu toe zijn gedaan, hebben met succes levende jongen voortgebracht, hoewel de geproduceerde nakomelingen intragenerische dieren waren (de ontvangende eicelsoorten en donorcelsoorten waren leden van hetzelfde geslacht)2,3,4. Intergenerische modellen (die gebruik maken van een eicel en somatische cel van dieren in verschillende geslachten) hebben nog geen levende dieren geproduceerd en de meerderheid van de gereconstrueerde embryo's arresteert in het 8-16 celstadium van in vitro ontwikkeling 5,6,7,8. Een mogelijke verklaring voor deze embryonale ontwikkelingsstilstand is het optreden van mitochondriale heteroplasmie in de embryo's - de aanwezigheid van meer dan één mitochondriaal DNA (mtDNA) type in een enkele cel. Heteroplasmie kan leiden tot problemen zoals ontwikkelingsinefficiëntie of falen in het embryo of bij het levende dier1. Pathogenese kan ook later in het leven van het dier optreden9. Hoewel dit probleem ook aanwezig is bij SCNT-nakomelingen, verergert de interspecifieke component binnen iSCNT-embryo's het probleem.
Wanneer het embryonale mtDNA afkomstig is van twee verschillende soorten, werken de ontvangende eicelmitochondriën, die de meerderheid vertegenwoordigen, niet efficiënt of effectief met de kern van de donorcel 1,10. Grotere taxonomische verschillen tussen de twee soorten die in iSCNT worden gebruikt, verergeren dit probleem waarschijnlijk; intragenerische levende nakomelingen geproduceerd (Bos gaurus en Bos indicus nakomelingen met Bos taurus eicellen), evenals nakomelingen geproduceerd via traditionele SCNT (bijv. Ovis aries nakomelingen met Ovis aries oocyten) bleken chimaera's te zijn (mtDNA van twee individuen was aanwezig in deze dieren 11,12,13). Toch ontwikkelden ze zich veel verder dan de intergenerische SCNT-embryo's14,15. De uitwisseling van informatie tussen de mitochondriën van de eicel en de kern van de donorcel zou succesvoller kunnen zijn in het intragenerische embryo dan in het intergenerische embryo16.
De hoeveelheid mtDNA in een volwassen runderoöcyt is ongeveer 100 keer groter dan de hoeveelheid die in één somatische cel wordt aangetroffen12. Het verminderen van deze verhouding zou de somatische celmitochondriën kunnen aanmoedigen om zich te vermenigvuldigen in het gereconstrueerde embryo, waardoor een grotere populatie productieve mitochondriën aanwezig kan zijn16. Dit zou op zijn beurt meer energie kunnen leveren om aan de behoeften van het zich ontwikkelende embryo te voldoen15. Eerdere pogingen om het mtDNA-kopienummer van de eicel of het embryo te verminderen, omvatten chemische toepassing, micromanipulatie en het aanvullen van de eicel of het embryo met extra mitochondriën van de donorcelsoort 16,17,18,19,20. Chemische toepassing (zoals 2',3'-dideoxycytidine) is echter niet ideaal voor embryonale ontwikkeling en heeft het aantal kopieën van eicellen met ongeveer de helftvan 18 verminderd. Eerdere mtDNA-reductie van oöcyten door micromanipulatie hebben slechts gemiddeld 64% van het mtDNA17 van de eicel verwijderd. Hoewel de suppletie van donorcelmitochondriën een haalbare optie zou kunnen zijn, heeft het gebruik ervan nog geen levend intergenerisch dier opgeleverd binnen iSCNT-studies21.
Het gebruik van bisection om het mtDNA-kopienummer van de eicel te verminderen, is nog niet gebruikt in gepubliceerde studies. Het doorsnijden van eicellen met de bedoeling om de ooplasten te fuseren met een somatische cel is het uitgangspunt van handgemaakt klonen (HMC), dat meestal bisectie gebruikt als methode om het polaire lichaam en de metafaseplaat uit de metafase II (MII) eicel te verwijderen. HMC heeft met succes nakomelingen geproduceerd in verschillende soorten, waaronder geiten, runderen, varkens, schapen en paarden 22,23,24,25,26, maar omvat meestal geen centrifugatiestap voorafgaand aan bisectie. Het integreren van snelle centrifugatie van de eicel maakt de isolatie van mitochondriën (en dus mtDNA) aan één pool van de eicel mogelijk, die vervolgens kan worden doorsneden met behulp van een microblade om die mitochondria-dichte fracties te verwijderen. Twee mitochondriale uitgeputte ooplasten kunnen vervolgens worden gefuseerd met een somatische cel, zoals het geval is in HMC, om een gereconstrueerd embryo te vormen dat aanzienlijk minder mtDNA van de eicelsoort bevat.
De vraag die we met dit protocol proberen te beantwoorden, is hoe mtDNA in de runderoöcyt kan worden verminderd om een levensvatbaar gereconstrueerd embryo te produceren dat minder heteroplasmatisch mtDNA bevat. In dit protocol werden eicellen gecentrifugeerd en doorsneden. Ooplast en intacte oöcyt mtDNA-kopienummers werden berekend om de effectiviteit van deze techniek te bepalen bij het verminderen van het mtDNA-kopienummer van de runderoöcyt.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Het volgende protocol volgt de richtlijnen voor dierverzorging en ethiek van de Utah State University.
1. Voorbereiding van de media
- Bereid voorafgaand aan de behandeling van de eicel de volgende oplossingen, zoals beschreven in tabel 1: 400 μL Hyaluronidase-oplossing, 500 μL T2-media, 1.020 μL T20-media en 800 μL T10-media.
- Verdeel de T10-media in twee putjes van een vierputtenplaat, 400 μL per putje. Label één put met "M" en de tweede put met "MR.". Plaats in een 5% CO2-incubator tot na de bisectie.
- Bereid 500 μL cytochalasine B (CB)/synthetische eileidervloeistof met HEPES (HSOF). Aliquot 50 μL CB/HSOF-oplossing in een aparte centrifugebuis van 1,5 ml.
- Bereid 40 μL Pronase Solution. Centrifugeer gedurende ten minste 30 s bij 2.680 x g. Meng 20 μL van het supernatant met 20 μL T2 tot een nieuwe centrifugebuis; dit vormt een verdunde pronaseoplossing van 5 mg/ml.
- Bereid 3 ml HSOF. Deponeer op een zoekplaat afzonderlijk vier druppels van 400 μL; plaats deze plaat onder een stereomicroscoop.
- Bereid 500 μL CB/T20-oplossing.
2. In vitro rijping (IVM) van runderoöcyten
- IVM: Kweek aangezogen cumulus-eicelcomplexen (COC's) bij 38,5 °C in een 5% CO2-incubator gedurende 21 uur in een viertaks schotel van rijpingsmedia met 10% FBS, 0,26 IE/ml FSH en 100 U/ml penicilline/streptomycine.
- Voer de volgende stappen uit om de eicellen te ontnuchteren.
- Verzamel het gewenste aantal VAN DE COC's met behulp van een pipet van 200 μL en deponeer ze op de bodem van een centrifugebuis van 1,5 μL.
- Voeg hetzelfde volume van 0,6 mg / ml hyaluronidase toe aan de centrifugebuis met de eicellen (d.w.z. als het volume van eicellen en IVM-media 100 μL is, voeg dan 100 μL hyaluronidase toe).
- Pipetteer de oplossing op en neer zonder bubbels te creëren, totdat alle cumuluscellen zijn verwijderd.
- Controleer de rijping van de eicellen.
- Gebruik de pipet om 200 μL HSOF uit een van de vier HSOF-druppels op de zoekplaat toe te voegen aan de eicel/hyaluronidase-oplossing.
- Breng de eicellen over van de hyaluronidase/HSOF-druppel en plaats ze in ongebruikte 400 μL HSOF-druppel. Was ze met twee extra HSOF-druppels om te helpen bij het verwijderen van hyaluronidase- en cumuluscelresten.
- Gebruik een mondpipet (of een pipet en punt van 10 μL) en een hoge microscopische vergroting en selecteer de eicellen op basis van de aanwezigheid van het polaire lichaam.
- Nadat u de eicellen hebt gesorteerd, verzamelt u het gewenste aantal MII-eicellen dat moet worden doorsneden en plaatst u ze in 400 μL HSOF-druppel.
OPMERKING: Als de eicellen langer dan 30 minuten buiten de couveuse zijn geweest, kunnen eicellen terug in een put met rijpingsmedia worden geplaatst en in een CO2-gecontroleerde incubator worden geplaatst om ten minste 30 minuten te rusten. Beperk het aantal te doorsnijden eicellen tot een hoeveelheid die haalbaar is om de doorsnijding in ongeveer 30 minuten te voltooien om de tijd buiten de incubatie te minimaliseren. Als ooplasten moeten worden gefuseerd met een somatische cel, geactiveerd en gekweekt als embryo's, moeten eicellen op dit moment worden ge-enucleeerd.
3. Centrifugatie van de eicellen
OPMERKING: Als eicellen in de couveuse in rijpingsmedia zijn geplaatst, verplaats ze dan naar de HSOF-druppel waaruit ze het meest recent zijn verzameld.
- Verzamel met behulp van een mondpipet de geselecteerde rijpe eicellen uit de HSOF-druppel en plaats ze in de buis van 1,5 ml met 50 μL van de HSOF/CB-oplossing. Centrifugeer de eicellen bij 15.000 x g gedurende 12 min.
OPMERKING: Het is niet schadelijk voor bubbels om aanwezig te zijn in de centrifugebuis. - Terwijl de eicellen worden gecentrifugeerd, bereidt u de bisectieplaat voor.
- Maak het patroon zoals aangegeven in figuur 1 op het deksel van een petrischaaltje van 60 mm (20 μL per druppel) en bedek de druppels volledig met minerale olie.
- Markeer met een dunpuntmarkering de lijnen onder de schotel, zoals weergegeven in figuur 2.
- Teken een doos rond de pronase druppel en een lijn tussen de CB/T20 druppels en de onderste rij T20 druppels.
- Bedek de schaal met een ondoorzichtig deksel totdat de centrifugatie is voltooid om osmolariteitsveranderingen van microdruppels te voorkomen.
- Zodra de centrifugatie is voltooid, gebruikt u een pipet van 200 μL om de eicellen in de oplossing te verzamelen en plaatst u ze in een leeg gedeelte van een nieuwe zoekplaat met vier HSOF-druppels van 400 μL.
- Verzamel en was de eicellen door de vier HSOF-druppels.
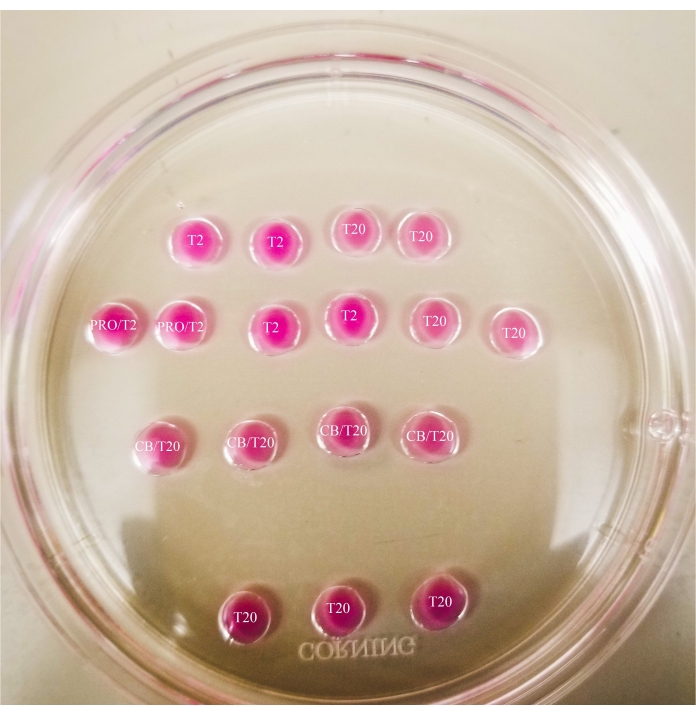
Figuur 1: Bisectieplaat. Alle getoonde druppels hebben een volume van 20 μL. De plaat heeft een diameter van 60 mm. Druppels zijn volledig bedekt met minerale olie. Eicellen worden eerst in de bovenste en meest linkse T2-druppel geplaatst (hier aangegeven met een ster). PRO/T2: 10 μL pronase en 10 μL T2, gecombineerd voordat microdruppels worden gemaakt. CB/T20: 1 μL cytochalasine B per 1 ml T20, gecombineerd voordat microdruppels worden gemaakt. Klik hier om een grotere versie van deze figuur te bekijken.
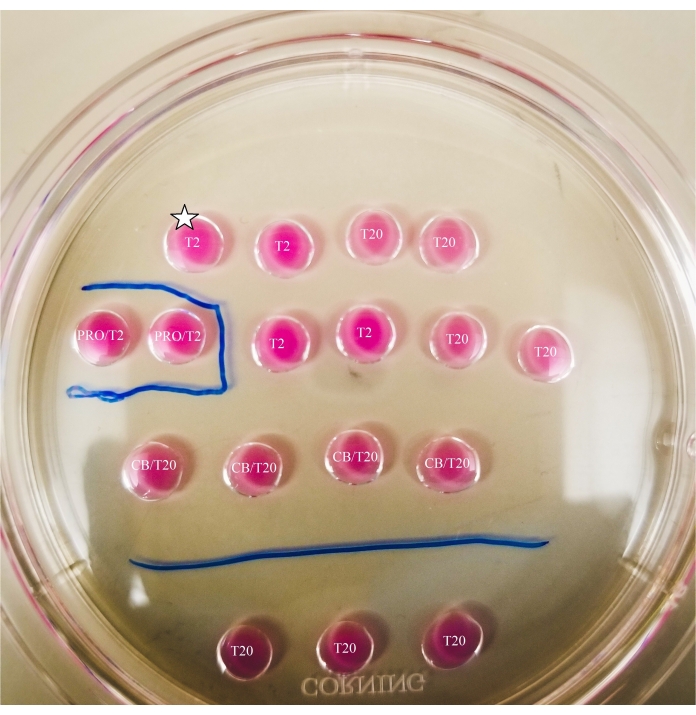
Figuur 2: Gemarkeerde bisectieplaat. Lijnen worden getekend met een dunpuntmarkering op de bodem van de plaat, om locatiereferenties te bieden voor observaties en eicel- en ooplastoverdrachten onder de microscoop. Eicellen worden eerst in de bovenste en meest linkse T2-druppel geplaatst (hier aangegeven met een ster). Klik hier om een grotere versie van deze figuur te bekijken.
4. Voorbereiding van de eicel voor bisectie
OPMERKING: Het volgende proces omvat de voorbereiding van de eicellen voor bisectie.
- Zet de verwarmingstrap aan op 37 °C.
- Gebruik een mondpipet om de gecentrifugeerde eicellen van de HSOF-druppel naar de T2-druppel linksboven van de bisectieplaat te verplaatsen en was de eicellen vervolgens door de volgende drie druppels op de bovenste rij (T2, T20, T20).
- Deponeer de eicellen in een van de pronase druppels, zodat er weinig tot geen contact tussen hen is.
OPMERKING: Het verwijderen van de zona pellucida kan verschillende hoeveelheden tijd in beslag nemen, maar vindt meestal plaats tussen 30-120 s met behulp van een verwarmingsfase. De afwezigheid van een verwarmingsfase zal deze tijd verlengen. - Observeer de eicellen totdat er een duidelijke vervorming van de zonae pellucidae is (zie figuur 3).
- Zodra een enkele eicel zona pellucida is misvormd, verplaats die eicel naar de naburige T2-druppel. Herhaal dit als extra eicellen vervormd raken, totdat alle eicellen uit de pronase zijn verwijderd en in de T2-druppel zijn geplaatst.
- Observeer de eicellen totdat er slechts een dunne laag van de zone pellucida overblijft.
- Was de eicellen door de volgende drie druppels binnen de rij (T2, T20, T20) en deponeer ze vervolgens in verticale lijnen binnen de CB/T20-druppels (zie figuur 4).
- Begin met minder eicellen in de verticale lijnen en verhoog het aantal eicellen per druppel naarmate de bisectievaardigheden vorderen.
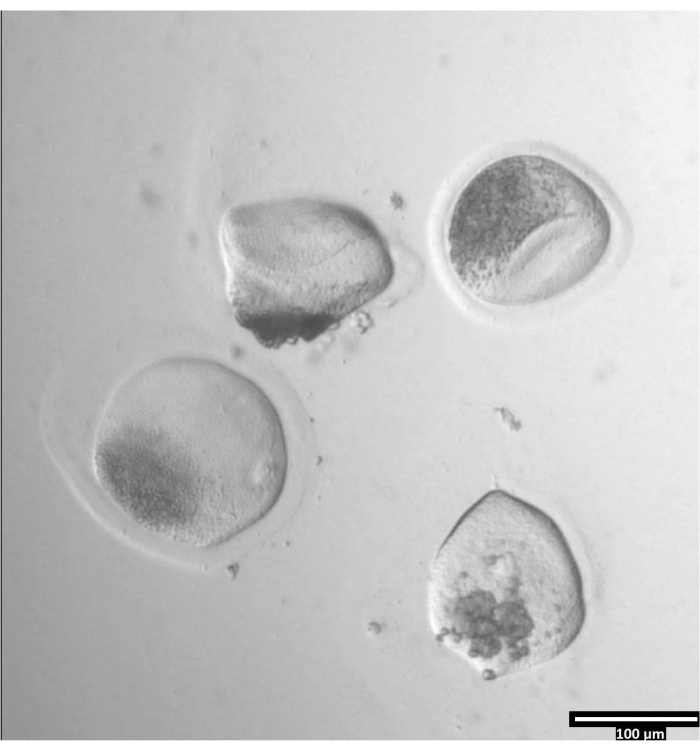
Figuur 3: Verwijdering van zona pellucida met behulp van pronase. (80x) Een eicel zona pellucida zal misvormd beginnen te lijken wanneer de pronase de zona pellucida voldoende heeft aangetast om de eicel naar de aangrenzende T2-druppel te verplaatsen. Klik hier om een grotere versie van deze figuur te bekijken.
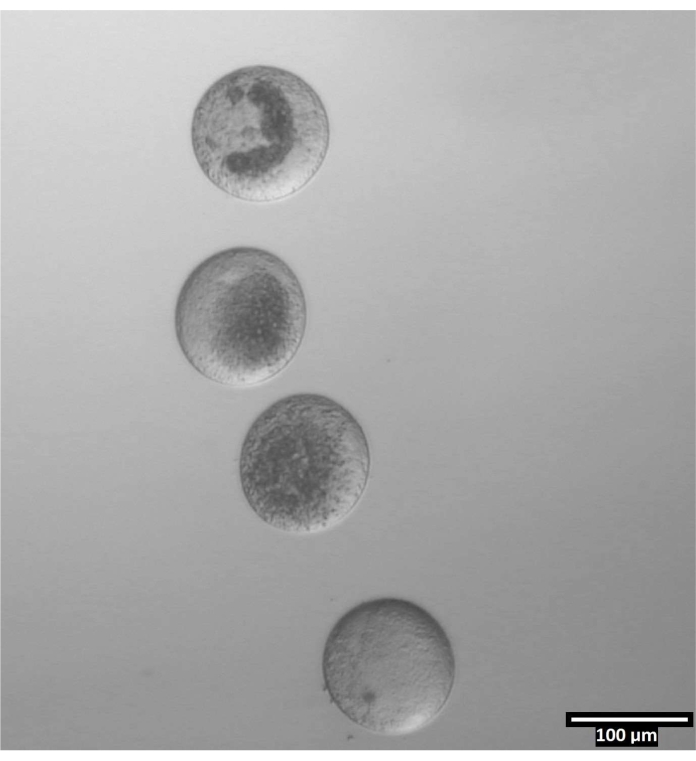
Figuur 4: Eistandoriëntatie in bisectiedruppels. (80x) Zona-vrije eicellen worden afgezet in een bijna verticale oriëntatie binnen elke CB/T20-druppel voorafgaand aan de bisectie. Klik hier om een grotere versie van deze figuur te bekijken.
5. Bisectie van de eicellen
- Concentreer op de eerste, meest linkse CB / T20 (bisectie) druppel die eicellen bevat, en gebruik een mondpipet om de eicellen te roteren, zodat het mitochondriale dichte deel van elke eicel naar of weg van de arm van de microscoop is gericht.
OPMERKING: Het mitochondriale dichte gedeelte bevat geen lipiden, die verschijnen als het donkerste deel van de eicel na centrifugatie. - Laat de punt van de microblade links van de bovenste eicel rusten, in lijn met de ruimte direct boven het mitochondriale dichte gedeelte. Houd de punt van het mes op dezelfde plaats, laat het mes voorzichtig zakken om helemaal door de eicel te snijden.
- Zorg ervoor dat de mitochondria-dichte ooplast en mitochondria-gereduceerde ooplast vergelijkbaar zijn in grootte; bisectie moet elke eicel in tweeën snijden om twee ooplasten te produceren.
OPMERKING: Vergelijkende groottes van ooplasten geproduceerd uit een enkele eicel kunnen variëren op basis van onderzoeksdoelen; als mitochondriën-gereduceerde ooplasten moeten worden gefuseerd met een somatische cel, moet hun volume groter zijn dan de mitochondriale ooplasten'. - Zorg ervoor dat het blad de eicel doorsnijdt boven het mitochondriale dichte gedeelte en onder het lipidedichte gedeelte, in het helderste segment van de gecentrifugeerde eicel.
- Zorg ervoor dat de mitochondria-dichte ooplast en mitochondria-gereduceerde ooplast vergelijkbaar zijn in grootte; bisectie moet elke eicel in tweeën snijden om twee ooplasten te produceren.
- Zorg er bij het optillen van het blad voor dat dezelfde lijn wordt gehandhaafd en dat de punt van het blad op dezelfde plaats blijft en til vervolgens de punt voorzichtig van de plaat op.
- Herhaal de bisectiestappen voor alle eicellen binnen de eerste bisectiedruppel. Als eicellen aanwezig zijn in extra druppels, oriënteer en bisect de resterende eicellen.
- Verzamel met behulp van een mondpipet mitochondria-gereduceerde ooplasten van de eerste bisectiedruppel. Plaats ze in de linker T20-druppel in de onderste rij van de plaat. Herhaal dit voor alle resterende bisectiedruppels.
OPMERKING: Mitochondria-gereduceerde ooplasten bevatten lipiden, die donkerder van kleur zijn dan de rest van de eicel. - Verzamel met behulp van een mondpipet mitochondriale ooplasten van de eerste bisectiedruppel. Plaats ze in de rechter T20-druppel in de onderste rij van de plaat. Herhaal dit voor alle resterende bisectiedruppels.
OPMERKING: Mitochondria-dichte gebieden hebben een zichtbaar conglomeraat van organellen die er lichtgrijs uitzien. - Haal de T10 vier-well schotel uit de incubator. Verplaats met behulp van een mondpipet alle mitochondria-gereduceerde ooplasten naar de put met het label "MR" en verplaats de mitochondriale ooplasten naar de put met het label "M".
- Plaats de vierputtenplaat terug in de CO2-gecontroleerde incubator. Laat ooplasten minstens 30 minuten rusten voordat ze mtDNA kwantificeren.
6. Kwantificering van mtDNA
- Gebruik een DNA-extractiekit die is ontworpen om materiaal uit een klein monster te extraheren om DNA uit individuele monsters te extraheren (enkele eicellen, enkele mitochondria-dichte ooplasten, enkele mitochondria-uitgeputte ooplasten).
- Gebruik een DNA-kwantificeringsmethode naar keuze om ervoor te zorgen dat DNA met succes uit elk monster is geëxtraheerd. Als de kwantitatieve polymerasekettingreactie (qPCR) op dat moment niet wordt voltooid, vriest u het geëxtraheerde DNA in een gelabelde buis in een vriezer van -80 °C.
- QPCR uitvoeren
- Raadpleeg tabel 2 om het volume van elk reagens te bepalen dat aan elke qPCR-buis moet worden toegevoegd, samen met de primersequenties. Deze primers zijn ontworpen om het 12S-gebied van runder mtDNA te versterken.
- Stel de initiële denaturatietijd in op 10 minuten, gevolgd door 35 cycli van: 30 s denaturatie bij 94 °C, 15 s gloeien bij 60 °C en 15 s extensie bij 72 °C. Wanneer de reactie is voltooid, registreert u de waarden van de cyclusdrempel (Ct).
OPMERKING: Om relatieve mtDNA-kopieernummerwaarden te verkrijgen, moet een standaardcurve worden geproduceerd met behulp van monsters met bekende hoeveelheden mtDNA-kopienummers, die exponentieel toenemen. De cyclusdrempelwaarden moeten vervolgens worden gemanipuleerd met behulp van de volgende formules om relatieve mtDNA-kopieernummers te bepalen. - Verkrijg de concentratie van het DNA met behulp van de onderstaande vergelijking:
Concentratie van DNA = (10(Ct-intercept/slope)) x getest volume - Verkrijg het kopienummer met behulp van de onderstaande vergelijking:
Kopienummer =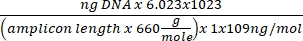
- Verkrijg het kopienummer met behulp van de onderstaande vergelijking:
Kopieernummer per cel = 2 x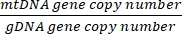
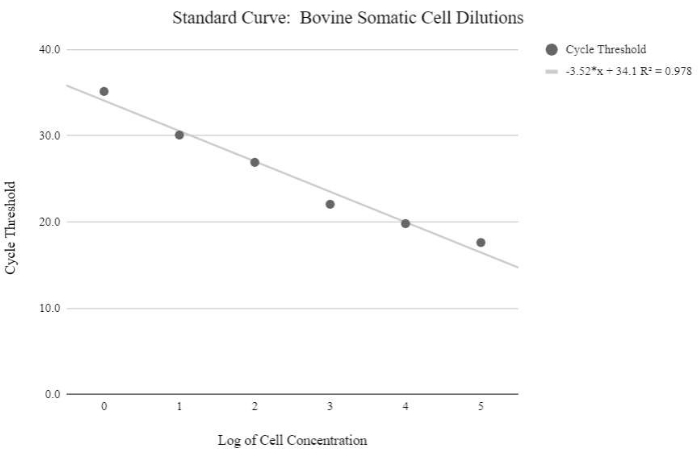
Figuur 5: Somatische cel mtDNA standaardcurve. Deze standaardcurve is tot stand gekomen door de mtDNA-kwantificering van logaritmische concentraties van boviene somatische cellen met behulp van de qPCR-reagentia en het programma zoals beschreven in protocolstap 6.3. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Kwantitatieve PCR (qPCR) resultaten worden gebruikt om de relatieve hoeveelheden mtDNA aanwezig in elke ooplast te bepalen. De beschreven reactie is ontworpen om het 12S-gebied van runder mtDNA te versterken.
Als de bisectie succesvol was, zullen de monsters van hele eicellen en mitochondriale ooplasten vergelijkbare Ct-waarden hebben. De monsters van mitochondria-gereduceerde ooplasten zullen hogere Ct-waarden hebben in vergelijking met de monsters van de andere twee gro...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Methoden die eerder werden gebruikt om het aantal mtDNA-kopieën in eicellen te verminderen, hebben hun respectieve nadelen. Micromanipulatie-gebaseerde verwijdering van mitochondriën uit eicellen vermindert mtDNA-kopieaantallen met gemiddeld 64%27. Een unieke methode, die eerder werd gebruikt voor enucleatie, omvat het gebruik van Pasteur-pipetten met een kleine diameter en het splitsen van een zona pellucida-vrije eicel op de grens tussen een microdruppel van media en de omliggende minerale olie....
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De auteurs willen hun collega's van de Utah State University, de onderzoekers van reproductive science in de San Diego Zoo en Dr. Rebecca Krisher van Genus PLC bedanken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1.5 mL centrifuge tubes | Fisher Scientific | 5408129 | |
| 60 mm dish | Sigma-Aldrich | D8054 | |
| Centrifuge | Eppendorf | 5424 | |
| Cytochalasin B | Sigma-Aldrich | C6762 | |
| Fetal Bovine Serum | Sigma-Aldrich | F2442 | |
| M199 Media | Sigma-Aldrich | M4530 | |
| Mineral Oil | Sigma-Aldrich | M8410 | |
| Mini Centrifuge | SCILOGEX | D1008 | |
| mtDNA Primer: Forward (12S) | GGGCTACATTCTCTACACCAAG | ||
| mtDNA Primer: Reverse (12S) | GTGCTTCATGGCCTAATTCAAC | ||
| NanoDrop Spectrophotometer | Thermo Scientific | ND2000 | |
| Opthalmic Scalpel with Aluminum Handle | PFM Medical | 207300633 | Microblade for bisection |
| Protease/pronase | Sigma-Aldrich | P5147 | |
| QIAamp DNA Micro Kit | Qiagen | 56304 | |
| QuantStudio™ 3 - 96-Well 0.2-mL | ThermoFisher | A28567 | |
| Search plate | Fisher Scientific | FB0875711A | |
| SYBR Green qPCR Master Mix | ThermoFisher | K0221 | qPCR master mix |
| Synthetic Oviductal Fluid with HEPES (HSOF) | |||
| ThermoPlate | Tokai Hit | TPi-SMZSSX | Heating stage |
Referenties
- Loi, P., Modlinski, J. A., Ptak, G. Interspecies somatic cell nuclear transfer: A salvage tool seeking first aid. Theriogenology. 76 (2), 217-228 (2011).
- Wani, N. A., Vettical, B. S., Hong, S. B. First cloned Bactrian camel (camelus bactrianus) calf produced by interspecies somatic cell nuclear transfer: A step towards preserving the critically endangered wild Bactrian camels. PLOS ONE. 12 (5), 0177800(2017).
- Oh, H. J., et al. Cloning endangered gray wolves (canis lupus) from somatic cells collected postmortem. Theriogenology. 70 (4), 638-647 (2008).
- Srirattana, K., et al. Full-term development of gaur-bovine interspecies somatic cell nuclear transfer embryos: Effect of trichostatin a treatment. Cellular Reprogramming. 14 (3), 248-257 (2012).
- Kwon, D. K., et al. Blastocysts derived from adult fibroblasts of a rhesus monkey (macaca mulatta) using interspecies somatic cell nuclear transfer. Zygote. 19 (3), 199-204 (2011).
- Lee, E., et al. Production of cloned sei whale (Balaenoptera borealis) embryos by interspecies somatic cell nuclear transfer using enucleated pig oocytes. Journal of Veterinary Science. 10 (4), 285(2009).
- Lorthongpanich, C., Laowtammathron, C., Chan, A. W., Kedutat-Cairns, M., Parnpai, R. Development of interspecies cloned monkey embryos reconstructed with bovine enucleated oocytes. Journal of Reproduction and Development. 54 (5), 306-313 (2008).
- Hong, S. G., et al. Production of transgenic canine embryos using interspecies somatic cell nuclear transfer. Zygote. 20 (1), 67-72 (2011).
- Stewart, J. B., Chinnery, P. F. The dynamics of mitochondrial DNA heteroplasmy: Implications for human health and disease. Nature Reviews Genetics. 16 (9), 530-542 (2015).
- Takeda, K. Mitochondrial DNA transmission and confounding mitochondrial influences in cloned cattle and pigs. Reproductive Medicine and Biology. 12 (2), 47-55 (2013).
- Lanza, R. P., et al. Cloning of an endangered species (Bos Gaurus) using interspecies nuclear transfer. Cloning. 2 (2), 79-90 (2000).
- Evans, M. J., et al. Mitochondrial DNA genotypes in nuclear transfer-derived cloned sheep. Nature Genetics. 23 (1), 90-93 (1999).
- Meirelles, F. V., et al. Complete replacement of the mitochondrial genotype in a Bos indicus calf reconstructed by nuclear transfer to a Bos taurus oocyte. Genetics. 158 (1), 351-356 (2001).
- Beyhan, Z., Iager, A. E., Cibelli, J. B. Interspecies nuclear transfer: Implications for embryonic stem cell biology. Cell Stem Cell. 1 (5), 502-512 (2007).
- Lagutina, I., Fulka, H., Lazzari, G., Galli, C. Interspecies somatic cell nuclear transfer: advancements and problems. Cellular Reprogramming. 15 (5), 374-384 (2013).
- Jiang, Y., et al. Interspecies somatic cell nuclear transfer is dependent on compatible mitochondrial DNA and reprogramming factors. PLoS ONE. 6 (4), 14805(2011).
- Chiaratti, M. R., et al. Embryo mitochondrial DNA depletion is reversed during early embryogenesis in cattle. Biology of Reproduction. 82 (1), 76-85 (2010).
- Spikings, E. C., Alderson, J., John, J. C. Regulated mitochondrial DNA replication during oocyte maturation is essential for successful porcine embryonic development. Biology of Reproduction. 76 (2), 327-335 (2007).
- Cagnone, G. L., et al. Restoration of normal embryogenesis by mitochondrial supplementation in pig oocytes exhibiting mitochondrial DNA deficiency. Scientific Reports. 6 (1), 1-15 (2016).
- Spikings, E. C., Alderson, J., John, J. C. Regulated mitochondrial DNA replication during oocyte maturation is essential for successful porcine embryonic development. Biology of Reproduction. 76 (2), 327-335 (2007).
- Ferreira, A. F., et al. Does supplementation with mitochondria improve oocyte competence? A systematic review. Reproduction. 161 (3), 269-287 (2021).
- Bhat, M. H., et al. Live birth of a pashmina goat kid after transfer of handmade cloned embryos. Journal of Reproduction and Development. , (2019).
- Tecirlioglu, R. T., et al. Birth of a cloned calf derived from a vitrified hand-made cloned embryo. Reproduction, Fertility and Development. 15 (7), 361(2003).
- Zhang, P., et al. Handmade cloned transgenic piglets expressing the nematode fat-1 gene. Cellular Reprogramming. 14 (3), 258-266 (2012).
- Zhang, P., et al. Handmade cloned transgenic sheep rich in omega-3 fatty acids. PLOS ONE. 8 (2), 55941(2013).
- Lagutina, I., et al. Somatic cell nuclear transfer in horses: Effect of oocyte morphology, embryo reconstruction method and donor cell type. Reproduction. 130 (4), 559-567 (2005).
- Chiaratti, M. R., et al. Embryo mitochondrial DNA depletion is reversed during early embryogenesis in cattle. Biology of Reproduction. 82 (1), 76-85 (2010).
- Hosseini, S. M., et al. and efficient method of manual oocyte enucleation using a pulled pasteur pipette. In Vitro Cellular and Developmental Biology - Animal. 49 (8), 569-575 (2013).
- Zampolla, T., Spikings, E., Rawson, D., Zhang, T. Cytoskeleton proteins F-actin and tubulin distribution and interaction with mitochondria in the granulosa cells surrounding stage III zebrafish (danio rerio) oocytes. Theriogenology. 76 (6), 1110-1119 (2011).
- International Union for Conservation of Nature. The IUCN Red List of Threatened Species. International Union for Conservation of Nature. , (2021).
- Berg, D. K., Li, C., Asher, G., Wells, D. N., Oback, B. Red deer cloned from antler stem cells and their differentiated progeny. Biology of Reproduction. 77 (3), 384-394 (2007).
- Gómez, M. C., et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning and Stem Cells. 6 (3), 247-258 (2004).
- Lanza, R. P., et al. Cloning of an endangered species (Bos gaurus) using interspecies nuclear transfer. Cloning. 2 (2), 79-90 (2000).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
