本方案描述了一种溶血磷脂酰胆碱的两点注射法 通过 使用立体定位仪在小鼠中建立稳定且可重复的脱髓鞘模型。
本文内容
摘要
摘要
受体介导的溶血磷脂信号通路参与多种神经系统疾病的病理生理过程,尤其是多发性硬化症(multiple sclerosis, MS)。溶血磷脂酰胆碱(lysophosphatidylcholine, LPC)是一种内源性溶血磷脂,与炎症反应相关,可快速损伤髓鞘脂质并产生毒性作用,导致局灶性脱髓鞘。本文详细介绍了一种立体定位双点LPC注射技术,通过手术方式直接在小鼠脑内诱导严重脱髓鞘,快速且稳定地建立实验性脱髓鞘损伤模型。因此,该模型与脱髓鞘疾病(特别是多发性硬化症)高度相关,有助于推动具有临床相关性的科学研究进展。此外,采用免疫荧光染色和Luxol快蓝染色方法,描绘了LPC注射后小鼠胼胝体脱髓鞘的时间进程变化。同时,利用行为学方法评估了造模后小鼠的认知功能。总体而言,溶血磷脂酰胆碱双点注射 通过 立体定位仪是一种稳定且可重复的方法,用于在小鼠中建立脱髓鞘模型,以供进一步研究。
引言
受体介导的溶血磷脂信号通路几乎参与了所有器官系统的多种生理过程1。在中枢神经系统(CNS)中,该信号通路在多发性硬化症(MS)等自身免疫性神经系统疾病的发病机制中发挥着关键作用。多发性硬化症是一种慢性免疫介导性疾病,其特征为病理性脱髓鞘和炎症反应,导致神经功能障碍和认知损害2,3。在疾病早期经历反复发作与缓解后,大多数患者最终会进展至继发进展型阶段,可能导致大脑不可逆损伤并引发残疾4。目前认为,继发进展型病程的病理学特征是由炎性病灶引起的脱髓鞘斑块5。现有的多发性硬化症治疗方法可显著降低复发风险,但对于进展型多发性硬化所导致的长期脱髓鞘损伤,仍缺乏有效的治疗手段6。因此,需要建立一种稳定且易于重复的模型,用于研究针对白质变性的临床前治疗策略。
脱髓鞘和髓鞘再生是多发性硬化症发展过程中的两个主要病理过程。脱髓鞘是指小胶质细胞在促炎表型作用下诱导轴突周围髓鞘丢失的过程7,其导致神经冲动传导减慢,并引发神经元丢失及神经系统功能障碍。髓鞘再生是一种由少突胶质细胞介导的内源性修复反应,该过程若发生障碍,可能导致神经退行性变和认知功能损害8。炎症反应在整个过程中至关重要,影响着髓鞘损伤与修复的程度。
因此,构建稳定的持续性炎症性脱髓鞘动物模型对于进一步探索多发性硬化症(MS)的治疗策略具有重要意义。由于MS的复杂性,目前已建立多种动物模型以模拟脱髓鞘病变 体内,包括实验性自身免疫性脑脊髓炎(EAE)、中毒性脱髓鞘模型、环己酮(CPZ)和溶血磷脂酰胆碱(LPC)9. LPC 是一种内源性溶血磷脂,与炎症相关,可对髓鞘脂质产生快速毒性损伤,导致局灶性脱髓鞘。根据以往的报道和研究10,11,提供了一种两点注射的详细方案并做了一些修改。通常,经典的单点LPC注射模型仅在注射部位产生局部脱髓鞘,且常伴随自发性再髓鞘化12,13然而,两点注射LPC模型可以证明LPC能够直接诱导小鼠胼胝体脱髓鞘,并导致更持久的脱髓鞘,且髓鞘再生极少。
方案
所有动物实验程序均经中国华中科技大学同济医学院动物护理委员会批准。本研究使用成年C57BL/6雄性和雌性小鼠(野生型,WT;20–25 g;8–10周龄),小鼠购自商业来源(见 材料表)。小鼠饲养于特定病原体阴性(SPF)动物实验设施中,提供水和食物 随意摄取在22 °C温度和55%-60%相对湿度的标准条件下,保持12小时光照与12小时黑暗交替的循环。
1. 溶血磷脂酰胆碱(LPC)溶液的配制
- 取25 mg LPC粉末(见材料表),加入250 µL氯仿与甲醇混合溶液(1:1),溶解配制成10%的LPC溶液,并转移至500 µL离心管中。
注意:若LPC未完全溶解,可将离心管置于超声清洗仪中,在40 kHz条件下超声处理约1小时,以获得均匀溶液。 - 将溶液分装为每管3 µL,并于−80 °C保存。
注意:该溶液可保存约2年。 - 手术前,将溶液(步骤1.2)用27 µL 0.9% NaCl溶液稀释,并置于37 °C恒温水浴中保温。
注意:应在开始注射前立即配制该溶液。
2. 手术准备
- 使用32 G、2英寸针头连接5 µL注射器(参见材料表)。确保微量注射器无堵塞。抽取5 µL LPC溶液以备注射。
- 将小鼠置于与异氟烷挥发罐相连的诱导室中进行麻醉,使用3%异氟烷与100%氧气混合,流速约为0.3 L/min。
- 通过夹捏脚趾无反射且呼吸平稳来确认麻醉深度。
- 使用 电动剃毛器剃除小鼠两耳之间的头部毛发。术中滴加润滑性眼药水,以防角膜干燥。
- 随后将小鼠背侧朝上固定于立体定位仪(参见材料表)中,用鼻模和门齿夹固定头部,并通过鼻部持续给予1.2%–1.6%异氟烷以维持麻醉。
注意:可根据小鼠的呼吸状态调整异氟烷浓度。
3. 手术步骤
注意:所有操作过程中,动物均置于加热垫上。
- 将小鼠用双侧耳杆固定于立体定位仪上。确保耳杆处于水平位置,头部保持水平且稳定。
- 对头部皮肤进行消毒 用碘伏以环形方式多次擦拭,随后用酒精擦拭。然后使用手术刀 沿头皮中线切开一个约1.5 cm的小切口,以暴露颅骨。
- 用浸有1%过氧化氢的棉签擦拭颅骨,直至前囟、后囟和枕囟暴露清晰。将注射器置于立体定位仪上。
注意:使用过氧化氢时需谨慎,避免接触周围组织。 - 确保动物头部处于水平位置(前后及左右方向)。
- 调节立体定位仪的Z轴旋钮,使针尖与颅骨刚好接触而不发生弯曲,然后测量Z轴坐标。记录前囟和后囟的Z坐标。
- 调整耳杆,使前囟和后囟的Z坐标差异不超过0.02 mm。然后采用相同方法测量中线左右两侧对应位置的Z坐标,调节耳杆以确保左右两侧处于同一水平。
- 定位胼胝体。将XYZ坐标原点设在前囟。
注意:第一个注射位点位于前囟外侧1.0 mm、深度2.4 mm、前囟前方1.1 mm处。第二个注射位点位于前囟外侧1.0 mm、深度2.1 mm、前囟前方0.6 mm处。例如,前囟的坐标为(0,0,0)。测量相应标记位置的Z坐标,记为(-1, 1.1, X)和(-1, 0.6, Y)。由此可确定胼胝体的第一个注射位点坐标为(-1, 1.1, −[X + 2.4]),第二个注射位点坐标为(-1, 0.6, −[Y + 2.1])。 - 确定注射位点后,使用无菌标记笔在颅骨上做标记,并记录坐标。
- 用颅骨钻轻轻钻开标记的部位(参见 材料表)。注意避免任何出血。
- 缓慢将针头移动至指定坐标,开始注射。为诱导胼胝体脱髓鞘,以0.4 µL/min的速度在每个注射位点(步骤3.5)注入2 µL LPC溶液(步骤1)。
- 注射后,将针头在每个注射部位保留额外10分钟。
注意:确保两次注射的间隔不超过 20 分钟。 - 用4-0缝线缝合皮肤,并在10分钟内等待动物苏醒。给予镇痛药物 根据机构的动物护理规定在术后进行。
注意:安乐死的推荐时间可根据实验目的确定。
4. 局灶性脱髓鞘样本提取
注意:有关此步骤的详细信息,请参见先前发表的报告14。
- 将中性红染料(参见材料表)溶解于磷酸盐缓冲液(PBS)中,配制成1%溶液。
- 在处死小鼠前数小时(具体细节参见先前文献10),通过腹腔注射方式,每只小鼠注射500 µL 1%的中性红染料PBS溶液。
- 用预冷至4 °C的0.1% PBS溶液进行心脏灌注12,灌注量为30 mL。
- 使用脑组织切片模具(参见材料表)将脑组织切成1 mm厚的切片。
- 在显微镜下观察经中性红染色的病灶区域,并分离病灶组织。
注意:尽可能去除周围正常组织,以提高后续分析的准确性。病灶组织可用于RT-PCR、电子显微镜和蛋白质印迹分析。
5. 组织学染色与免疫荧光
- 进行组织学染色和免疫荧光检测12时,在心脏灌注(步骤4.3)后取出脑组织10,用4%多聚甲醛(PFA)在4 °C下固定过夜,并在30%蔗糖溶液中完全脱水。
- 使用恒温冷冻切片机10(−20 °C)将脑组织切成20 mm冠状切片。
- 将切片用于Luxol快蓝(LFB)染色、免疫荧光染色以及蛋白质印迹(western blot)10。
结果
两次注射LPC可导致更持久的脱髓鞘
LPC主要引起髓鞘的快速损伤,并对轴突完整性产生毒性作用并导致其断裂15。注射当天记为第0天。小鼠饲养时间为10至28天(10 dpi和28 dpi)。采用Luxol快蓝(LFB)染色法10评估在这些时间点小鼠的脱髓鞘面积。在两次注射模型中,与假手术组相比,10 dpi时出现显著的脱髓鞘,表明LPC的局部注射可成功诱导胼胝体脱髓鞘。至28 dpi时仍存在较高程度的脱髓鞘,提示两次注射LPC可导致持续且稳定的脱髓鞘状态(图1D-E)。
为了进一步评估髓鞘的丢失情况,选择10天作为关键时间点,此时脱髓鞘现象相对明显。通过免疫荧光染色检测降解的髓鞘碱性蛋白(dMBP),在注射LPC后第10天,dMBP在注射组中显著增加(图1F),表明胼胝体区域发生了髓鞘丢失。此外,取损伤组织(步骤4)进行蛋白提取,通过Western blot分析MBP的表达水平。按照本方案建模后,MBP表达显著降低(图1G)。这些结果与LFB染色及免疫荧光染色结果一致。
注射LPC后10天,通过电子显微镜观察胼胝体中的髓鞘形态(病变组织按照步骤4提取)。明显的脱髓鞘现象证实了建模成功(图2)。
两点LPC注射影响髓鞘再生
少突胶质细胞(OLGs)的分化与成熟在多发性硬化症(MS)中修复髓鞘起着关键作用。髓鞘再生主要通过少突胶质前体细胞(OPCs)分化为具有髓鞘形成能力的少突胶质细胞来实现。因此,一旦OPCs向OLGs的分化过程受阻,髓鞘修复过程也将受到影响。Gst-π是OPC分化成熟的标志物16。在LPC注射后第10天,免疫荧光结果显示,与假手术组相比,Gst-π表达减少(图3A)。同时,少突胶质细胞的增殖能力可通过Ki67(增殖的少突胶质细胞)与Olig2(所有少突胶质细胞谱系细胞)共定位比例来反映17,18。在损伤后第10天,较高的Ki67/Olig2+共定位比例表明少突胶质细胞增殖更为活跃(图3B)。这些图像提示,在LPC注射后,病灶区域试图通过OPCs的成熟与增殖实现自我修复。
两点LPC注射损害了小鼠的空间记忆能力
为了分析LPC注射对小鼠空间记忆能力的影响,采用了莫里斯水迷宫(WMM)19进行检测,结果显示假手术组与LPC注射组小鼠的游泳速度无显著差异。然而,在莫里斯水迷宫测试中移除平台后,LPC注射小鼠找到原平台位置的潜伏期缩短(空间学习能力受损),且在目标象限停留的时间增加(记忆保持能力受损)(图4)。结果表明,在两点LPC注射模型中,脱髓鞘小鼠的空间记忆能力显著受损。不同实验所使用的小鼠数量见表1。每只小鼠分别于第2天或第20天开始接受训练。
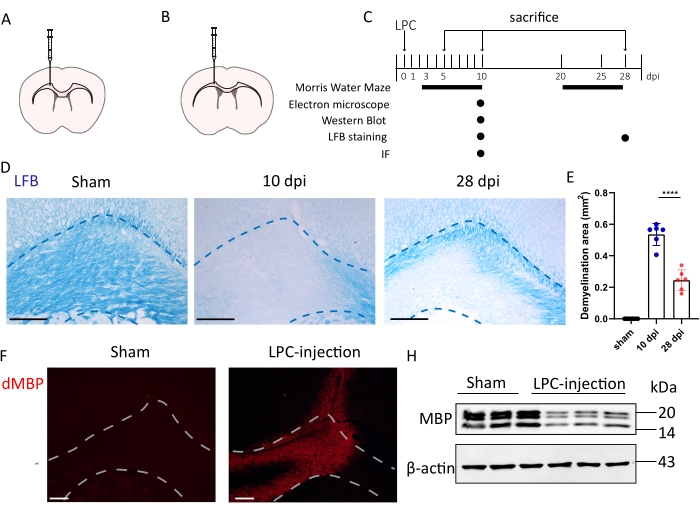
图1LPC诱导脱髓鞘的两点注射法 (A) 注射位点示意图(1.0 mm 侧向、2.4 mm 深度、1.1 mm 前向)。(B) 注射位点示意图(侧向1.0 mm,深度2.1 mm,前向0.6 mm)。C检测时间点示意图。D白质病变的检测 通过 LFB染色。注射后10天(dpi)和28 dpi的LFB染色显示胼胝体持续脱髓鞘(比例尺 = 200 µm). (E) 不同时相点脱髓鞘面积的定量分析。数据以均值 ± 标准差表示,采用单因素方差分析(one-way ANOVA)后接 Bonferroni 多重比较检验。****p < 0.0001,每组 n = 6。(F) 典型的胼胝体中dMBP免疫染色图像(比例尺 = 100 µm与假手术组几乎无dMBP相比,LPC注射后可见明显的dMBP。G) MBP表达的Western印迹分析。注射LPC后,MBP表达显著降低。以β-actin作为上样对照,用于检测基础表达水平。 请点击此处以查看此图的放大版本。
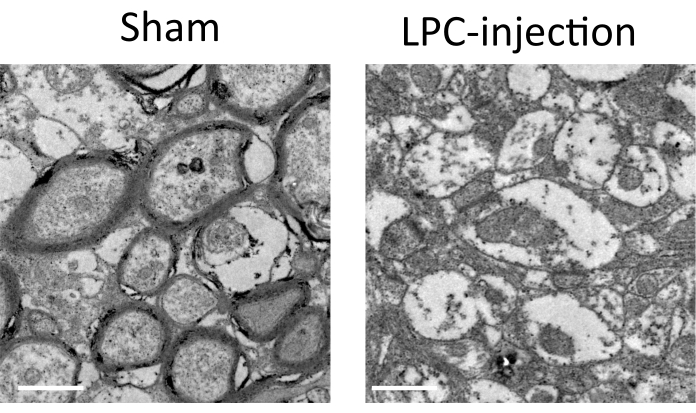
图 2:电子显微镜图像显示,与LPC注射小鼠脱髓鞘的结构相比,假手术小鼠胼胝体中存在髓鞘化的超微结构(比例尺 = 1 µm)。 请点击此处查看该图的放大版本。
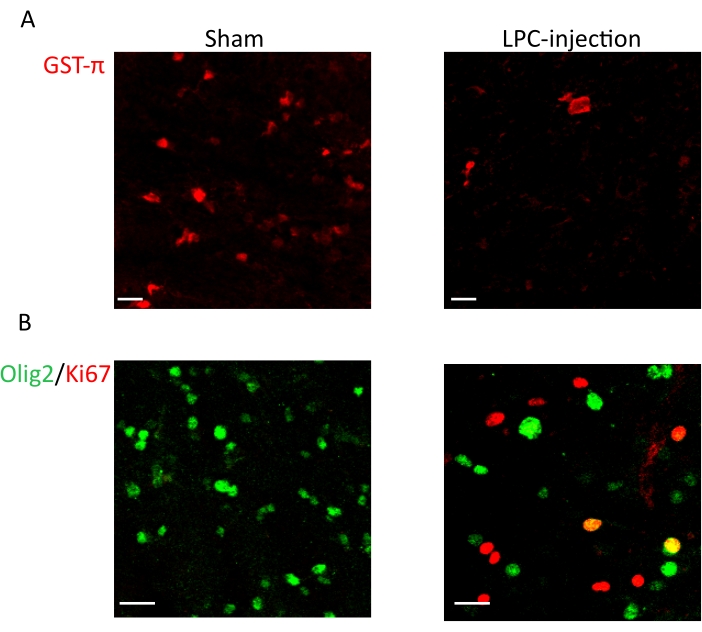
图 3:两点注射影响了少突胶质前体细胞的成熟与增殖。(A)假手术组和LPC注射小鼠胼胝体中GST-π的代表性图像(比例尺 = 20 µm)。红色代表GST-π。(B)Olig2与Ki67共定位的代表性图像(比例尺 = 20 µm)。红色代表Ki67,绿色代表Olig2。图像使用共聚焦显微镜系统,通过488 nm和594 nm激光线采集。请点击此处查看该图的放大版本。
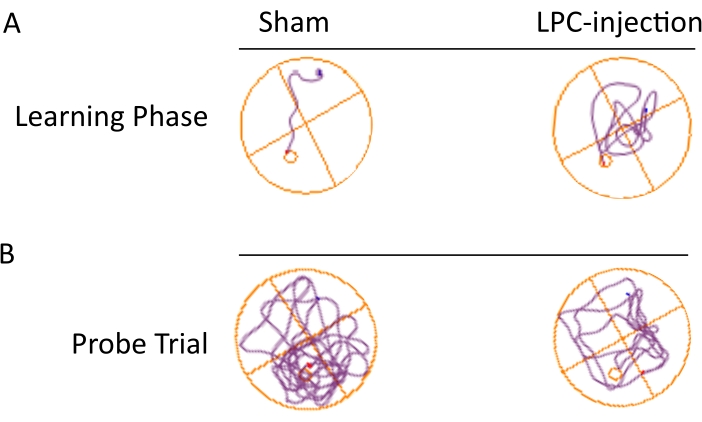
图4:LPC注射诱导的空间记忆障碍。(A)各组小鼠在平台存在时游泳路径的代表性图像(学习阶段)。(B)平台移除后各组小鼠游泳路径的代表性图像(记忆阶段)。所用动物数量见表1。请点击此处查看该图的放大版本。
| 组别 | 假手术组 | LPC组 |
| LFB染色 | 6 | 12(10 dpi, 6;28 dpi, 6) |
| 电子显微镜 | 4 | 4 |
| 免疫荧光 | 6 | 6 |
| Western Blot | 4 | 4 |
| 莫里斯水迷宫 | 12 | 12 |
表1:用于不同实验的动物数量。
讨论
多发性硬化症(MS)是一种中枢神经系统的慢性脱髓鞘疾病,是导致青壮年神经功能障碍最常见的病因之一20。临床上,约60%–80%的MS患者在发展为继发进展型MS之前,会经历反复发作与缓解的病程21,22,并随着时间推移最终导致运动功能障碍和认知缺陷的累积23。目前尚无单一的实验模型能够涵盖该疾病在临床表现、病理特征或免疫学特性上的全部多样性24。为了模拟MS在不同阶段的病理过程和发病机制,现有三种常用的脱髓鞘动物模型,各有其优势与局限性,分别为实验性自身免疫性脑脊髓炎(EAE)模型、喂饲环己亚硝脲(CPZ)动物模型以及LPC诱导的脱髓鞘模型。
在小鼠中,实验性自身免疫性脑脊髓炎(EAE)由注射髓鞘抗原后引发的免疫反应所诱导,导致小胶质细胞活化以及血管周围T和B淋巴细胞浸润,伴随的髓鞘损伤常与疾病复发相关20,25。该模型能较好地模拟多发性硬化症(MS)的复发-缓解期特征。然而,它也存在若干局限性。例如,EAE主要影响脊髓的白质,而MS则主要引起大脑皮层的脱髓鞘病变,且病变的位置和发生时间具有随机性,难以准确定位和获取病变区域19。
CPZ 和 LPC 是最常用于诱导毒性脱髓鞘模型的物质。这两种物质在给药后均可导致中枢神经系统脱髓鞘。在 CPZ 模型中,给年轻小鼠喂食铜螯合剂环己亚硝基脲(cuprizone)可引起少突胶质细胞死亡,随后发生可逆性脱髓鞘。停用环己亚硝基脲后,可在 4 天内自发启动再髓鞘化过程26,27。CPZ 主要引起广泛的脱髓鞘,而 LPC 注射则倾向于导致局灶性脱髓鞘。由于具有毒性作用并可引发炎症反应,经典的单点注射 LPC 可触发快速且高度可重复的脱髓鞘形式28。
然而,上述模型均无法充分模拟以持续性脱髓鞘为特征的进展型多发性硬化症的病理过程。因此,本方案提出一种通过两点注射溶血卵磷脂(LPC)直接注入胼胝体以诱导长期脱髓鞘的模型。方案中的关键步骤包括动物头部的水平调整以及注射坐标的定位。在步骤3.5中,必须首先调整前囟与后囟的水平,然后再调整左右两侧的水平。同时需要注意的是,在完成左右水平调整后,必须重新设定零点,方可进行后续操作。此步骤至关重要,因其直接关系到定位的准确性。在步骤3.6中,确定Z轴坐标时,必须确保针尖末端与颅骨表面完全接触,并可观察针是否发生弯曲。在步骤3.10中,针头需在原位停留10分钟,以防止药物从针道溢出。
本方案存在一些局限性。与其他毒性诱导的脱髓鞘模型一样,它未能模拟免疫学过程。其次,尽管两点注射模型能够使脱髓鞘维持相对较长的时间,但随着疾病进展到后期阶段,仍不可避免地伴随一定程度的髓鞘再生。该模型在模拟继发进展型多发性硬化方面,可能不如髓鞘少突胶质细胞糖蛋白(MOG)诱导的实验性自身免疫性脑脊髓炎模型合适29,30。经典的单点LPC注射模型仅产生局灶性炎性脱髓鞘,并伴随自发性再髓鞘化。既往研究表明,LPC注射后T细胞、B细胞和巨噬细胞的浸润是髓鞘修复的关键因素15。然而,与经典注射模型相比,两点LPC注射模型可诱导胼胝体快速出现局灶性脱髓鞘,并在较长时间内维持脱髓鞘程度,且再髓鞘化程度较低。
由于多发性硬化症(MS)的复杂性,不同的疾病阶段需要采用不同的模型来更好地描述。LPC 两点注射 通过 立体定位仪是一种稳定、高效且可重复的实验小鼠模型。该模型可导致长期脱髓鞘,并伴随随时间推移髓鞘修复减少。这意味着双点注射模型不仅可用于研究脱髓鞘疾病,还可用于研究促进髓鞘修复的干预措施。此外,该模型可通过免疫荧光和组织学方法快速、简便地评估干预后的脱髓鞘情况,而多发性硬化症(MS)的认知功能障碍可通过脱髓鞘小鼠在行为学测试中表现出的空间记忆受损得以反映。综上所述,这种稳定的脱髓鞘模型有助于开展针对多发性硬化症继发进展期及复发-缓解期的病理学和临床前研究。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到国家自然科学基金(项目编号:82071380,81873743)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| L-α-卵黄来源的溶血磷脂酰胆碱 | Sigma-Aldrich | L4129-25MG | |
| 32号针头 | HAMILTON | 7762-05 | |
| 10 μl 注射器 | HAMILTON | 80014 | |
| 高速颅骨钻 | 中国台湾,韩国 | strong204 | |
| 钻孔 | Hager & Meisinger,德国 | REF 500 104 001 001 005 | |
| Matrx 动物麻醉呼吸机 | MIDMARK | VMR | |
| 用于小鼠的便携式立体定位仪 | 奖励 | 68507 | |
| 微量注射器 | 奖励 | KDS LEGATO 130 | |
| 异氟烷 | VETEASY | ||
| 多聚甲醛 | Servicebio | G1101 | |
| 磷酸盐缓冲液 | BOSTER | PYG0021 | |
| LuxoL 快速蓝 | Servicebio | G1030-100ML | |
| 缝合 | FUSUNPHARMA | 20152021225 | |
| 脑模具 | 奖励 | 68707 | |
| 电子显微镜固定液 | Servicebio | G1102-100ML | |
| 中性红(C.I. 50040),用于显微镜检查,Certistain | Sigma-Aldrich | 1.01376 | |
| 抗髓鞘碱性蛋白抗体 | Millipore | #AB5864 | |
| 抗GST-P多克隆抗体 | MBL | #311 | |
| Ki-67 单克隆抗体(SolA15) | 赛默飞世尔科技 科学的 | 14-5698-95 | |
| β-肌动蛋白单克隆抗体 | Proteintech | 66009-1-Ig | |
| 髓鞘碱性蛋白多克隆抗体 | Proteintech | 10458-1-AP | |
| OLIG2 多克隆抗体 | Proteintech | 13999-1-AP | |
| Alexa Fluor 488 AffiniPure 驴抗兔 IgG(H+L) | YEASEN | 34206ES60 | |
| Alexa Fluor 594 AffiniPure 驴抗大鼠 IgG(H+L) | YEASEN | 34412ES60 | |
| Alexa Fluor 594 AffiniPure 驴抗兔IgG(H+L) | YEASEN | 34212ES60 | |
| HRP 标记的山羊抗兔 IgG(H+L) | abclonal | AS014 | |
| HRP 标记的山羊抗小鼠 IgG(H+L) | abclonal | AS003 | |
| 成年C57BL/6雄性和雌性小鼠 | 湖南赛诺杰生物科技有限公司 |
参考文献
- Gaire, B. P., Choi, J. W. Critical roles of lysophospholipid receptors in activation of neuroglia and their neuroinflammatory responses. International Journal of Molecular Sciences. 22 (15), 7864(2021).
- Compston, A., Coles, A. Multiple sclerosis. Lancet. 372 (9648), 1502-1517 (2008).
- Dobson, R., Giovannoni, G. Multiple sclerosis - a review. European Journal of Neurology. 26 (1), 27-40 (2019).
- Mahad, D. H., Trapp, B. D., Lassmann, H. Pathological mechanisms in progressive multiple sclerosis. The Lancet Neurology. 14 (2), 183-193 (2015).
- Filippi, M., et al. Multiple sclerosis. Nature Reviews Disease Primers. 4 (1), 43(2018).
- Villoslada, P., Steinman, L. New targets and therapeutics for neuroprotection, remyelination and repair in multiple sclerosis. Expert Opinion on Investigational Drugs. 29 (5), 443-459 (2020).
- Lassmann, H. Multiple sclerosis pathology. Cold Spring Harbor Perspectives in Medicine. 8 (3), 028936(2018).
- Franklin, R. J., Ffrench-Constant, C. Remyelination in the CNS: From biology to therapy. Nature Reviews Neuroscience. 9 (11), 839-855 (2008).
- Gentile, A., et al. Immunomodulatory effects of exercise in experimental multiple sclerosis. Frontiers in Immunology. 10, 2197(2019).
- Chen, M., et al. Deficiency of microglial Hv1 channel is associated with activation of autophagic pathway and ROS production in LPC-induced demyelination mouse model. Journal of Neuroinflammation. 17 (1), 333(2020).
- Luo, Q., et al. A stable and easily reproducible model of focal white matter demyelination. Journal of Neuroscience Methods. 307, 230-239 (2018).
- Blakemore, W. F., Franklin, R. J. Remyelination in experimental models of toxin-induced demyelination. Current Topics in Microbiology and Immunology. 318, 193-212 (2008).
- Degaonkar, M. N., Raghunathan, P., Jayasundar, R., Jagannathan, N. R. Determination of relaxation characteristics during preacute stage of lysophosphatidyl choline-induced demyelinating lesion in rat brain: An animal model of multiple sclerosis. Magnetic Resonance Imaging. 23 (1), 69-73 (2005).
- Baydyuk, M., et al. Tracking the evolution of CNS remyelinating lesion in mice with neutral red dye. Proceedings of the National Academy of Sciences of the United States of America. 116 (28), 14290-14299 (2019).
- Plemel, J. R., et al. Mechanisms of lysophosphatidylcholine-induced demyelination: A primary lipid disrupting myelinopathy. Glia. 66 (2), 327-347 (2018).
- Nave, K. A. Myelination and support of axonal integrity by glia. Nature. 468 (7321), 244-252 (2010).
- Liu, Z., et al. Induction of oligodendrocyte differentiation by Olig2 and Sox10: evidence for reciprocal interactions and dosage-dependent mechanisms. Developmental Biology. 302 (2), 683-693 (2007).
- Kassis, H., et al. Histone deacetylase expression in white matter oligodendrocytes after stroke. Neurochemistry International. 77, 17-23 (2014).
- Vorhees, C. V., Williams, M. T. Morris water maze: Procedures for assessing spatial and related forms of learning and memory. Nature Protocols. 1 (2), 848-858 (2006).
- Merkler, D., Ernsting, T., Kerschensteiner, M., Bruck, W., Stadelmann, C. A new focal EAE model of cortical demyelination: multiple sclerosis-like lesions with rapid resolution of inflammation and extensive remyelination. Brain. 129, Pt 8 1972-1983 (2006).
- Karussis, D. The diagnosis of multiple sclerosis and the various related demyelinating syndromes: A critical review. Journal of Autoimmunity. 48-49, 134-142 (2014).
- Kamma, E., Lasisi, W., Libner, C., Ng, H. S., Plemel, J. R. Central nervous system macrophages in progressive multiple sclerosis: Relationship to neurodegeneration and therapeutics. Journal of Neuroinflammation. 19 (1), 45(2022).
- Kutzelnigg, A., et al. Cortical demyelination and diffuse white matter injury in multiple sclerosis. Brain. 128, Pt 11 2705-2712 (2005).
- Lassmann, H., Bradl, M. Multiple sclerosis: Experimental models and reality). Acta Neuropathologica. 133 (2), 223-244 (2017).
- Lamport, A. C., Chedrawe, M., Nichols, M., Robertson, G. S. Experimental autoimmune encephalomyelitis accelerates remyelination after lysophosphatidylcholine-induced demyelination in the corpus callosum. Journal of Neuroimmunology. 334, 576995(2019).
- Torkildsen, O., Brunborg, L. A., Myhr, K. M., Bo, L. The cuprizone model for demyelination. Acta Neurologica Scandinavica. Supplementum. 188, 72-76 (2008).
- Zhan, J., et al. The cuprizone model: Dos and do nots. Cells. 9 (4), 843(2020).
- Torre-Fuentes, L., et al. Experimental models of demyelination and remyelination. Neurologia (Barcelona, Spain). 35 (1), 32-39 (2020).
- Merkler, D., et al. Myelin oligodendrocyte glycoprotein-induced experimental autoimmune encephalomyelitis in the common marmoset reflects the immunopathology of pattern II multiple sclerosis lesions. Multiple Sclerosis Journal. 12 (4), 369-374 (2006).
- Ucal, M., et al. Widespread cortical demyelination of both hemispheres can be induced by injection of pro-inflammatory cytokines via an implanted catheter in the cortex of MOG-immunized rats. Experimental Neurology. 294, 32-44 (2017).
重印与许可
