Das Protokoll zielt darauf ab, eine Standardmethode für die Vitrifikation von erwachsenen und juvenilen Schafe eizellen bereitzustellen. Es umfasst alle Schritte von der Herstellung der In-vitro-Reifemedien bis zur Nacherwärmungskultur. Eizellen werden im MII-Stadium mit Cryotop vitrifiziert, um das minimale essentielle Volumen zu gewährleisten.
Methodenartikel
Vitrifikation von in vitro gereiften Eizellen, die aus adulten und präpubertären Eierstöcken bei Schafen entnommen wurden
In diesem Artikel
Zusammenfassung
Zusammenfassung
In der Tierhaltung können In-vitro-Embryoproduktionssysteme dank der großen Anzahl von Eierstöcken und Eizellen, die leicht aus einem Schlachthof gewonnen werden können, entwickelt und aufrechterhalten werden. Erwachsene Eierstöcke tragen immer mehrere Antralfollikel, während bei präpubertären Spenderinnen die maximale Anzahl von Eizellen im Alter von 4 Wochen verfügbar ist, wenn eierstöcke Spitzenzahlen von Antralfollikeln tragen. So gelten 4 Wochen alte Lämmer als gute Spenderinnen, auch wenn die Entwicklungskompetenz präpubertärer Eizellen im Vergleich zu ihrem erwachsenen Pendant geringer ist.
Grundlagenforschung und kommerzielle Anwendungen würden durch die Möglichkeit der erfolgreichen Kryokonservierung von vitrifizierten Eizellen gefördert, die sowohl von erwachsenen als auch von präpubertären Spenderinnen gewonnen wurden. Die Vitrifikation von Eizellen, die von präpubertären Spenderinnen gesammelt wurden, würde auch eine Verkürzung des Erzeugungsintervalls und damit eine Erhöhung des genetischen Gewinns in Zuchtprogrammen ermöglichen. Der Verlust des Entwicklungspotenzials nach der Kryokonservierung macht Säugetier-Eizellen jedoch wahrscheinlich zu einem der am schwierigsten zu kryokonservierenden Zelltypen. Unter den verfügbaren Kryokonservierungstechniken wird die Vitrifikation häufig auf tierische und menschliche Eizellen angewendet. Trotz der jüngsten Fortschritte in der Technik induzieren Expositionen gegenüber hohen Konzentrationen von Kryoprotektoren sowie kühlen Verletzungen und osmotischem Stress immer noch mehrere strukturelle und molekulare Veränderungen und reduzieren das Entwicklungspotenzial von Eizellen von Säugetieren. Hier beschreiben wir ein Protokoll für die Vitrifikation von Schafseigzellen, die von juvenilen und erwachsenen Spenderinnen entnommen und vor der Kryokonservierung in vitro gereift sind. Das Protokoll umfasst alle Verfahren von der In-vitro-Reifung der Eizellen bis zur Vitrifikation, Erwärmung und Inkubationszeit nach der Erwärmung. Eizellen, die im MII-Stadium verglast wurden, können zwar nach der Erwärmung befruchtet werden, benötigen jedoch vor der Befruchtung zusätzliche Zeit, um Schäden durch Kryokonservierungsverfahren wiederherzustellen und ihr Entwicklungspotenzial zu erhöhen. Daher sind die Kulturbedingungen und der Zeitpunkt nach der Erwärmung entscheidende Schritte für die Wiederherstellung des Entwicklungspotenzials der Eizellen, insbesondere wenn Eizellen von juvenilen Spenderinnen entnommen werden.
Einleitung
Die Langzeitlagerung der weiblichen Gameten kann eine breite Palette von Anwendungen bieten, wie z. B. die Verbesserung der Haustierzucht durch genetische Selektionsprogramme, den Beitrag zur Erhaltung der Biologischen Vielfalt durch das Ex-situ-Programm zum Schutz von Wildtierarten und die Förderung der Forschung und Anwendungen in der In-vitro-Biotechnologie dank der Verfügbarkeit von gelagerten Eizellen, die in die In-vitro-Embryonenproduktion oder Kerntransplantationsprogramme integriert werden können1,2,3. Die Vitrifikation juveniler Eizellen würde auch den genetischen Gewinn erhöhen, indem das Erzeugungsintervall in Zuchtprogrammen verkürzt wird4. Die Vitrifikation durch ultraschnelles Abkühlen und Erwärmen von Eizellen gilt derzeit als Standardansatz für die Kryokonservierung von Tierinnen5. Bei Wiederkäuern werden Eizellen vor der Vitrifikation in der Regel in vitro gereift, nachdem sie aus Follikeln gewonnen wurden, die aus Schlachthof-Eierstöcken gewonnen wurden2. Erwachsene und insbesondere präpubertäre Eierstöcke4,6, können in der Tat eine praktisch unbegrenzte Anzahl von Eizellen liefern, die kryokonserviert werden sollen.
Bei Rindern wurden nach Vitrifizierung und Erwärmung der Eizellen Blastozystenerträge von >10% in den letzten zehn Jahren häufig von mehreren Labors berichtet3. Bei kleinen Wiederkäuern gilt die Vitrifikation der Eizellen jedoch sowohl für juvenile als auch für erwachsene Eizellen noch als relativ neu, und eine Standardmethode für die Vitrifikation von Schaf-Eizellen muss noch festgelegt werden2,5. Trotz jüngster Fortschritte zeigt die vitrifizierte und erwärmte Eizelle tatsächlich mehrere funktionelle und strukturelle Veränderungen, die ihr Entwicklungspotenzial einschränken7,8,9. Daher haben nur wenige Artikel über eine Blastozystenentwicklung von 10% oder mehr in vitrifizierten/ erwärmten Schafse eizellenberichtet 2. Es wurden mehrere Ansätze untersucht, um die oben genannten Veränderungen zu reduzieren: Optimierung der Zusammensetzung der Vitrifikations- und Auftaulösungen10,11; Experimentieren mit der Verwendung verschiedener Kryo-Geräte8,12,13; und Anwendung spezifischer Behandlungen während der In-vitro-Reifung (IVM)4,14,15 und/oder während der Erholungszeit nach dem Erwärmen6.
Hier beschreiben wir ein Protokoll für die Vitrifikation von Schafseigen, die von juvenilen und erwachsenen Spenderinnen gesammelt und vor der Kryokonservierung in vitro gereift sind. Das Protokoll umfasst alle Verfahren von der In-vitro-Reifung der Eizellen bis zur Vitrifikation, Erwärmung und Kulturperiode nach der Erwärmung.
Protokoll
Das Tierprotokoll und die unten beschriebenen implementierten Verfahren entsprechen den an der Universität Sassari geltenden ethischen Richtlinien, der Richtlinie 86/609/EG der Europäischen Union und der Empfehlung der Kommission der Europäischen Gemeinschaften 2007/526/EG.
1. Vorbereitung von Medien zur Eizellmanipulation
- Bereiten Sie das Medium für den Transport der gesammelten Eierstöcke vor, indem Sie die phosphatgepufferte Kochsalzlösung von Dulbecco mit 0,1 g / L Penicillin und 0,1 g / L Streptomycin (PBS) ergänzen.
- Bereiten Sie das Medium für die Eizellentnahme und -reifung vor, indem Sie 9,5 g Tissue Culture Medium (TCM) 199 in Pulver mit 1 L Milli-Q-Wasser, ergänzt mit Penicillin (0,1%) und Streptomycin (0,1%).
- Nach der Verdünnung 100 ml Medium filtern und bei 4 °C als Stock Maturation Medium (SMM) lagern, um es für eine Woche zu verwenden.
- Bereiten Sie das Auffangmedium (CM) vor, indem Sie die restlichen 900 ml mit 25 mM HEPES, 0,36 g/L Bicarbonat und 0,1 % (w/v) Polyvinylalkohol (PVA) (pH 7,3, Osmolalität 290 mOsm/kg) ergänzen.
- Bereiten Sie das Reifemedium mit SMM vor, das mit 0,021 g/L Bicarbonat, 10% wärmebehandeltem Östrusschafserum, 1 IE/ml FSH, 1 IE/ml LH, 100 μL Cysteamin und 8 mg/ml Pyruvat ergänzt wird.
HINWEIS: Das Reifemedium in einem Volumen von 10 ml muss vor Gebrauch mindestens 4 h lang unter Standardbedingungen (in einer maximal befeuchteten Atmosphäre bei 39 °C in 5% CO2 in Luft) inkubiert werden. - Bereiten Sie das Basismedium (BM) für die Manipulation der Eizelle nach der In-vitro-Reifung vor, bestehend aus PBS ohne Ca++ und Mg++,ergänzt mit 20% fetalem Kalbserum (FCS).
2. Eizellentnahme und Reifung
- Erholen Sie die Eizellen von juvenilen (30-40 Tage Alter, Körpergewicht 6-10 kg) und erwachsenen Eierstöcken.
- Transport der gesammelten Eierstöcke vom kommerziellen Schlachthof zum Labor innerhalb von 1-2 h in PBS bei 27 °C.
- Nach dem Waschen in PBS frischem Medium die Eierstöcke in CM mit einer Mikroklinge in Scheiben schneiden, um den Follikelgehalt freizusetzen.
- Wählen Sie im Rahmen einer Stereomikroskopuntersuchung mit 60-facher Vergrößerung Cumulus-Oozyten-Komplexe (COCs) für die In-vitro-Reifung aus, indem Sie diejenigen mit 4-10 Schichten von Granulosazellen, Eizellen mit einem gleichmäßigen Zytoplasma, homogener Verteilung der Lipidtröpfchen im Zytoplasma und mit einem Außendurchmesser von etwa 90 μm (Mittelwert) auswählen.
- Waschen Sie die ausgewählten COCs dreimal in CM und übertragen Sie sie schließlich in das Reifemedium.
HINWEIS: Für juvenile Eizellen, um das Überleben nach der Vitrifikation zu verbessern, ergänzen Sie das Reifemedium mit 100 μM Trehalose. - Für die In-vitro-Reifung werden 30-35 COCs in 600 μL Reifemedium in Petrischalen mit vier Wellen übertragen, die mit 300 μL Mineralöl bedeckt sind, und sie für 22 (adulte Eizellen)/24 (juvenile Eizellen) h in 5% CO2 in Luft bei 39 °C inkubieren.
- Nach der In-vitro-Reifung COCs von Kumuluszellen durch sanftes Pipettieren entwenden. Nach der Untersuchung mit einem Stereomikroskop mit 60-facher Vergrößerung wählen Sie nur diejenigen aus, die die Extrusion am ersten Polkörper und damit in der Metaphase II (MII) -Stufe zeigen, um die Vitrifikation zu erhalten.
3. Samenentnahme, Einfrieren und Auftauen
- Bereiten Sie das Basismedium für die Kryokonservierung von Samen vor, bestehend aus Ram Extender (200 mM Tris; 70 mM Zitronensäure; 55 mM Fruktose; pH 7,2, Osmolalität 300 mOsm/kg) ergänzt mit Eigelb 20% (v/v).
- Sammeln Sie den Samen nur während der Schafzuchtsaison (Oktober-November).
- Erhalten Sie Ejakulate durch künstliche Vagina von erwachsenen Widdern (im Alter von 2-5 Jahren), die in einer Außenumgebung gehalten und mit einer Erhaltungsration mit Lebendgewicht gefüttert werden. Halten Sie Widder isoliert in separaten Stiften, aber mit Sichtkontakt untereinander.
- Wiederholen Sie die Samenentnahme einmal pro Woche während der gesamten Brutzeit, um mindestens 8 Ejakulate von jedem Männchen zu erhalten.
- Transportieren Sie die Samenproben innerhalb von 5 minuten nach der Entnahme bei Umgebungstemperatur ins Labor und verarbeiten Sie sie sofort. Bündeln Sie die Ejakulate von zwei bis drei Widdern und bewerten Sie die Spermienkonzentrationsspektrophotometrie.
- Nach dem Pooling die Ejakulate auf 400 x 106 Spermatozoen/ml mit Basismedium für die Samen-Kryokonservierung mit 4% Glycerin ergänzen. Anschließend den verdünnten Samen über einen Zeitraum von 2 h auf 4 °C abkühlen und vor dem Einfrieren 20 min ausgleichen.
- Die Samenproben in Pelletform (0,25 ml) auf Trockeneis einfrieren und dann in flüssigen Stickstoff tauchen.
- Zum Auftauen das Pellet in einen sterilisierten Glasfalken geben und für 20 s bei 39 °C in ein Wasserbad tauchen.
4. In-vitro-Fertilisation und Embryokultur
- Bereiten Sie die Vorräte für die Konstitution der synthetischen Eileiterflüssigkeit (SOF) vor.
- Bereiten Sie Stock A vor: 99,4 ml MilliQ-Wasser; 6,29 g NaCl; 0,534 g KCl; 0,161 g KH2PO4; 0,182 gMgSO4 ·7H2 O; und 0,6 ml Natriumlactat. Bis zu 3 Monate bei 4 °C aufbewahren.
- Bereiten Sie Stock B vor: 10 ml MilliQ-Wasser; 0,210 g NaHCO3; und 2-3 g Phenolrot. 1 Monat bei 4 °C aufbewahren.
- Bereiten Sie Brühe C vor: 10 ml MilliQ-Wasser; und 0,051 g Natriumpyruvat. 1 Monat bei 4 °C aufbewahren.
- Bereiten Sie Brühe D vor: 10 ml MilliQ-Wasser; und 0,262 g CaCl2 2H2O. 1 Monat bei 4 °C aufbewahren.
- Bereiten Sie 10 ml SOF vor, bestehend aus 7,630 ml MilliQ-Wasser, 1 ml Schaft A, 1 ml Schaft B, 0,07 ml Schaft C und 0,7 ml Stamm D.
- Vorbereitung der In-vitro-Fertilisation (IVF): SOF ergänzt mit 2% wärmebehandeltem östrous Schafserum, 10 μg/ml Heparin und 1 μg/ml Hypoutarin (Osmolalität 280-290 mOsm/kg).
HINWEIS: Das IVF-Medium in einem Volumen von 10 ml muss unter Standardbedingungen (in einer maximal befeuchteten Atmosphäre bei 39 °C in 5%CO2,5% O2 und 90% N2) mindestens 4 h vor Gebrauch inkubiert werden.
- Übertragen Sie gefrorene/aufgetaute Samen aliquots in ein sterilisiertes konisches Glasrohr unter 1,5 ml erwärmtem IVF-Medium und inkubieren Sie sie für 15 min bei 39 °C in einer befeuchteten Atmosphäre mit 5% CO2 in der Luft.
- Nach der Inkubation schwimmen die beweglichen Spermatozoen in Richtung des apikalen Teils der Flüssigkeitssäule. Sammeln Sie die oberste Schicht und beobachten Sie die Beurteilung der Spermienmotilität.
HINWEIS: Die Parameter der Spermienmotilität sollten mit einem computergestützten Spermienanalysesystem (CASA) mit den folgenden Einstellungen bewertet werden: 25 Frames, die zur Vermeidung von Überlappungen der Spermienspur erworben wurden, Mindestkontrast 10, Mindestgeschwindigkeit des durchschnittlichen Pfades 30 μm / s und progressive Motilität > 80% Geradheit. Dieses System verfügt über ein spezifisches Setup für die Bewertung von Widderspermien. Für jede Probe werden 5 μL Teilprobe spermiensuspension in eine vorgewärmte Analysekammer mit einer Tiefe von 10 μm geladen. Die Spermienmotilität wird bei 37 °C bei 40x mit einem Phasenkontrastmikroskop beurteilt und mindestens 500 Spermien pro Teilstichprobe sollten in mindestens vier verschiedenen mikroskopischen Feldern analysiert werden. Der Prozentsatz der gesamten beweglichen und progressiven beweglichen Spermien wurde bewertet. Für die IVF sollte der Prozentsatz der progressiven beweglichen Spermatozoen ≥ 30% betragen. - Verdünnen Sie aus Swim-up gewonnene bewegliche Spermatozoen bei 1 x10 6 Spermatozoen / ml Endkonzentration und koinubieren Sie sie mit MII-Eizellen in 300 μL IVF-Medium, das mit Mineralöl in Vier-Well-Petrischalen bedeckt ist.
- Nach 22 h übertragen Sie die mutmaßlichen Zygoten in Vier-Well-Petrischalen, die SOF enthalten, ergänzt mit 0,4% Rinderserumalbumin und essentiellen und nicht essentiellen Aminosäuren in eileiterhaltiger Konzentration, wie von16 unter Mineralöl berichtet, und kultivieren sie unter Standardbedingungen bis zum Blastozystenstadium.
- Erfassen Sie bei 22-, 26- und 32-h nach der Insemination die Anzahl der gespaltenen Eizellen, die zwei verschiedene Blastomere aufweisen, durch die Untersuchung unter einem Stereomikroskop mit 60-facher Vergrößerung.
- Beobachten Sie die Embryonen täglich ab dem fünften bis zum neunten Kulturtag und neu gebildete Blastozysten sollten durch die Untersuchung unter einem Stereomikroskop mit 60-facher Vergrößerung aufgezeichnet werden.
5. Vitrifikation und Erwärmung der Eizellen
HINWEIS: Führen Sie die Vitrifikation nach der Methode des minimalen essentiellen Volumens (MEV) mit Gerätekrütomoten17 durch.
- Eine Gruppe von fünf Eizellen bei 38,5 °C für 2 min in BM ausgleichen. Die Verwendung von BM garantiert eine niedrige Calciumkonzentration ([Ca2++]2,2 mg/dl)10.
- Dehydrieren Sie die Eizellen mit einer 3-minütigen Exposition gegenüber Gleichgewichtslösung, die 7,5% (v/v) Dimethylsulfoxid (DMSO) und 7,5% (v/v) Ethylenglykol (EG) in BM enthält.
- Die Eizellen werden in die Vitrifikationslösung mit 16,5% (v/v) DMSO, 16,5% (v/v) EG und 0,5 M Trehalose in BM überführen, bevor sie in ein Kryotopgerät geladen und innerhalb von 30 s direkt in flüssigen Stickstoff gestürzt werden.
- Um sich auf eine biologische Temperatur zu erwärmen, den Inhalt jeder Vitrifikationsvorrichtung aus flüssigem Stickstoff in 200 μL Tropfen von 1,25 M Trehalose in BM für 1 min bei 38,5 °C geben und vorsichtig umrühren, um das Mischen zu erleichtern.
- Um die Entfernung intrazellulärer Kryoprotektoren zu fördern, werden die Eizellen schrittweise in 200 μL Tropfen abnehmender Trehaloselösungen (0,5 M, 0,25 M, 0,125 M Trehalose in BM) für 30 s bei 38,5 °C übertragen, bevor sie für 10 min bei 38,5 °C in BM ausgeglichen werden.
6. Beurteilung der Eizellqualität nach der Erwärmung
- Nach der Erwärmung die Eizellen für 6 h in PBS ohneCa++ undMg++ plus 20% FCS (BM) in 5% CO2 in Luft bei 38,5 °C inkubieren.
HINWEIS: Die Fähigkeit der Eizelle, biologische und strukturelle Merkmale nach der Vitrifikation wiederherzustellen, steht in Bezug auf die Arten und Klassen der verwendeten Eizellen. - Da die Fähigkeit der Eizelle, Kryokonservierungsschäden wiederherzustellen, zeitabhängig ist, beurteilen Sie die Eizellqualität zu verschiedenen Zeitpunkten der In-vitro-Kultur (0 h, 2 h, 4 h, 6 h) nach der Erwärmung, um das optimale Zeitfenster für die Befruchtung der Eizellen zu definieren.
HINWEIS: Bei erwachsenen Schafseigen ist die optimale Zeit 4 h nach der Erwärmung; für präpubertäre Eizellen ist der optimale Zeitpunkt 2 h nach der Erwärmung.
7. Beurteilung des Überlebens der Eizellen
- Unmittelbar nach der Erwärmung und für jeden Zeitpunkt der Nacherwärmungskultur werden die Eizellen morphologisch mit einem invertierten Mikroskop mit 100-facher Vergrößerung bewertet.
HINWEIS: Eizellen mit strukturellen Veränderungen wie schwachem Zytoplasma, Schädigung der Zona pellucida und/oder Membran sollten als degeneriert eingestuft werden. - Validieren Sie die Bewertung der Membranintegrität mit einer doppelten differentiellen Fluoreszenzfärbung.
- Inkubieren Sie die Eizellen in 2 ml BM, die Propidiiumiodid (PI; 10 μg/ml) und Hoechst 33342 (10 μg/ml) enthalten, für 5 min in 5% CO2 in Luft bei 38,5 °C.
- Nach dreimaliger Wäsche in frischem BM beobachten Sie die Eizellen unter einem Fluoreszenzmikroskop mit einem Anregungsfilter von 350 nm und einer Emission von 460 nm für Hoechst 33342 und einem Anregungsfilter von 535 nm und einer Emission von 617 nm für PI.
HINWEIS: Eizellen mit intakter Membran sind an der blauen Fluoreszenz farbiger DNA mit Hoechst 33342 zu erkennen. Eizellen mit beschädigten Membranen zeigen eine rote Fluoreszenz aufgrund von DNA-Färbung mit PI.
8. Bewertung der mitochondrialen Aktivität und der intrazellulären ROS-Spiegel durch konfokale Laser-Scanning-Mikroskopie
- Bereiten Sie die MitoTracker Red CM-H2XRos (MT-Red) Sonde vor.
- Verdünnen Sie den Inhalt von 1 Durchstechflasche (50 μg) mit 1 ml DMSO, um eine 1 mM Lösung zu erhalten. Bewahren Sie die verdünnte Durchstechflasche in flüssigem Stickstoff auf.
- Verdünnen Sie die Lösung 1 mM mit DMSO, um die 100 μM Stammlösung zu erhalten, und lagern Sie sie bei -80 °C im Dunkeln.
- Vorbereiten 2′,7′-Dichlordihydrofluoresceindiacetat(H2DCF-DA) Sonde.
- Verdünnen Sie dasH2DCF-DA in 0,1% Polyvinylpyrrolidon (PVA)/PBS, um die erste 100 mM-Lösung zu erhalten. Bewahren Sie die Lösung bei -80 °C im Dunkeln auf.
- Verdünnen Sie die erste Lösung in 0,1% PVA/PBS, um die 100 μM Stammlösung zu erhalten. Bei -20 °C im Dunkeln lagern.
- Bereiten Sie das Montagemedium (MM) vor: Für 10 ml MM 5 ml Glycerin, 5 ml PBS und 250 mg Natriumazid hinzufügen. Bis zum Gebrauch bei -20 °C lagern.
- Inkubieren Sie die Eizellen für 30 min bei 38,5 °C in BM mit 500 nM MT-Rot (Stammlösung: 100 μM in DMSO).
- Nach der Inkubation mit MT-Red-Sonde die Eizellen dreimal in BM waschen und 20 min in demselben Medium mit 5 μMH2DCF-DA (Stammlösung: 100 μM in BM) inkubieren.
- Nach der Exposition bei den Sonden die Eizellen in BM waschen und mindestens 15 Minuten lang in 2,5% Glutaraldehyd / PBS fixieren.
- Nach der Fixierung die Eizellen dreimal in BM waschen und auf Glasobjektträgern in einem 4 μL Tropfen MM mit 1 mg/ml Hoechst 33342 mit Wachskissen montieren, um eine Kompression der Proben zu vermeiden.
- Objektträger bis zur Auswertung bei 4 °C im Dunkeln lagern.
- Führen Sie die Analyse von immunmarkierten Abschnitten mit einem konfokalen Laserscanning-Mikroskop durch. Das Mikroskop ist mit Ar/He/Ne-Lasern ausgestattet, die ein 40/60-faches Ölobjektiv verwenden. Analysieren Sie die Abschnitte durch sequentielle Anregung.
- Für die mitochondriale Auswertung beobachten Sie die Proben mit einem Multiphotonenlaser, um MT-Red nachzuweisen (Exposition: 579 nm; Emission: 599 nm).
- Verwenden Sie einen Argon-Ionen-Laserstrahl bei 488 nm und den B-2 A-Filter (495 nm Exposition und 519 nm Emission), um auf das Dichlorfluorescein (DCF)18hinzuweisen.
- In jeder einzelnen Eizelle messen MT-Rot- und DCF-Fluoreszenzdicken auf der Äquatorebene19.
- Beibehaltung der Parameter in Bezug auf die Fluoreszenzintensität bei konstanten Werten während aller Bildaufnahmen (Laserenergie 26%, Sequenzielle Einstellungen 1: PMT1-Verstärkung 649-PMT2-Verstärkung 482; Sequenzielle Einstellung 2: PMT1 Verstärkung 625-PMT2 Verstärkung 589; Offset 0; Lochgröße: 68).
- Führen Sie eine quantitative Analyse der Fluoreszenzintensität mit dem Leica LAS AF Lite Bildanalyse-Softwarepaket durch, wobei die Verfahren um20standardisiert sind.
- Nehmen Sie die Bilder einmal auf, bewegen Sie sich auf der Z-Achse, bis Sie die Äquatorebene erreichen.
- Für jedes Foto in Graustufen umwandeln und Kanal 1 (bezogen auf Hoechst-Blau) deaktivieren. Zeichnen Sie dann manuell eine Region of Interest (ROI) auf einer umschriebenen Fläche, d. h. um die meiotische Spindel.
HINWEIS: Die Software kann automatisch den Pixeldurchschnittswert auf dem Kanal 2 (FITC) lesen und den Wert des Hintergrunds davon subtrahieren. - Zeichnen Sie die Mittelwerte der Pixel auf und senden Sie sie zur statistischen Analyse.
9. Statistische Auswertungen
- Analyse der folgenden Unterschiede: Überlebensraten in juvenilen vs. adulten Eizellen, Überlebensraten und Entwicklungskompetenz in Kontroll- und Trehalose-behandelten juvenilen Eizellen, Überlebens- und parthenogenetische Aktivierungsraten und Entwicklungskompetenz von adulten Eizellen, die mit verschiedenen Kalziumkonzentrationsmedien vitrifiziert sind, Befruchtungsraten und Embryoproduktion in juvenilen Eizellen, die mit niedriger oder hoher Kalziumkonzentration vitrifiziert sind, aktive Mitochondrienphänotypen in juvenilen vitrifizierten Eizellen während unterschiedliche Zeitpunkte der posterwärmenden Kultur und parthenogenetische Aktivierungsraten zwischen adulten und juvenilen vitrifizierten Eizellen mit dem Chi-Quadrat-Test.
- Analysieren Sie die Spaltungsrate und den Embryoausstoß in vitrifizierten adulten Eizellen während verschiedener Zeitpunkte der Posterwärmungskultur, die Fluoreszenzintensität der mitochondrialen Aktivität und die intrazellulären ROS-Spiegel in juvenilen vitrifizierten Eizellen während verschiedener Zeitpunkte der Posterwärmungskultur durch ANOVA nach Analyse der Homogenität der Varianz durch Levenes Test. Verwenden Sie einen Post-hoc-Test Tukey's Test, um Unterschiede zwischen und zwischen Gruppen hervorzuheben.
- Führen Sie statistische Analysen mit dem statistischen Softwareprogramm durch und betrachten Sie eine Wahrscheinlichkeit von P < 0,05 als Mindestbedeutungsniveau. Alle Ergebnisse werden als Mittelwert ± S.E.M ausgedrückt.
Ergebnisse
Die Kryotoleranz von Eizellen von juvenilen Spenderinnen ist im Vergleich zu erwachsenen niedriger. Der erste beobachtete Effekt ist eine niedrigere Überlebensrate nach der Erwärmung im Vergleich zu adulten Eizellen (Abbildung 1A; χ2 Test P<0,001). Juvenile Eizellen zeigten nach der Erwärmung eine geringere Membranintegrität (Abbildung 1B). Die Verwendung von Trehalose im Reifemedium sollte überprüfen, ob dieser Zucker Kryoverletzungen in juvenilen Eizellen reduzieren kann. Die Daten haben gezeigt, dass23 Eizellen, die für 24 Stunden mit Trehalose-Supplementierung gereift sind, höhere Überlebensraten nach Vitrifikation/Erwärmung im Vergleich zur nicht behandelten Gruppe zeigten (Tabelle 1: 85,7% vs. 75,3% bzw. χ2 Test P<0,05). Die Trehalose-Supplementierung war in der Tat mit einer höheren Membranintegrität nach der Erwärmung verbunden (Abbildung 2A). So erhöhte die Verwendung von Trehalose während der In-vitro-Reifung juveniler Eizellen die Überlebensraten nach vitrifikation (85,7%) auf Werte, die mit denen von Erwachsenen vergleichbar sind (90,3%). Spaltung, Befruchtung und Entwicklungsraten von juvenilen Eizellen wurden jedoch durch Trehalose-Supplementierung nicht erhöht (Tabelle 1).
Um die Eizellkompetenz nach der Vitrifikation zu verbessern, testeten wir in adulten Schafe eizell verschiedene Vitrifikationsmedien mit Kalziumkonzentrationen im Bereich von 9,9 bis 0,4 mg/dl10. Die erzielten Ergebnisse zeigten, dass die Verwendung von Medien mit einer Kalziumkonzentration von 2,2 mg/dl die Überlebensraten nach der Erwärmung erhöhte, die Entwicklungskompetenz verbesserte und die parthenogenetische Aktivierung der adulten Eizellereduzierte 10 (Tabelle 2). Wir haben daher die kalziumarmen Vitrifikationsmedien für die Vitrifikation juveniler Eizellen getestet. Wie in Tabelle 3gezeigt, zeigten juvenile Eizellen, die mit niedriger Kalziumkonzentration vitrifiziert wurden, höhere Befruchtungsraten im Vergleich zu Eizellen, die mit hoher Kalziumkonzentration verglast waren (44,35 % vs. 32,29 %; P<0,05), aber es wurden keine Unterschiede in der Embryoproduktion gefunden.
Vitrifizierte/erwärmte Eizellen benötigen vor der Befruchtung zusätzliche Zeit, um Schäden durch Kryokonservierungsverfahren wiederherzustellen und ihr Entwicklungspotenzial zu erhöhen. Eine frühere Studie hat in der Tat gezeigt, dass die intrazelluläre ATP-Konzentration, die mitochondriale Aktivität und die In-vitro-Entwicklungskompetenz in vitrifizierten/aufgetauten Eizellen, die auch hohe intrazelluläre ROS-Konzentrationen aufweisen, reduziert sind6. Diese Veränderungen sind unmittelbar nach der Erwärmung besonders ausgeprägt. Während der Post-Erwärmungskultur können sich sowohl erwachsene als auch juvenile Eizellen teilweise von den Schäden erholen, die während der Vitrifikationsverfahren erlitten wurden6,24. Durch den Vergleich von Kulturen nach der Erwärmung unterschiedlicher Dauer (0, 2, 4 und 6 h) zeigten wir, dass nach 4 h Kultur Eizellen, die von erwachsenen Mutterschafen gesammelt wurden, in der Lage sind, das energetische Gleichgewicht6 und den mikrotubularen Aufbau24 wiederherzustellen und die Entwicklungskompetenz mit höherer Spaltung (50,7 ± 3,9%; P< 0,01 ANOVA) und Blastozystenraten (14,40 ± 1,3%; ANOVA P< 0,01) im Vergleich zu anderen Zeitpunkten (0, 2 und 6 h; Tabelle 4). Somit stellt 4 h Nacherwärmungskultur das ideale Zeitfenster für die Befruchtung von verglasten/erwärmten erwachsenen Eizellendar 6.
Als das gleiche Experiment mit Eizellen wiederholt wurde, die von juvenilen Spenderinnen entnommen wurden, wurden diese Ergebnisse teilweise bestätigt. Die mitochondriale Aktivität war in vitrifizierten/erwärmten juvenilen Eizellen nach 4 h Posterwärmungskultur im Vergleich zu anderen Zeitpunkten höher (0, 2, 6; Abbildung 3: ANOVA P<0.01). Mehrere Muster der mitochondrialen Verteilung werden beobachtet und in die folgenden drei Gruppen eingeteilt (wie von21 berichtet): Muster A: homogen fine mit kleinen Granulationen, die im gesamten Zytoplasma verteilt sind; Muster B: homogene GRANULAR mit großen Granulationen, die im gesamten Zytoplasma verteilt sind; Muster C: heterogen CLUSTERED, wenn besonders große Granulationen vorhanden waren, die über das gesamte Zytoplasma verteilt waren oder sich in bestimmten zytoplasmatischen Domänen befanden. Die verschiedenen Phänotypen in der Zytoplasmaverteilung der aktiven Mitochondrien bei MII können mit der Entwicklungskompetenz der Eizellen in Verbindung stehen. Eine FINE homogene Verteilung ist ein Indikator für schlechte Entwicklungskompetenz, während eine GRANULARE und CLUSTERED Verteilung mit einer erhöhten Mitochondrienaktivität und folglich einer höheren Entwicklungskompetenz zusammenhängen22. Mitochondriale Verteilungsmuster änderten sich während 6 h der Post-Erwärmungskultur. Abbildung 4 zeigt Beispiele für juvenile Eizellen mit unterschiedlichen mitochondrialen Verteilungsmustern und deren Schwankungen während der Posterwärmungskultur. Das Muster A nahm während der verlängerten Inkubation signifikant zu und erreicht den höheren Wert bei 6 h nach der Erwärmung (Abbildung 4Aa: χ2 P<0,05), das Muster B zeigte keine signifikanten Veränderungen während der Nacherwärmungskultur (Abbildung 4Bb), das Muster C wurde in keiner juvenilen verglasten/erwärmten Eizelle während der verlängerten Inkubation gefunden (Abbildung 4Cc: χ2 P<0,05).
Darüber hinaus waren die intrazellulären ROS-Spiegel in juvenilen Eizellen nach 2 h Posterwärmungskultur signifikant niedriger als bei 0, 4 und 6 h(Abbildung 5:ANOVA P<0,001). Im Gegensatz zu dem, was in adulten Eizellen gefunden wurde, stieg die Rate der spontanen parthenogenetischen Aktivierung während der Posterwärmungskultur in juvenilen Eizellen an (Abbildung 6). Aus diesem Grund wäre der empfohlene Zeitpunkt für die Befruchtung in juvenilen Eizellen 2 h nach der Nacherwärmungskultur.
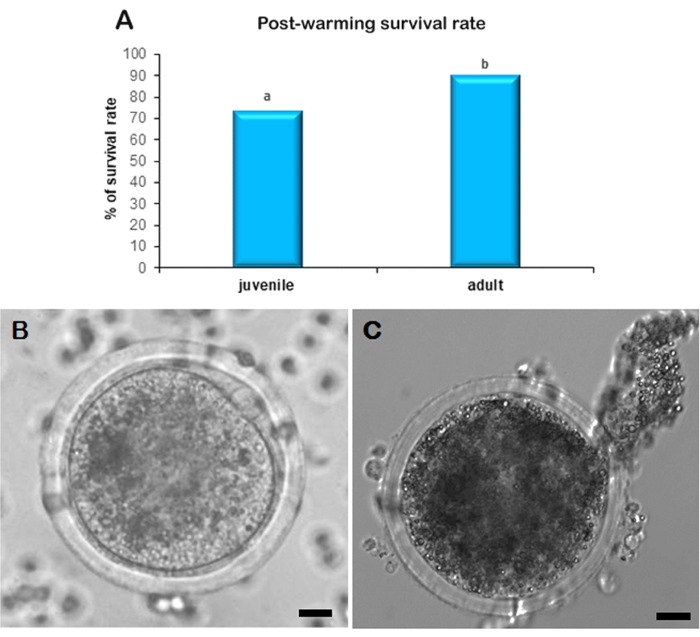
Abbildung 1. Überlebensraten von vitrifizierten/erwärmten Schafe eizellen, die von juvenilen und erwachsenen Spenderinnen gesammelt wurden. (A) Die Eizellen wurden nach der In-vitro-Reifung verglast. Die Überlebensraten wurden nach Vitrifikation und Erwärmung durch fluoreszierende Färbung mit Propidieniodid (10 μg/ml) und Hoechst 33342 (10 μg/ml) bestimmt. N = 165 adulte Eizellen und 170 juvenile Eizellen. Unterschiedliche Buchstaben weisen auf signifikante Unterschiede zwischen adulten und juvenilen Eizellen hin: χ2 Test P<0,001. (B-C) Beispiele für vitrifizierte/erwärmte juvenile Eizellen mit intakter (B) und geschädigter Plasmamembran (C) bei der morphologischen Auswertung (invertiertes Mikroskop mit 100-facher Vergrößerung). Maßstabsleiste = 10 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
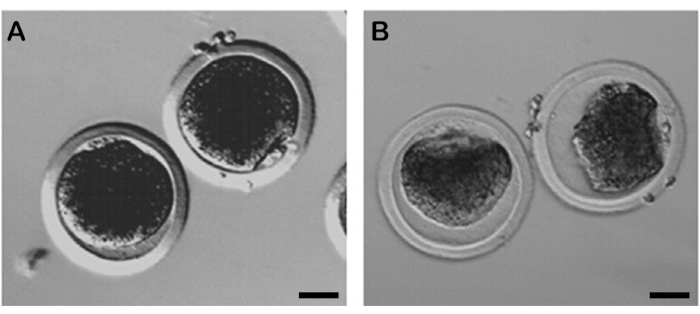
Abbildung 2. Überlebensraten juveniler Eizellen und In-vitro-Entwicklungskompetenz nach Reifung mit (TRH) und ohne (CTR) Trehalose (100 mM im Reifemedium). (A-B) Beispiele für juvenile Eizellen, die nach in vitro Reifung in Medien verglast wurden (A) mit oder (B) ohne Trehalose bei der morphologischen Bewertung (invertiertes Mikroskop mit 100-facher Vergrößerung). Maßstabsleiste = 30 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
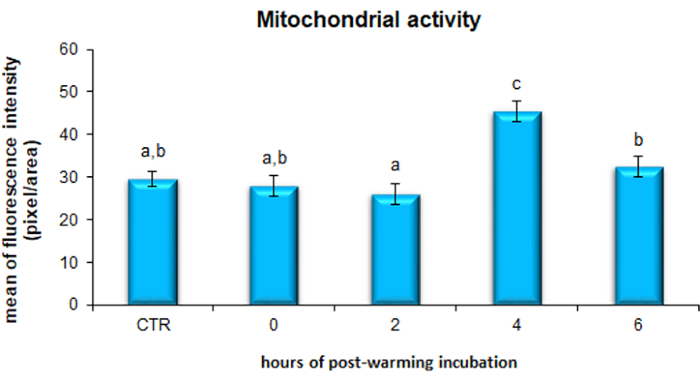
Abbildung 3. Quantifizierung der aktiven mitochondrialen Fluoreszenzintensität in vitrifizierten/erwärmten juvenilen Eizellen zu verschiedenen Zeitpunkten (0, 2, 4, 6) während der Post-Erwärmung in vitro-Kultur. IVM-Eizellen wurden als Kontrolle verwendet (CTR N = 77). Insgesamt wurden 163 (0 h N = 45; 2 h N = 39; 4 h N = 40; 6 h N = 39) juvenile Eizellen in drei unabhängigen Experimenten verglast und erwärmt. Unterschiedliche Buchstaben weisen auf statistisch signifikante Unterschiede hin (ANOVA P = 0,0000). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
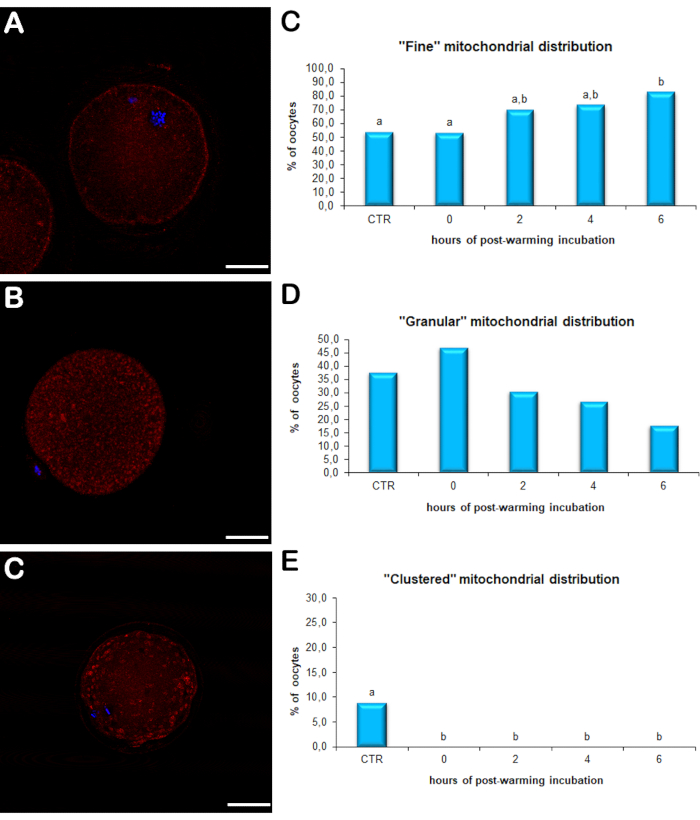
Abbildung 4. Verteilung des mitochondrialen Musters in vitrifizierten/erwärmten juvenilen Eizellen während 6 Stunden nach der Erwärmung in vitro-Kultur. Repräsentative Bilder der feinen (A), granularen (B) und geclusterten (C) mitochondrialen Verteilung in vitrifizierten/erwärmten juvenilen Eizellen. (D) Prozentsatz der juvenilen vitrifizierten/erwärmten Eizellen, die eine feine mitochondriale Verteilung zeigen; (E) Prozentsatz der juvenilen vitrifizierten/erwärmten Eizellen, die eine körnige mitochondriale Verteilung zeigen; (F) Prozentsatz der juvenilen vitrifizierten/erwärmten Eizellen, die eine geclusterte mitochondriale Verteilung zeigen. IVM juvenile Eizellen wurden als Kontrolle verwendet (CTR; N = 77). Insgesamt wurden 163 (0 h N = 45; 2 h N = 39; 4 h N = 40; 6 h N = 39) juvenile Eizellen verwendet, die in drei unabhängigen Experimenten verglast und erwärmt wurden. Unterschiedliche Buchstaben weisen auf statistisch signifikante Unterschiede hin (Aa: χ2 P = 0,026; Bb: χ2 P = 0,097; Cc: χ2 P = 0,014). Maßstabsleiste = 30 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
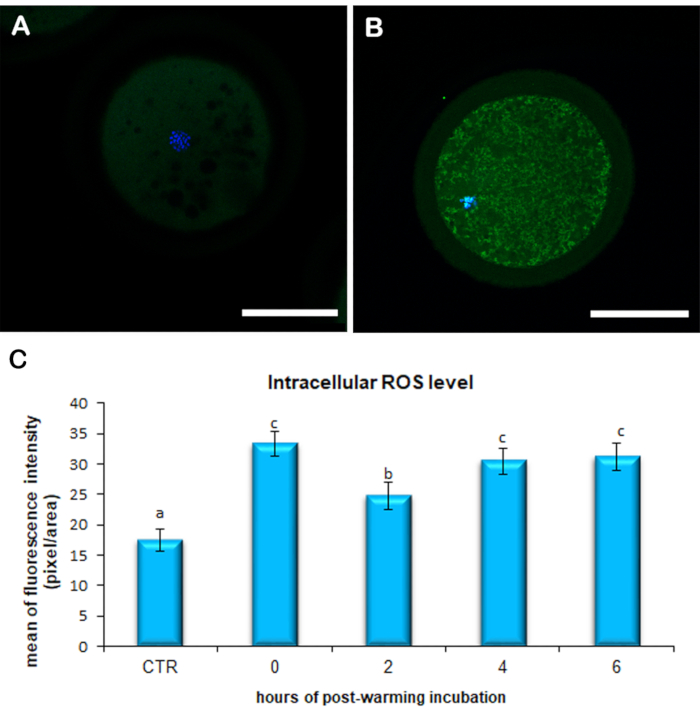
Abbildung 5. Quantifizierung der intrazellulären ROS-Fluoreszenzintensität in vitrifizierten juvenilen Eizellen während einer 6-stündigen in vitro-Kultur nach der Erwärmung. (A-B) Repräsentative Bilder der ROS-Fluoreszenzintensität in in vitro gereiften (A) und vitrifizierten (B) juvenilen Eizellen. (C) Intrazelluläre ROS-Spiegel, bestimmt durch Quantifizierung der Fluoreszenzintensität in vitrifizierten juvenilen Eizellen zu verschiedenen Zeitpunkten (0 h N=45; 2 h N=39; 4 h N=40; 6 h N=39) während der In-vitro-Kultur nach der Erwärmung. In vitro gereifte juvenile Eizellen wurden als Kontrolle verwendet (CTR N = 77). Unterschiedliche Buchstaben weisen auf statistisch signifikante Unterschiede hin (ANOVA P = 0,0000). Maßstabsleiste = 50 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
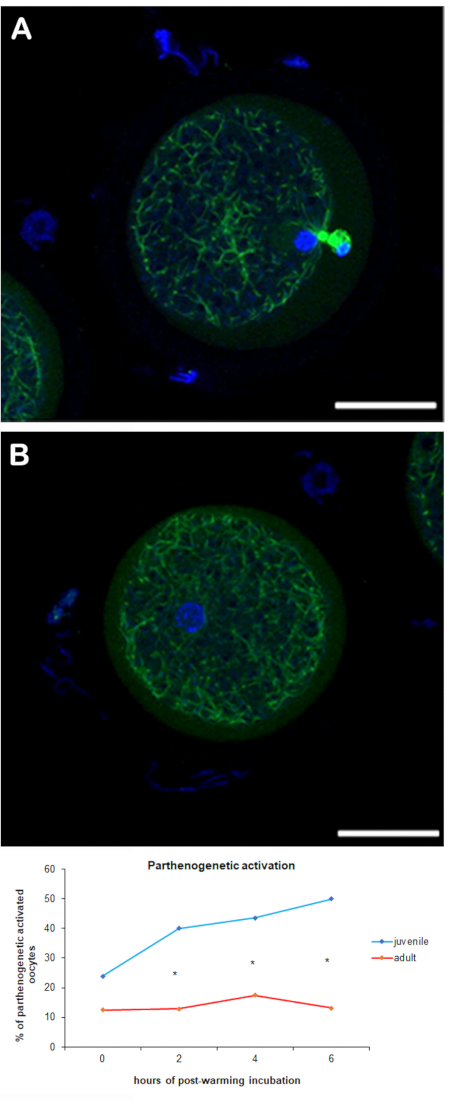
Abbildung 6. Parthenogenetische Aktivierung in vitrifizierten juvenilen und adulten Eizellen während 6 Stunden postwärmender In-vitro-Kultur. (A-B) Repräsentative Bilder der parthenogenetischen Aktivierung von Eizellen: (A) Eizelle im Übergang zwischen Metaphase II und (B) Pronukleusbildung. (C) Prozentsätze parthenogenetisch aktivierter adulter und juveniler Eizellen zu unterschiedlichen Zeitpunkten (0, 2, 4, 6 h) während der in vitro-Kultur nach der Erwärmung. Sternchen zeigen statistische Unterschiede zwischen juvenilen und adulten Eizellen zu jedem Zeitpunkt der Inkubation an (ANOVA P = 0,000). Diese Zahl wurde von Serra et al.24 Scale bar = 50 μm modifiziert. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
| Eizellen (n) | Überlebensrate (%) | IVF (n) | Gedüngta (%) | Gespaltenb (%) | Blastozystenc (%) | |
| Ctr | 73 | 75.3* | 452 | 91.1 | 96.1 | 14.3 |
| Trh | 77 | 85.7 | 470 | 92.5 | 95.4 | 13 |
| * Chi-Quadrat-Test p<0,5 | ||||||
| a Prozentsätze werden auf IVF-Eizellen berechnet | ||||||
| b Prozentsätze werden auf befruchteten Eizellen berechnet | ||||||
| c Prozentsätze werden an gespaltenen Eizellen berechnet | ||||||
Tabelle 1. Überlebensraten juveniler Schafe und In-vitro-Entwicklungskompetenz nach Reifung mit und ohne Trehalose und Vitrifikation. TRH = juvenile Eizellen, die mit Trehalose-Supplementierung gereift sind (100 mM im Reifemedium). CTR = Kontrolle juveniler Eizellen, die ohne Trehalose-Supplementierung gereift sind. Die Überlebensraten wurden nach fluoreszierender Färbung mit Propidieniodid (10 μg/ml) und Hoechst 33342 (10 μg/ml) von vitrifizierten/erwärmten Eizellen bestimmt. Die Entwicklungskompetenz der Eizellen wurde nach der Einarbeitung in ein In-vitro-Produktionssystem bestimmt. a Prozentsätze werden auf IVF-Eizellen berechnet. b Prozentsätze werden für befruchtete Eizellen berechnet. c Prozentsätze werden auf gespaltenen Eizellen berechnet. * χ2 Prüfung P<0,5. Diese Tabelle wurde modifiziert von Berlinguer et al.23
| Gruppen | [Ca++] mg / dl | N Eizelle | Spontane parthenogenetische Aktivierung (%) | Vitrifizierte Eizellen | Überlebte und IVF-Eizellen (%) | Dekolleté (%) | Blastozysten-Output (%) |
| TCM/FCS | 9.9 | 80 | 33 (41,2)a | 150 | 124 (82,7)a | 40 (32,5)a | 2 (1.6)a |
| PBS/FCS | 4.4 | 82 | 29 (35,3)AC | 115 | 88 (76,5)a | 33 (37,5)ae | 1 (1.1)a |
| PBSCaMg frei/FCS | 2.2 | 86 | 11 (12,7)b | 126 | 115 (91,3)b | 74 (64,3)b | 12 (10,4)b |
| PBS/BSA | 3.2 | 83 | 21 (25,3)c | 110 | 90 (81,8)a | 18 (20)c | 0 (0)a |
| PBSCaMg frei/BSA | 0.4 | 87 | 10 (11,5)b | 149 | 123 (82,5)a | 57 (46.3)de | 3 (2,4)b |
Tabelle 2. Entwicklungskompetenz von in vitro gereiften adulten Eizellen, die in Vitrifikationsmedien vitrifiziert sind (16,5% Ethylenglykol + 16,5% Dimethylsulfoxid), die unterschiedliche Calciumkonzentrationen enthalten. Überlebens- und Befruchtungsraten werden an vitrifizierten Eizellen berechnet; Die Gesamtspaltungs- und Blastozystenraten werden an überlebten Eizellen berechnet. Werte mit unterschiedlicher Tiefstellung innerhalb derselben Spalte unterscheiden sich signifikant: χ2 Test P<0,05. Diese Tabelle wurde von Succu et al.10 modifiziert.
| [Ca 2++] in Vitrifikationsmedien | Nein. Eizellen | Überlebensrate nach der Vitrifikation (%) | Düngerate (%) | Dekolleté (%) | Blastozystenausgang (%) |
| Hoch [9,9 mg/dl] | 190 | 161 (84.73) | 52/161 (32,29)a | 43/161 (26.7) | 0 |
| Niedrig [2,2 mg/dl] | 150 | 124 (82.66) | 55/124 (44,35)b | 41/124 (33.1) | 0 |
Tabelle 3. Befruchtungs- und Entwicklungsraten nach In-vitro-Fertilisation und Kultur von vitrifizierten/erwärmten juvenilen Eizellen unter Verwendung hoher ([Ca 2++] = 9,9 mg/dl) und niedriger ([Ca 2++] = 2,2 mg/dl) Kalziumkonzentration in Vitrifikationsmedien. Unterschiedliche Buchstaben weisen auf statistische Differenz hin (ein ≠ b P<0,05 χ2 Test).
| Stunden der Inkubation nach der Erwärmung | Spaltungsrate (n) | Embryonenausgang (n) |
| 0 | 19,2 ± 3%a (82) | 0%a (17) |
| 2 | 41,8 ± 3%b (100) | 6,5 ± 1,3%b (42) |
| 4 | 50,7 ± 3%b (92) | 14,4 ± 1,3%c (48) |
| 6 | 26 ± 3%a (92) | 0%a (23) |
Tabelle 4. Spaltungsrate und Embryonenausstoß in vitrifizierten/erwärmten erwachsenen Eizellen, die zu verschiedenen Zeitpunkten der Posterwärmungskultur befruchtet wurden. Verschiedene Buchstaben zeigen statistische Unterschiede innerhalb derselben Spalte an: ANOVA P<0.01.
Diskussion
Die Kryokonservierung von Eizellen bei Haustieren kann nicht nur die langfristige Erhaltung weiblicher genetischer Ressourcen ermöglichen, sondern auch die Entwicklung embryonaler Biotechnologien vorantreiben. So würde die Entwicklung einer Standardmethode zur Vitrifikation von Eizellen sowohl der Nutztierhaltung als auch dem Forschungssektor zugute kämen. In diesem Protokoll wird eine vollständige Methode zur Vitrifikation von eizellten Erwachsenen schafen vorgestellt, die einen soliden Ausgangspunkt für die Entwicklung eines effizienten Vitrifikationssystems für juvenile Eizellen darstellen könnte.
Einer der Hauptvorteile der vorgeschlagenen Methode ist, dass sie alle Schritte von der Eizellentnahme, In-vitro-Reifung, Vitrifikation und Erwärmung umfasst. Darüber hinaus umfasst es eine Kulturperiode nach der Erwärmung, damit sich die Eizellen vor der Befruchtung von den Schäden erholen können, die während des Vitrifikationsverfahrens entstanden sind. Der optimale Zeitpunkt für die Befruchtung sollte entsprechend der Methode der Kryokonservierung, der anfänglichen Eizellqualität, dem Alter der Patientin und der Art angepasst werden, wobei beide Aspekte der Zeiterholung und der Eizellalterung berücksichtigt werdenmüssen 25,26. Daher ist die Wahl der Dauer der Inkubationszeit nach der Erwärmung eine Herausforderung und kann sich auf das Ergebnis von Eizellvitrifikationsprogrammen auswirken. Basierend auf den Ergebnissen in Bezug auf Spaltungsraten und Embryonenproduktion und unter den im vorgelegten Protokoll beschriebenen Bedingungen ist der optimale Zeitpunkt für die Befruchtung von vitrifizierten erwachsenen Schafe eizellen nach 4 Stunden Nacherwärmung (Tabelle 4)6. Diese Informationen sind entscheidend für die Entwicklung eines Eizellvitrifikationsprogramms.
Dieses Protokoll liefert zwar akzeptable Ergebnisse in Bezug auf die Embryoproduktion aus vitrifizierten/ erwärmten erwachsenen Eizellen, führt jedoch immer noch zu Embryonen mit niedrigem bis null, wenn es auf juvenile Eizellen angewendet wird. Mehrere strukturelle und funktionelle Einschränkungen beeinträchtigen die entwicklungskompetenz der präpubertären Eizellen, wie geringe Größe, fehlerhafte Kopplung zwischen Kumuluszellen und Eizellen, Abnahme der Aminosäureaufnahme, verminderte Proteinsynthese und Energiestoffwechsel 27,28,29. In einer früheren Studie berichteten wir, dass präpubertäre Eizellen eine hohe Empfindlichkeit gegenüber dem Vitrifikationsverfahren aufweisen30. Die geringe Entwicklungskompetenz, die nach Vitrifikation und Erwärmung gezeigt wird, ist wahrscheinlich das Ergebnis von Schäden an zytoplasmatischen Faktoren, die an der Reorganisation des Zytoskeletts und (oder) an der Aktivierung des reifungsfördernden Faktors30beteiligt sind. Wie in Tabelle 1gezeigt, konnte die Supplementierung des Reifemediums mit Trehalose, einem nicht durchlässigen Kryoprotektivum, die Überlebensraten nach Vitrifikation und Erwärmung auf Werte erhöhen, die mit denen erwachsener Eizellen vergleichbar sind4. Auf die gleiche Weise erhöht die Verwendung von Vitrifikationslösung mit niedrigen Kalziumkonzentrationen die Befruchtungsraten von juvenilen Eizellen nach Vitrifikation und Erwärmung, wie in Tabelle 3gezeigt. So kann sowohl die Optimierung der Kulturbedingungen während der In-vitro-Reifung als auch die Zusammensetzung der Vitrifikationsmedien dazu beitragen, die Qualität der juvenilen Eizelle nach Vitrifikation und Erwärmung zu erhöhen. Juvenile Eizellen zeigen eine gewisse Fähigkeit, sich von den durch das Vitrifikationsverfahren induzierten Schäden zu erholen, wie in Abbildung 3, 4 und 5gezeigt .
Die hohen Raten spontaner parthenogenetischer Aktivierung während der Posterwärmungskultur begrenzen jedoch immer noch ihr Entwicklungspotenzial. Ethylenglykol und DMSO, die häufig verwendete Kryoprotektoren sind, können die Eizelle vor der eigentlichen Befruchtung künstlich aktivieren und dadurch den Befruchtungserfolg und die Embryonalentwicklung einschränken. Sie können in der Tat einen vorübergehenden Anstieg der intrazellulären Ca2+ Konzentration31verursachen, wodurch kortikale Granula-Exozytose, Pronukleibildung und meiotische Wiederaufnahme ausgelöst werden32. Tatsächlich kann die Vitrifikation die Eizelle vor der eigentlichen Befruchtung künstlich aktivieren, wodurch der Befruchtungserfolg und die Embryonalentwicklung eingeschränkt werden. Calciumchelator kann daher verwendet werden, um die Kalziumverfügbarkeit während des Vitrifikationsprozesses weiter zu begrenzen, mit dem Ziel, die Rate der spontanen Aktivierung in juvenilen Eizellen zu begrenzen.
Es sollte auch berücksichtigt werden, dass die Vitrifikation im Gegensatz zum langsamen Einfrieren eine ausschließlich manuelle Technik ist und daher bedienerabhängig ist33,34. Somit ist die Verfügbarkeit von geschultem Personal ein Schlüsselfaktor für den Erfolg dieser Methode. Zunächst muss die Bedienerin die zu vitrifizierenden Eizellen richtig auswählen. Nach der IVM werden die Eizellen vorsichtig von Kumuluszellen entkernt und unter einem Stereomikroskop ausgewertet, um für die Kryokonservierung nur diejenigen mit einem gleichmäßigen Zytoplasma, einer homogenen Verteilung der Lipidtröpfchen im Zytoplasma und mit einem Außendurchmesser von etwa 90 μm auszuwählen. Darüber hinaus müssen nur Eizellen ausgewählt werden, die die Extrusion am ersten Polkörper und damit im MII-Stadium zeigen.
Die morphologische Bewertung der Eizellen muss in wenigen Minuten abgeschlossen sein und ist bedienerabhängig und sehr empfindlich gegenüber Variationen in ihrer ordnungsgemäßen Umsetzung. Um das Auswahlverfahren zu standardisieren, schlägt die Methode vor, die Kulturzeit für die In-vitro-Reifung für erwachsene Eizellen auf 22 h zu begrenzen. Zu diesem Zeitpunkt haben Schafe eizellen von hoher Qualität bereits die erste meiotische Teilung22 abgeschlossen und können für die Kryokonservierung ausgewählt werden. Auf diese Weise sollte die Beseitigung von eizell minderwertigen Eizellen, die bei der Vollendung der ersten meiotischen Teilung die langsamsten sind, einfacher sein.
Der Bediener muss auch den für das Vitrifikationsverfahren festgelegten Zeitpunkt von der ersten Exposition gegenüber dem Kryoprotektivum bis zum Eintauchen in flüssigen Stickstoff strikt einhalten. Ein weiterer kritischer Schritt ist die Belastung der Eizelle in das verwendete Vitrifikationsgerät. Das Verfahren muss minimale Probenvolumina verwenden, um die Abkühlrate zu erhöhen und den Zellen zu helfen, die Phasenübergangstemperatur schnell zu durchlaufen, wodurch die Kryoverletzungen verringert werden35. Cryotop verwendet einen Polypropylenstreifen, der an einem Halter befestigt ist. Bei diesem Verfahren werden die Eizellen in der Vitrifikationslösung (<0,1 μL) schnell mit einer Glaskapillare auf dem Filmstreifen belastet. Dann muss die Lösung entfernt werden, wobei eine dünne Schicht zurückbleibt, die ausreicht, um die zu kryokonservierenden Zellen zu bedecken. Auch dieser Schritt muss so schnell wie möglich abgeschlossen werden, um die Exposition der Eizellen gegenüber den hohen Kryoprotektorenkonzentrationen der Vitrifikationslösung zu begrenzen, die einen osmotischen Schock verursachen können und für die Zellen toxisch sind.
Aus diesen Gründen ist eine große Herausforderung, die mit dieser Methode verbunden ist, der Bedarf an manueller Handhabung und qualifizierten Technikern. Andere Autoren berichteten, dass das Ergebnis der Vitrifizierung von Eizellen durch einen "Lernkurveneffekt" beeinflusst zu sein scheint, da der Erwerb manueller Fähigkeiten die durch das Vitrifikationsverfahren induzierten biologischen Schäden signifikant reduzieren kann34. Forscher sollten daher den "Operator-Effekt" bei der Bewertung des Ergebnisses des Vitrifikationsverfahrens berücksichtigen.
Weitere Studien werden sich sowohl auf die Standardisierung des Eizellauswahlverfahrens als auch auf eine bessere Anpassung der Medienzusammensetzung und der Kulturbedingungen an die Bedürfnisse der juvenilen Eizellen konzentrieren. In dieser Hinsicht kann sowohl die Verwendung von Calciumchelator als auch von Antioxidantien vielversprechende Möglichkeiten bieten. In ähnlicher Weise wird die Optimierung des Protokolls es ermöglichen, die Entwicklungskompetenz von vitrifizierten / erwärmten erwachsenen Eizellen zu erhöhen.
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden finanziellen Interessen haben.
Danksagungen
Die Autoren erhielten keine spezifische Förderung für diese Arbeit. Professor Maria Grazia Cappai und Dr. Valeria Pasciu sind dankbar für das Video-Voiceover und für den Aufbau des Labors während der Videoaufnahmen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 2′,7′-Dichlorfluorescindiacetat | Sigma-Aldrich | D-6883 | |
| Albumin Rinderfraktion V, proteasefrei | Sigma-Aldrich | A3059 | |
| Bisbenzimid H 33342 Trihydrochlorid (Hoechst 33342) | Sigma-Aldrich | 14533 | |
| Calciumchlorid (CaCl2 2H20) | Sigma-Aldrich | C8106 | |
| Zitronensäure | Sigma-Aldrich | C2404 | |
| Konfokales Laser-Scanning-Mikroskop | Leica Microsystems GmbH,Wetzlar | TCS SP5 DMI 6000CS | |
| Cryotop Kitazato | Medical Biological Technologies | ||
| Cysteamine | Sigma-Aldrich | M9768 | |
| D- (-) Fructose | Sigma-Aldrich | F0127 | |
| D(+)Trehalose Dehydr | Sigma-Aldrich | T0167 | |
| Dimethylsulfoxid (DMSO) | Sigma-Aldrich | D2438 | |
| Dulbecco Phosphat gepufferte Kochsalzlösung | Sigma-Aldrich | D8537 | |
| Eigelb | Sigma-Aldrich | P3556 | |
| Ethylenglykol (EG) | Sigma-Aldrich | 324558 | |
| FSH | Sigma-Aldrich | F4021 | |
| Glutaminsäure | Sigma-Aldrich | G5638 | |
| Glutaraldehyd | Sigma-Aldrich | G5882 | |
| Glycerin | Sigma-Aldrich | G5516 | |
| Glycin | Sigma-Aldrich | G8790 | |
| Heparin | Sigma-Aldrich | H4149 | |
| HEPES | Sigma-Aldrich | H4034 | |
| Hypoutarin | Sigma-Aldrich | H1384 | |
| Inverses Mikroskop | Diaphot, Nikon | ||
| L-Alanin | Sigma-Aldrich | A3534 | |
| L-Arginin | Sigma-Aldrich | A3784 | |
| L-Asparagin | Sigma-Aldrich | A4284 | |
| L-Asparaginsäure | Sigma-Aldrich | A4534 | |
| L-Cystein | Sigma-Aldrich | C7352 | |
| L-Cystin | Sigma-Aldrich | C8786 | |
| L-Glutamin | Sigma-Aldrich | G3126 | |
| LH | Sigma-Aldrich | L6420 | |
| L-Histidin | Sigma-Aldrich | H9511 | |
| L-Isoleucin | Sigma-Aldrich | I7383 | |
| L-Leucin | Sigma-Aldrich | L1512 | |
| L-Lysin | Sigma-Aldrich | L1137 | |
| L-Methionin | Sigma-Aldrich | M2893 | |
| L-Ornithin | Sigma-Aldrich | O6503 | |
| L-Phenylalanin | Sigma-Aldrich | P5030 | |
| L-Prolin | Sigma-Aldrich | P4655 | |
| L-Serin | Sigma-Aldrich | S5511 | |
| L-Tyrosin | Sigma-Aldrich | T1020 | |
| L-Valin | Sigma-Aldrich | V6504 | |
| Magnesiumchlorid-Heptahydrat (MgSO4.7H2O) | Sigma-Aldrich | M2393 | |
| Makler Zählkammer | Sefi-Medical Instruments ltd. Biosigma S.r.l. | ||
| Medium 199 | Sigma-Aldrich | M5017 | |
| Mineralöl | Sigma-Aldrich | M8410 | |
| MitoTracker Rot CM-H2XRos | ThermoFisher | M7512 | |
| Neugeborenes Kälberserum hitzeinaktiviert (FCS) | Sigma-Aldrich | N4762 | |
| Penicillin G Natriumsalz | Sigma-Aldrich | P3032 | |
| Phenolrot | Sigma-Aldrich | P3532 | |
| Polyvinylalkohol (87-90% hydrolysiert, durchschnittliches Molgewicht 30.000-70.000) | Sigma-Aldrich | P8136 | |
| Kaliumchlorid (KCl) | Sigma-Aldrich | P5405 | |
| Kaliumphosphat monobasisch (KH2PO4) | Sigma-Aldrich | P5655 | |
| Propidiumiodid | Sigma-Aldrich | P4170 | |
| Schafserum | Sigma-Aldrich | S2263 | |
| Natriumazid | Sigma-Aldrich | S2202 | |
| Natriumbicarbonat (NaHCO3) | Sigma-Aldrich | S5761 | |
| Natriumchlorid (NaCl) | Sigma-Aldrich | S9888 | |
| Natrium-dl-Lactatlösungssirup | Sigma-Aldrich | L4263 | |
| Natriumpyruvat | Sigma-Aldrich | P2256 | |
| Spermienklassen-Analysator | Microptic S.L. | S.C.A. v 3.2.0 | |
| Statistische Software Minitab 18.1 | 2017 Minitab | ||
| Stereomikroskop | Olimpus | SZ61 | |
| Streptomycinsulfat | Sigma-Aldrich | S9137 | |
| Taurin | Sigma-Aldrich | T7146 | |
| TRIS | Sigma-Aldrich | 15.456-3 |
Referenzen
- Arav, A. Cryopreservation of oocytes and embryos. Theriogenology. 81 (1), 96-102 (2014).
- Mullen, S. F., Fahy, G. M. A chronologic review of mature oocyte vitrification research in cattle, pigs, and sheep. Theriogenology. 78 (8), 1709-1719 (2012).
- Hwang, I. S., Hochi, S. Recent progress in cryopreservation of bovine oocytes. BioMed Research International. 2014, (2014).
- Berlinguer, F., et al. Effects of trehalose co-incubation on in vitro matured prepubertal ovine oocyte vitrification. Cryobiology. 55 (1), (2007).
- Quan, G., Wu, G., Hong, Q. Oocyte Cryopreservation Based in Sheep: The Current Status and Future Perspective. Biopreservation and Biobanking. 15 (6), 535-547 (2017).
- Succu, S., et al. A recovery time after warming restores mitochondrial function and improves developmental competence of vitrified ovine oocytes. Theriogenology. 110, (2018).
- Succu, S., et al. Vitrification of in vitro matured ovine oocytes affects in vitro pre-implantation development and mRNA abundance. Molecular Reproduction and Development. 75 (3), (2008).
- Succu, S., et al. Vitrification Devices Affect Structural and Molecular Status of In Vitro Matured Ovine Oocytes. Molecular Reproduction and Development. 74, 1337-1344 (2007).
- Hosseini, S. M., Asgari, V., Hajian, M., Nasr-Esfahani, M. H. Cytoplasmic, rather than nuclear-DNA, insufficiencies as the major cause of poor competence of vitrified oocytes. Reproductive BioMedicine Online. , (2015).
- Succu, S., et al. Calcium concentration in vitrification medium affects the developmental competence of in vitro matured ovine oocytes. Theriogenology. 75 (4), (2011).
- Sanaei, B., et al. An improved method for vitrification of in vitro matured ovine oocytes; beneficial effects of Ethylene Glycol Tetraacetic acid, an intracellular calcium chelator. Cryobiology. 84, 82-90 (2018).
- Quan, G. B., Wu, G. Q., Wang, Y. J., Ma, Y., Lv, C. R., Hong, Q. H. Meiotic maturation and developmental capability of ovine oocytes at germinal vesicle stage following vitrification using different cryodevices. Cryobiology. 72 (1), 33-40 (2016).
- Fernández-Reyez, F., et al. maturation and embryo development in vitro of immature porcine and ovine oocytes vitrified in different devices. Cryobiology. 64 (3), 261-266 (2012).
- Ahmadi, E., Shirazi, A., Shams-Esfandabadi, N., Nazari, H. Antioxidants and glycine can improve the developmental competence of vitrified/warmed ovine immature oocytes. Reproduction in Domestic Animals. 54 (3), 595-603 (2019).
- Barrera, N., et al. Impact of delipidated estrous sheep serum supplementation on in vitro maturation, cryotolerance and endoplasmic reticulum stress gene expression of sheep oocytes. PLoS ONE. 13 (6), (2018).
- Walker, S. K., Hill, J. L., Kleemann, D. O., Nancarrow, C. D. Development of Ovine Embryos in Synthetic Oviductal Fluid Containing Amino Acids at Oviductal Fluid Concentrations. Biology of Reproduction. 55 (3), 703-708 (1996).
- Kuwayama, M., Vajta, G., Kato, O., Leibo, S. P. Highly efficient vitrification method for cryopreservation of human oocytes. Reproductive BioMedicine Online. 11 (3), 300-308 (2005).
- Wu, X., Jin, X., Wang, Y., Mei, Q., Li, J., Shi, Z. Synthesis and spectral properties of novel chlorinated pH fluorescent probes. Journal of Luminescence. 131 (4), 776-780 (2011).
- Dell'Aquila, M. E., et al. Prooxidant effects of verbascoside, a bioactive compound from olive oil mill wastewater, on in vitro developmental potential of ovine prepubertal oocytes and bioenergetic/oxidative stress parameters of fresh and vitrified oocytes. BioMed Research International. 2014, (2014).
- Gadau, S. D. Morphological and quantitative analysis on α-tubulin modifications in glioblastoma cells. Neuroscience Letters. 687, 111-118 (2018).
- los Reyes, M. D., Palomino, J., Parraguez, V. H., Hidalgo, M., Saffie, P. Mitochondrial distribution and meiotic progression in canine oocytes during in vivo and in vitro maturation. Theriogenology. , (2011).
- Leoni, G. G., et al. Differences in the kinetic of the first meiotic division and in active mitochondrial distribution between prepubertal and adult oocytes mirror differences in their developmental competence in a sheep model. PLoS ONE. 10 (4), (2015).
- Berlinguer, F., et al. Effects of trehalose co-incubation on in vitro matured prepubertal ovine oocyte vitrification. Cryobiology. 55 (1), 27-34 (2007).
- Serra, E., Gadau, S. D., Berlinguer, F., Naitana, S., Succu, S. Morphological features and microtubular changes in vitrified ovine oocytes. Theriogenology. 148, 216-224 (2020).
- Asgari, V., Hosseini, S. M., Ostadhosseini, S., Hajian, M., Nasr-Esfahani, M. H. Time dependent effect of post warming interval on microtubule organization, meiotic status, and parthenogenetic activation of vitrified in vitro matured sheep oocytes. Theriogenology. 75 (5), 904-910 (2011).
- Ciotti, P. M., et al. Meiotic spindle recovery is faster in vitrification of human oocytes compared to slow freezing. Fertility and Sterility. 91 (6), 2399-2407 (2009).
- Ledda, S., Bogliolo, L., Leoni, G., Naitana, S. Cell Coupling and Maturation-Promoting Factor Activity in In Vitro-Matured Prepubertal and Adult Sheep Oocytes1. Biology of Reproduction. 65 (1), 247-252 (2001).
- Palmerini, M. G., et al. In vitro maturation is slowed in prepubertal lamb oocytes: ultrastructural evidences. Reproductive Biology and Endocrinology. 12, (2014).
- Leoni, G. G., et al. Relations between relative mRNA abundance and developmental competence of ovine oocytes. Molecular Reproduction and Development. 74 (2), 249-257 (2007).
- Succu, S., et al. Effect of vitrification solutions and cooling upon in vitro matured prepubertal ovine oocytes. Theriogenology. 68 (1), 107-114 (2007).
- Larman, M. G., Sheehan, C. B., Gardner, D. K. Calcium-free vitrification reduces cryoprotectant-induced zona pellucida hardening and increases fertilization rates in mouse oocytes. Reproduction. 131 (1), 53-61 (2006).
- Yeste, M., Jones, C., Amdani, S. N., Patel, S., Coward, K. Oocyte activation deficiency: a role for an oocyte contribution. Human Reproduction Update. 22 (1), 23-47 (2016).
- Rienzi, L., et al. Oocyte, embryo and blastocyst cryopreservation in ART: systematic review and meta-analysis comparing slow-freezing versus vitrification to produce evidence for the development of global guidance. Human Reproduction Update. 23 (2), 139-155 (2017).
- De Santis, L., et al. Oocyte vitrification: influence of operator and learning time on survival and development parameters. Placenta. 32, 280-281 (2011).
- Zhang, X., Catalano, P. N., Gurkan, U. A., Khimji, I., Demirci, U. Emerging technologies in medical applications of minimum volume vitrification. Nanomedicine. 6 (6), London, England. 1115-1129 (2011).
Nachdrucke und Genehmigungen
